ARTICLE · 1001483
高中生物学教材未提及的新亚型无嵴线粒体
“线粒体”是各版本高中生物学教材必修一《分子与细胞》的重难点内容,涉及《普通高中生物学课程标准(2017年版2020年修订)》中大概念2下的一个次位概念“说明生物通过细胞呼吸将储存在有机分子中的能量转化为生命活动可以利用的能量”。由于教材并未明确介绍无嵴线粒体,诸多一线教师认为线粒体都具有嵴结构。本文通过最新资料查阅,对无嵴线粒体的发现历程进行简要梳理,明确其结构与功能特点,概述其发生机制,并介绍其与高中生物学的联系。该研究不仅揭示了癌细胞的代谢适应策略,更为癌症治疗提供了潜在靶点,同时也为高中生物学教学中细胞器功能多样性的拓展提供参考。
1 无嵴线粒体的发现历程
随着超高分辨率成像技术的发展,美国纪念斯隆凯特琳癌症中心研究团队于2024年11月在小鼠胚胎成纤维细胞的研究中发现:当细胞处于营养匮乏状态时,部分线粒体丧失嵴结构,且特异性富集脯氨酸从头合成的关键限速酶——吡咯啉-5-羧酸合成酶(P5CS)。该团队将该亚型线粒体命名为“P5CS线粒体”,亦为本文的“无嵴线粒体”,后续在人类胰腺癌细胞中亦观察到P5CS线粒体。
2 线粒体的分工机制
2.1 线粒体的双重功能 线粒体作为细胞的“动力车间”,其内膜折叠形成的嵴结构通过扩大膜面积显著提升氧化磷酸化效率。线粒体同时也是细胞的“化学工厂”,能够合成氨基酸等构建细胞所需的关键物质。细胞呼吸可以将蛋白质代谢和糖类代谢联系起来,细胞呼吸氧化糖类产生的中间产物可转化为氨基酸。氧化磷酸化依赖于谷氨酸的氧化,脯氨酸和鸟氨酸的产生依赖于谷氨酸的还原合成。在同一线粒体中,氧化代谢途径和还原代谢途径相互竞争谷氨酸,如图1所示。当营养物质充足时,细胞可利用营养物质合成大量ATP,具嵴线粒体可同时产生能量以及合成脯氨酸这类关键分子进行生长和分裂;当营养胁迫导致能量与物质需求同步升高时,线粒体通过P5CS蛋白的动态组装实现功能分工。
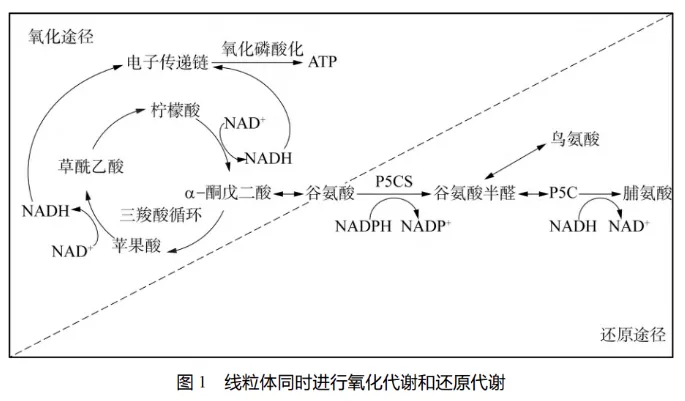
2.2 P5CS的分子开关作用 P5CS通过聚集成可逆的纤维状细丝调控代谢方向:P5CS是从头合成脯氨酸的关键限速酶,它将参与三羧酸循环的蛋白质和参与氨基酸生物合成的酶连接起来,其独特的纤维结构具有对细胞呼吸中间产物传递的重要作用。细胞能量需求增加或营养胁迫时,P5CS通过聚集成纤维状细丝,催化脯氨酸的合成;营养充足时,P5CS细丝解聚,谷氨酸优先参与氧化磷酸化。突变体实验表明,P5CS无法形成细丝会导致脯氨酸合成显著减少,证实P5CS细丝的纤维结构对还原代谢的必要性。
2.3 线粒体亚群的分化 在P5CS的调控下,线粒体通过“融合-分裂”动态过程形成两大亚群。当细胞营养匮乏时,小鼠胚胎成纤维细胞的线粒体稳定地分离成两个亚群:一个主要亚群富含ATP合酶,具有清晰的嵴结构,专门用于氧化磷酸化,专注产生能量;另一个较少亚群,富含P5CS细丝、缺乏嵴结构,优先进行脯氨酸和鸟氨酸的还原合成,为细胞提供构建生物大分子的原料。这种分工机制分离了相互竞争的代谢途径,是细胞应对营养胁迫的核心策略。只要细胞对依赖氧化磷酸化产生ATP的需求持续存在,线粒体被分离成两个功能亚群的情况就会持续。当细胞的能量需求降低后,这两个亚群的分离也是可逆的。
3 无嵴线粒体的结构与功能特点
3.1 结构特点 ① 嵴结构缺失:由于缺乏维持线粒体嵴形态所必需的嵴组织系统复合物中的MIC60和有助于嵴形成的ATP合酶亚基e,P5CS线粒体几乎丧失了嵴的结构,也没有由嵴形成的褶皱内膜(图2);② 蛋白组成差异:P5CS线粒体缺乏ATP合酶。P5CS线粒体富含由多个P5CS连接形成的P5CS细丝,这些P5CS细丝堆叠在不具嵴和ATP合酶的双层膜上;③ 膜电位特点:P5CS线粒体保持较高的电子传递链活性,但三羧酸循环的活性较低,导致其具有较高的膜电位,它通过抑制氧化磷酸化的强度、减少谷氨酸向α-酮戊二酸的转化、增强合成脯氨酸的还原代谢强度来耗散较高的膜电位。
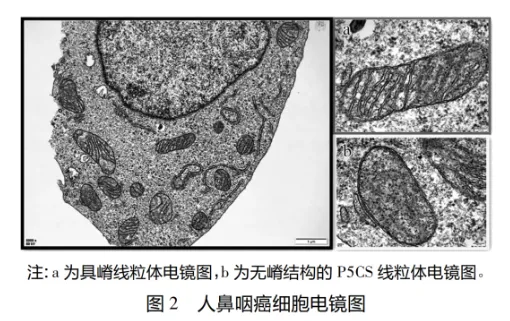
3.2 功能特点 ① 转换代谢方式:P5CS线粒体由于缺乏ATP合酶,丧失有氧呼吸的能力。但P5CS线粒体进行较高强度的还原代谢,致力于合成构建细胞所必需的氨基酸,如脯氨酸。脯氨酸在构建细胞中具有重要作用,其特殊结构帮助蛋白质维持复杂的三维结构,使肽链能够弯曲或转角。由于脯氨酸的存在,胶原蛋白得以形成独特的三股螺旋结构,为细胞构建起稳固的支撑架构。在细胞受到逆境胁迫或氧化损伤时,脯氨酸的积累可以清除细胞内的自由基,平衡细胞内的氧化还原反应,保护生物大分子免受氧化破坏。② 底物竞争解耦:为响应细胞中不断变化的能量需求,无嵴线粒体的产生分离了线粒体内相互竞争谷氨酸的氧化与还原代谢途径,使不同的线粒体亚群侧重于不同的任务,维持了细胞能量产生与生物合成之间的稳态。
4 无嵴线粒体的发生机制
线粒体是动态变化的细胞器,哺乳动物细胞通常含有50到1000个线粒体,它们通过不断地融合和分裂以适应细胞的需要,消除损伤与缺陷。线粒体的融合和分裂过程对于无嵴P5CS线粒体的形成至关重要,它是实现将P5CS细丝分配到无嵴P5CS线粒体亚群和将ATP合酶分配到具嵴线粒体亚群所必需的过程(图3)。
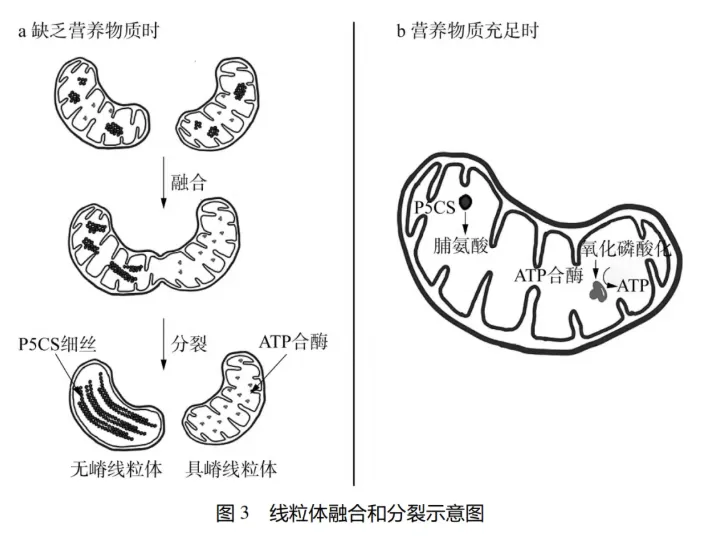
无嵴P5CS线粒体的形成依赖于关键步骤:① 融合启动。当营养应激时,线粒体首先依赖线粒体融合蛋白1(MFN1)和线粒体融合蛋白2(MFN2)进行相互融合。② 蛋白分区。融合后线粒体通过P5CS聚集成蛋白质细丝。③ 分裂成型。细胞招募和寡聚线粒体外膜分裂蛋白(MFF、MID49、MID51和FIS1)和DRP1蛋白来调节线粒体分裂过程。线粒体通过分裂产生富含P5CS和ATP合酶的两种线粒体亚型,前者优先参与还原代谢合成脯氨酸,后者则优先参与氧化磷酸化合成ATP。总之,细胞营养应激时,脯氨酸和鸟氨酸的限速酶P5CS会转移到缺乏嵴和ATP合酶的线粒体中,这个过程是由P5CS聚集成原纤维细丝、线粒体融合和分裂反复循环共同驱动的。
5 与高中生物学教学的联系
在人教版必修一第5章第3节“细胞呼吸的原理和应用”中,教材详细介绍了线粒体在有氧呼吸中的作用,简要介绍了线粒体可充当细胞的代谢枢纽。无嵴P5CS线粒体可从以下方面拓展教学:① 结构与功能适应性:通过对比具嵴与无嵴线粒体的结构差异,使学生深刻理解“结构与功能相适应”的生命观念;② 代谢动态平衡:结合三羧酸循环过程与氨基酸合成途径,阐释线粒体在能量与物质代谢中的分工机制,体现细胞内稳态调控的复杂性;③ 科学研究前沿:以近年高考试题中线粒体结构碎片化(2024年广东卷)、线粒体的分裂增殖(2023年天津卷)科研情境为载体,引入营养应激线粒体的分化分工模型,培养学生结合学科前沿对科研热点问题的分析与综合运用能力。
6 问题与展望
无嵴P5CS线粒体的研究正逐渐发展成为线粒体生物学的一个新兴热点。无嵴P5CS的研究仍面临诸多挑战:① 分子调控机制:P5CS细丝形成的信号通路、嵴结构消失的分子调控机制尚不明确;② 癌症治疗潜力:线粒体的分工机制是癌细胞在面临营养匮乏时的关键生存策略,这为治疗肿瘤提供了新的靶点:通过破坏癌细胞代谢的适应性改变抑制肿瘤的生长,但靶向P5CS线粒体的代谢通路能否成为广谱抗癌策略,有待在更多癌种中验证;③ 进化保守性:无嵴线粒体在其他类型癌细胞中的功能是否保守尚不明确。