ARTICLE · 1148787
高中生物疑难问题讲稿:氢键的本质、DNA碱基配对与解旋机制
高中生物疑难问题讲稿:氢键的本质、DNA碱基配对与解旋机制
开场导入
同学们,今天这节课我们要来攻克一个在高中生物中反复出现、但很多同学一直停留在“背结论”层面的核心概念——氢键。
我在批改作业的时候经常发现这样的现象:同学们都能背出“A和T之间是两个氢键,G和C之间是三个氢键”“DNA加热会解旋”,但如果我追问一句:氢键到底是个什么样的化学键?它算不算真正的化学键?为什么水在常温下是液体,而同样大小的分子却是气体?为什么G和C之间恰好是三个氢键,而不是两个或者四个?DNA解旋酶又是怎么把这个氢键“剪断”的?很多同学就答不上来了。
今天我们就从大学生物化学和细胞生物学的视角,把氢键的本质、水分子间氢键与液态水的关系、DNA碱基配对的氢键数目、DNA热变性的原理以及解旋酶的作用机制,一个一个彻底讲清楚。
一、氢键是什么?它算不算“真正的化学键”?
1.1氢键的定义
我们先给氢键下一个严格的定义。氢键是一种静电相互作用,由两个电负性元素(最常见的是氧、氮或氟)共享一个质子而形成。用公式表示就是:
D—H···A
其中D是氢供体,A是氢受体。D—H之间是共价键,H···A之间就是氢键。氢键通常用虚线或点线表示,以区别于实线表示的共价键。
1.2氢键的本质:偶极-偶极相互作用
要理解氢键的本质,我们需要从电负性说起。在O—H键中,氧原子的电负性(3.44)远大于氢原子(2.20),因此氧原子会把共用电子对强烈地拉向自己。结果就是:氧原子带部分负电荷(δ⁻),氢原子带部分正电荷(δ⁺)。
当这个带部分正电荷的氢原子靠近另一个电负性原子(比如另一个水分子中的氧原子)时,由于静电吸引力,氢原子和氧原子之间就形成了一种弱的相互作用——这就是氢键。
所以,氢键的本质是偶极-偶极相互作用,是一种静电引力,而不是像共价键那样的“共享电子对”。
1.3氢键的强度:弱,但“三个臭皮匠顶个诸葛亮”
氢键的一个重要特征是弱。在生物体系中,氢键的能量通常在25kJ/mol以下。相比之下,O—H共价键的键能约为463kJ/mol,C—C共价键的键能约为347kJ/mol。也就是说,氢键的强度只有共价键的1/20到1/10。
但氢键的“弱”恰恰是它在生物体系中如此重要的原因。正因为弱,它才能在生理条件下可逆地形成和断裂,实现动态调控。如果氢键像共价键那么强,DNA就无法解旋,酶就无法催化反应,生命活动就根本无法进行。
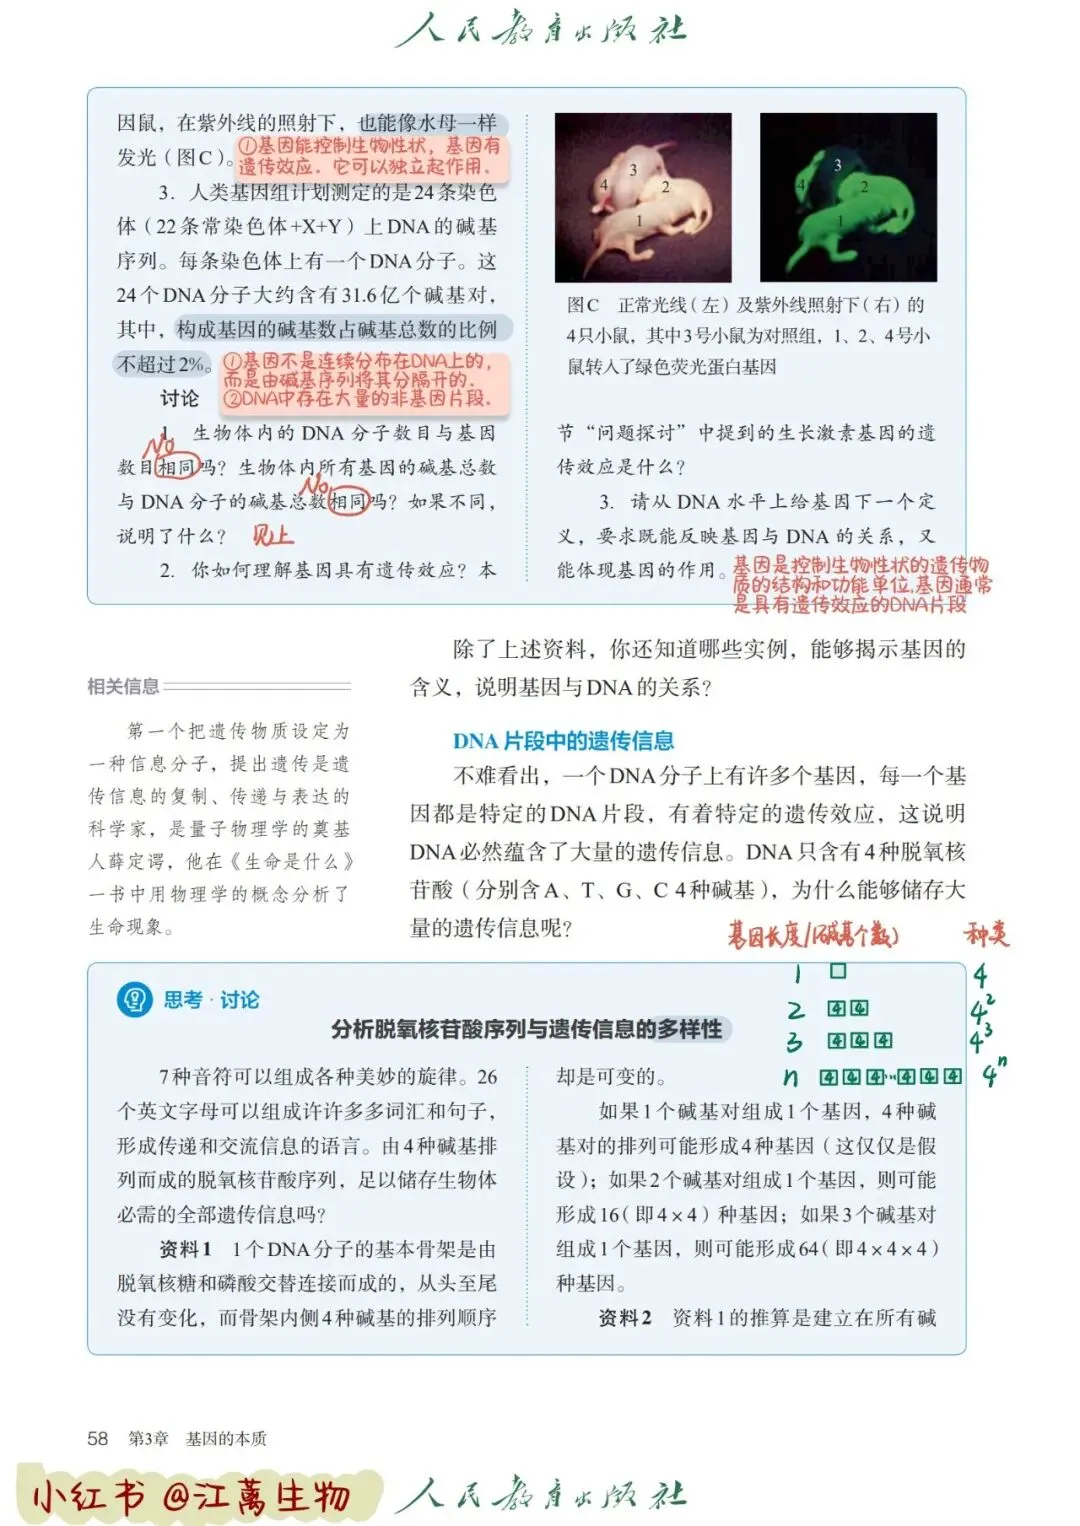
然而,单个氢键虽然弱,但大量氢键的协同作用可以产生极强的结构稳定性。DNA双螺旋中,一个染色体上的氢键数量可以达到数百万甚至数千万个,这些氢键的集体力量足以维持双螺旋的稳定。
1.4氢键的方向性
氢键还有一个重要特征:方向性。当D—H···A三个原子共线(即键角为180°±15°)时,氢键最强(最稳定)。这种方向性使得氢键能够在分子间形成精确的、有规律的排列,这正是DNA碱基配对特异性以及蛋白质二级结构(如α-螺旋和β-折叠)形成的分子基础。
二、氢键与水为什么在常温下是液体?
2.1水分子是“氢键之母”
水分子是自然界中最典型的氢键体系。每个水分子有两个氢原子(可作为氢键供体)和两对孤对电子(位于氧原子上,可作为氢键受体)。因此,一个水分子最多可以与四个相邻的水分子形成氢键,形成近似正四面体的氢键网络。
在冰中,每个水分子都与四个邻近水分子形成完整的氢键网络,形成规则的四面体晶体结构。由于氢键的方向性,冰的结构中有约35%的空间是空的,所以冰的密度比水小,冰能浮在水面上。
2.2液态水中的氢键网络
当冰融化成液态水时,氢键网络并没有被完全破坏。事实上,融化过程只需要破坏约15%的氢键——也就是说,液态水中保留了大部分冰中的氢键。
研究表明,在室温(22°C)下,约52%的水分子仍然保持四个氢键,而48%的水分子有三个氢键。这些氢键处于不断的断裂和重新形成之中,平均寿命约为1皮秒(10⁻¹²秒)。所以,液态水中的氢键网络是一个动态的、不断变化的三维网络,而不是像冰那样的静态晶体。
2.3氢键对水沸点的巨大影响
现在我们来思考一个关键问题:为什么水在常温下是液体,而分子大小相近的氨(NH₃)却是气体?
答案就在氢键。水的沸点是100°C,氨的沸点是-33°C,两者相差133°C。这个巨大的差异,主要归功于水分子之间氢键网络的强大内聚力。
液态水中保留的大量氢键,使得水分子之间存在着强大的相互吸引力。要把水分子从液态变成气态(即沸腾),就必须打破这些氢键。这个过程需要大量的能量——这就是水的高汽化热(约40.7kJ/mol)和高沸点的原因。
反过来看,氨分子虽然也能形成氢键,但氮的电负性(3.04)比氧(3.44)小,N—H···N氢键的强度比O—H···O氢键弱得多。因此,氨分子之间的相互吸引力远小于水分子,氨在常温下就是气体。
一句话总结:氢键是水在常温下保持液态的根本原因。如果没有氢键,水在室温下就是气体,地球上就不可能有液态水,也就不会有生命。
三、DNA碱基配对:为什么A和T是两个氢键,G和C是三个?
3.1碱基配对的基本规则
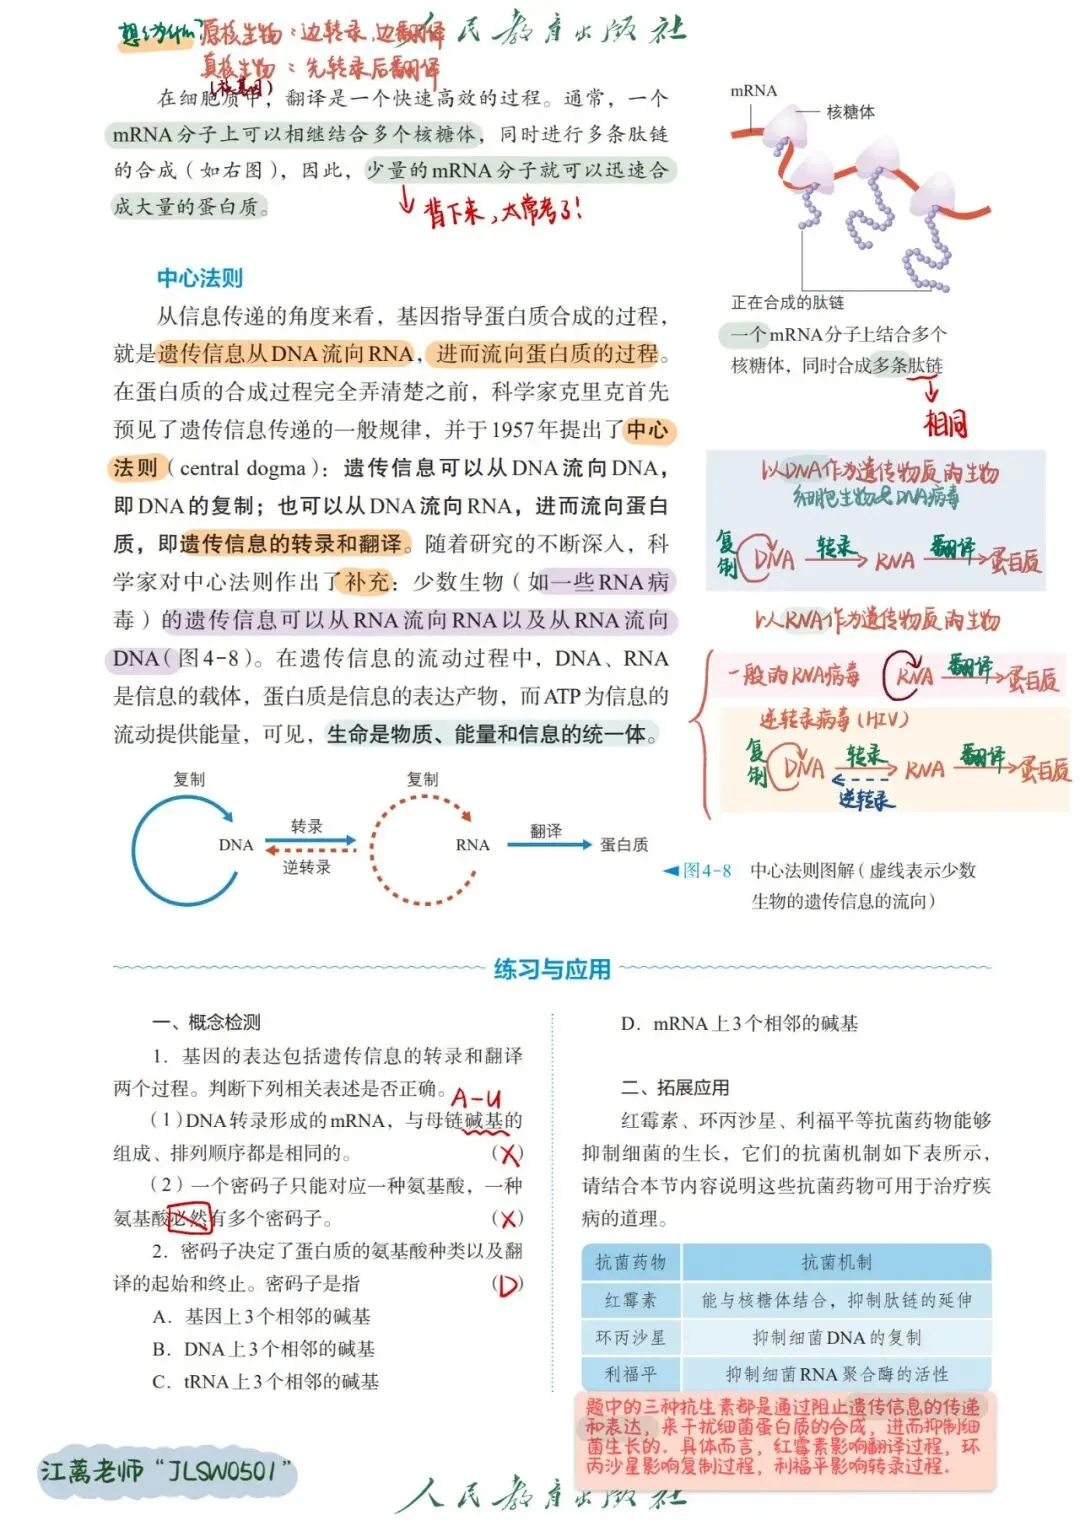
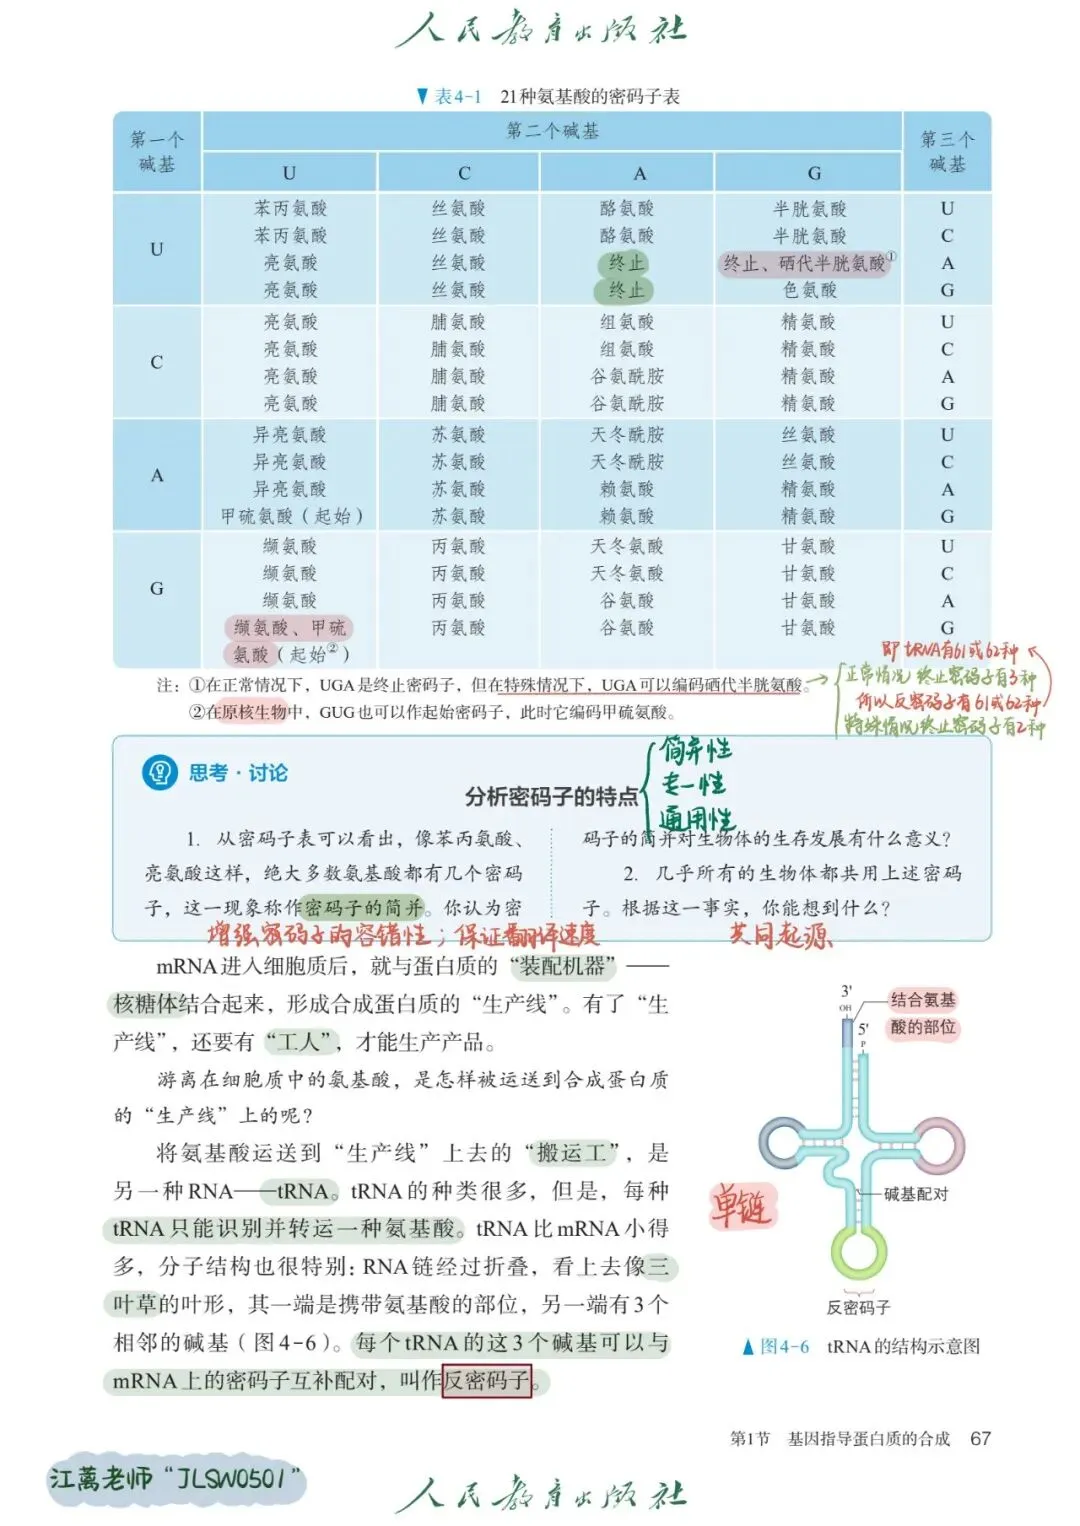
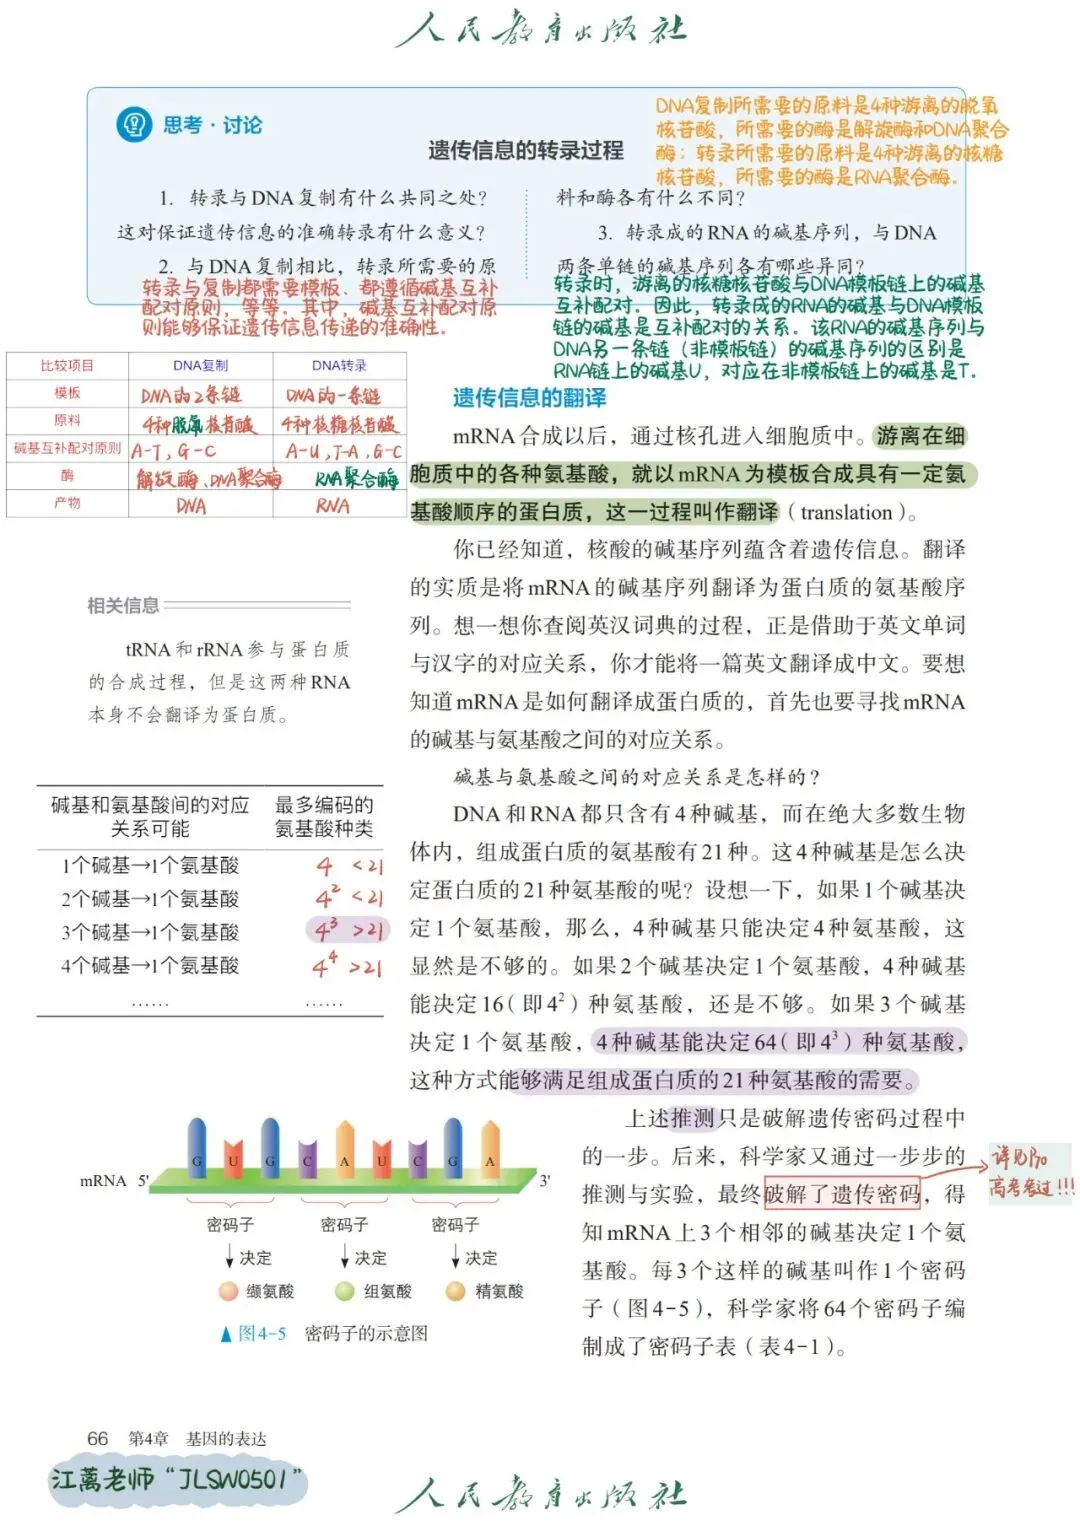
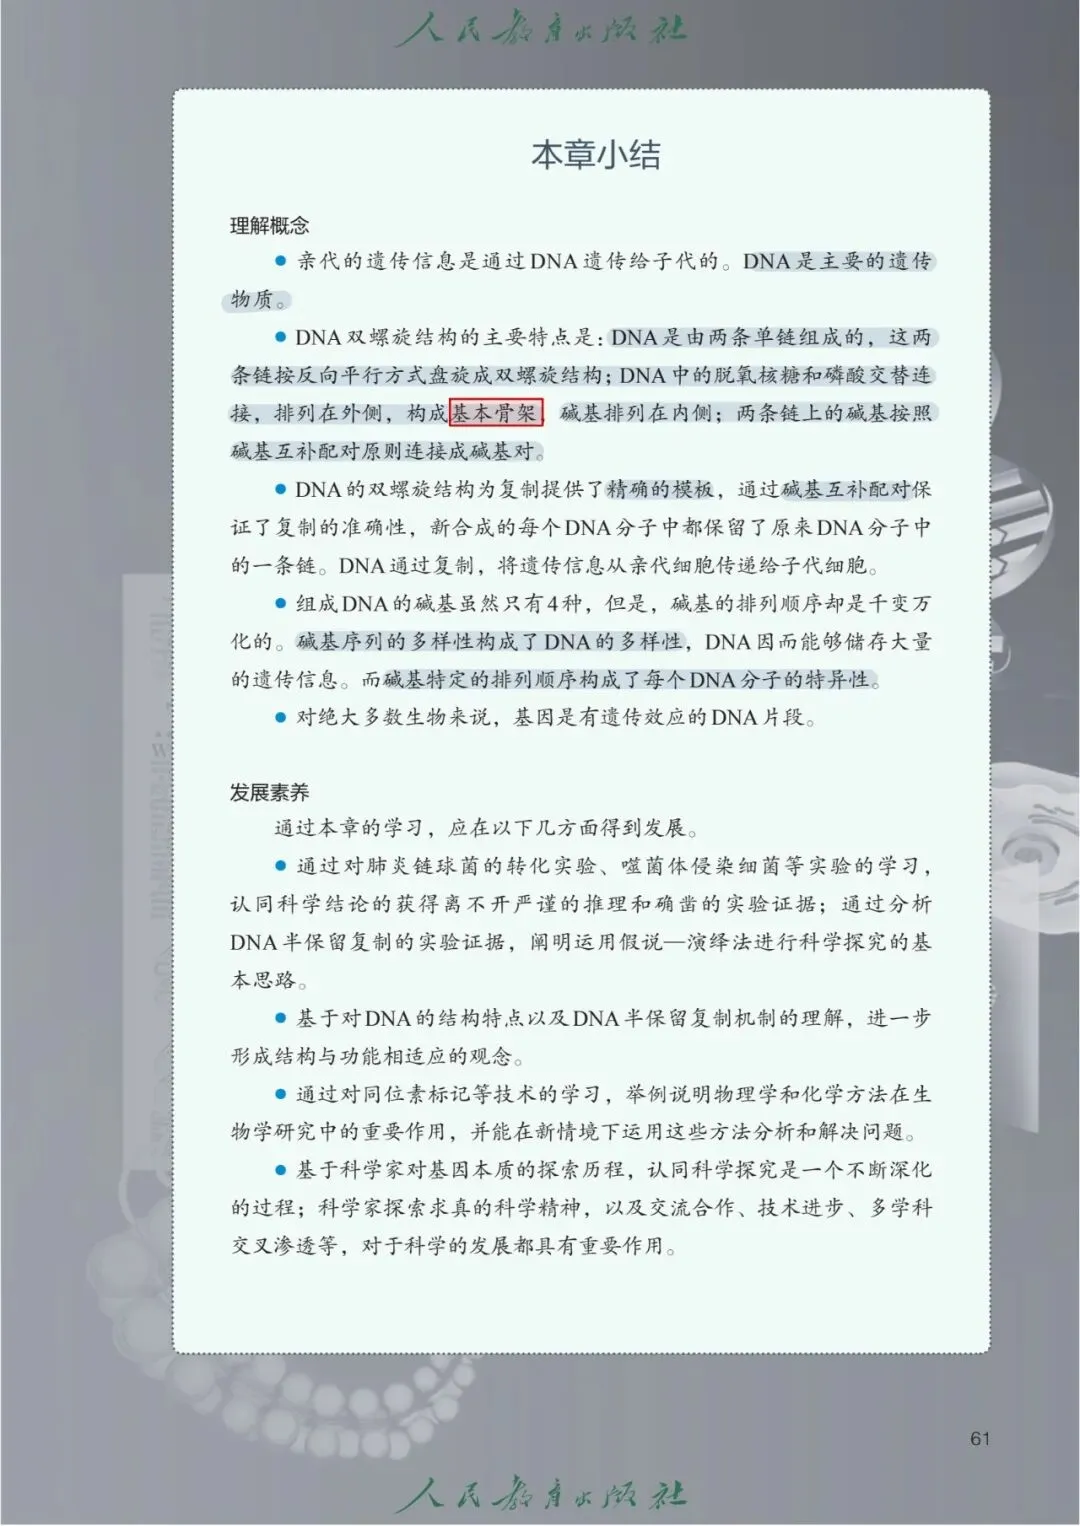
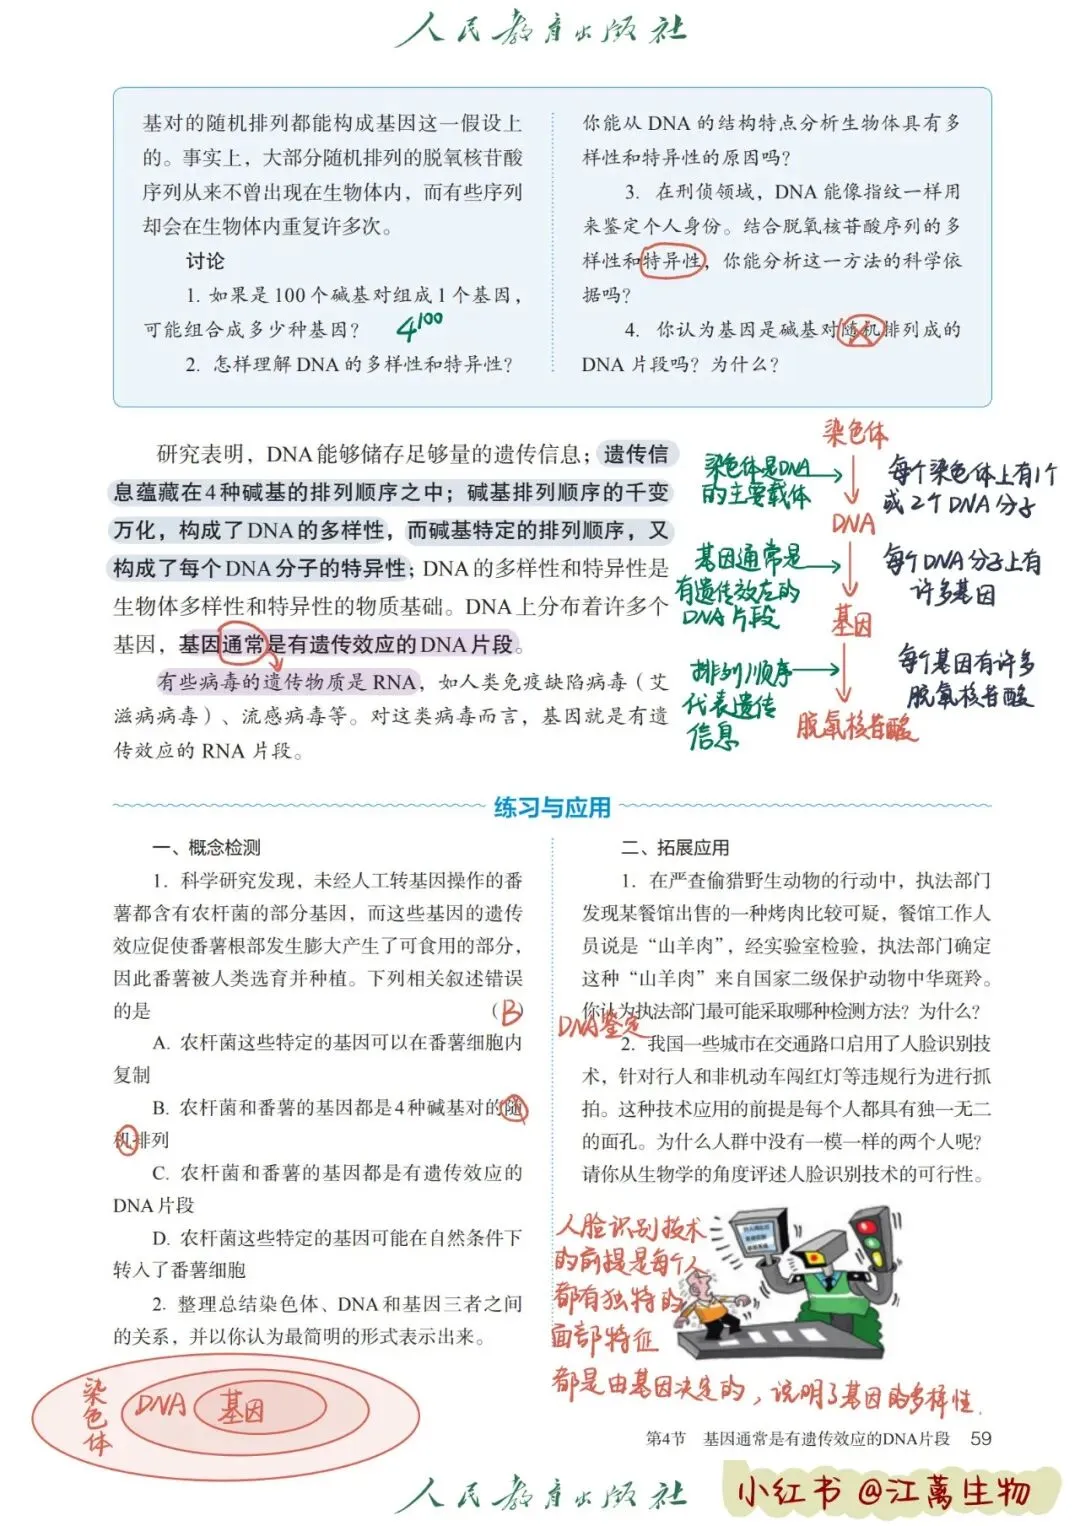
在DNA双螺旋中,碱基配对遵循严格的特异性:腺嘌呤(A)与胸腺嘧啶(T)配对,形成两个氢键;鸟嘌呤(G)与胞嘧啶(C)配对,形成三个氢键。
为什么会有这样的配对规则?这背后有两个层面的原因:空间匹配和化学匹配。
3.2空间匹配:嘌呤必须配嘧啶
首先,从空间结构上看,A和G是嘌呤(双环结构),T和C是嘧啶(单环结构)。在DNA双螺旋中,碱基对的空间距离是10.85Å。如果两个嘌呤配对,两个双环结构加在一起太大,无法容纳在这个空间中;如果两个嘧啶配对,两个单环之间的距离又太大,无法形成氢键。只有嘌呤和嘧啶配对,才能完美地嵌入双螺旋结构中,并且足够接近以形成氢键。
3.3化学匹配:氢键供体与受体的精确互补
第二个原因,也是更关键的原因,在于化学结构的互补性。
我们来看A和T的配对。腺嘌呤的Watson-Crick边(即参与配对的那一边)上有一个氨基(-NH₂,氢键供体)和一个氮原子(=N-,氢键受体)。胸腺嘧啶的Watson-Crick边上有一个羰基氧(=O,氢键受体)和一个氨基氢(-NH-,氢键供体)。腺嘌呤的氨基氢正好对着胸腺嘧啶的羰基氧,胸腺嘧啶的氨基氢正好对着腺嘌呤的氮原子——两对供体-受体完美匹配,恰好形成两个氢键。
再来看G和C的配对。鸟嘌呤的Watson-Crick边上有三个氢键位点:一个羰基氧(受体)、一个氨基氢(供体)、一个氮原子(受体)。胞嘧啶的Watson-Crick边上也有三个氢键位点:一个氨基氢(供体)、一个氮原子(受体)、一个羰基氧(受体)。鸟嘌呤的三个位点与胞嘧啶的三个位点完美互补,恰好形成三个氢键。
3.4为什么A不能和C配对?
这里有一个常见的问题:为什么腺嘌呤不能和胞嘧啶配对?
答案在于供体-受体的不匹配。胞嘧啶的Watson-Crick边上有一个氨基氢(供体)占据了一个位置,这个位置恰好与腺嘌呤上某个氢键位点“冲突”——如果把A和C放在一起,某个氢原子会“撞车”,无法形成有效的氢键网络。同样,鸟嘌呤也不能和胸腺嘧啶配对,因为它们之间的供体-受体分布也不互补。
3.5G-C含量与DNA稳定性
由于G-C对有三个氢键,而A-T对只有两个,因此G-C含量越高的DNA分子越稳定。这一点在DNA热变性中表现得尤为明显:高G-C含量的DNA需要更高的温度才能解链。
这也解释了为什么嗜热菌(生活在高温环境中的细菌)的基因组往往具有较高的G-C含量——这是它们在高温环境中维持DNA稳定性的进化策略。
四、加热为什么能让DNA解旋?
4.1DNA热变性的本质
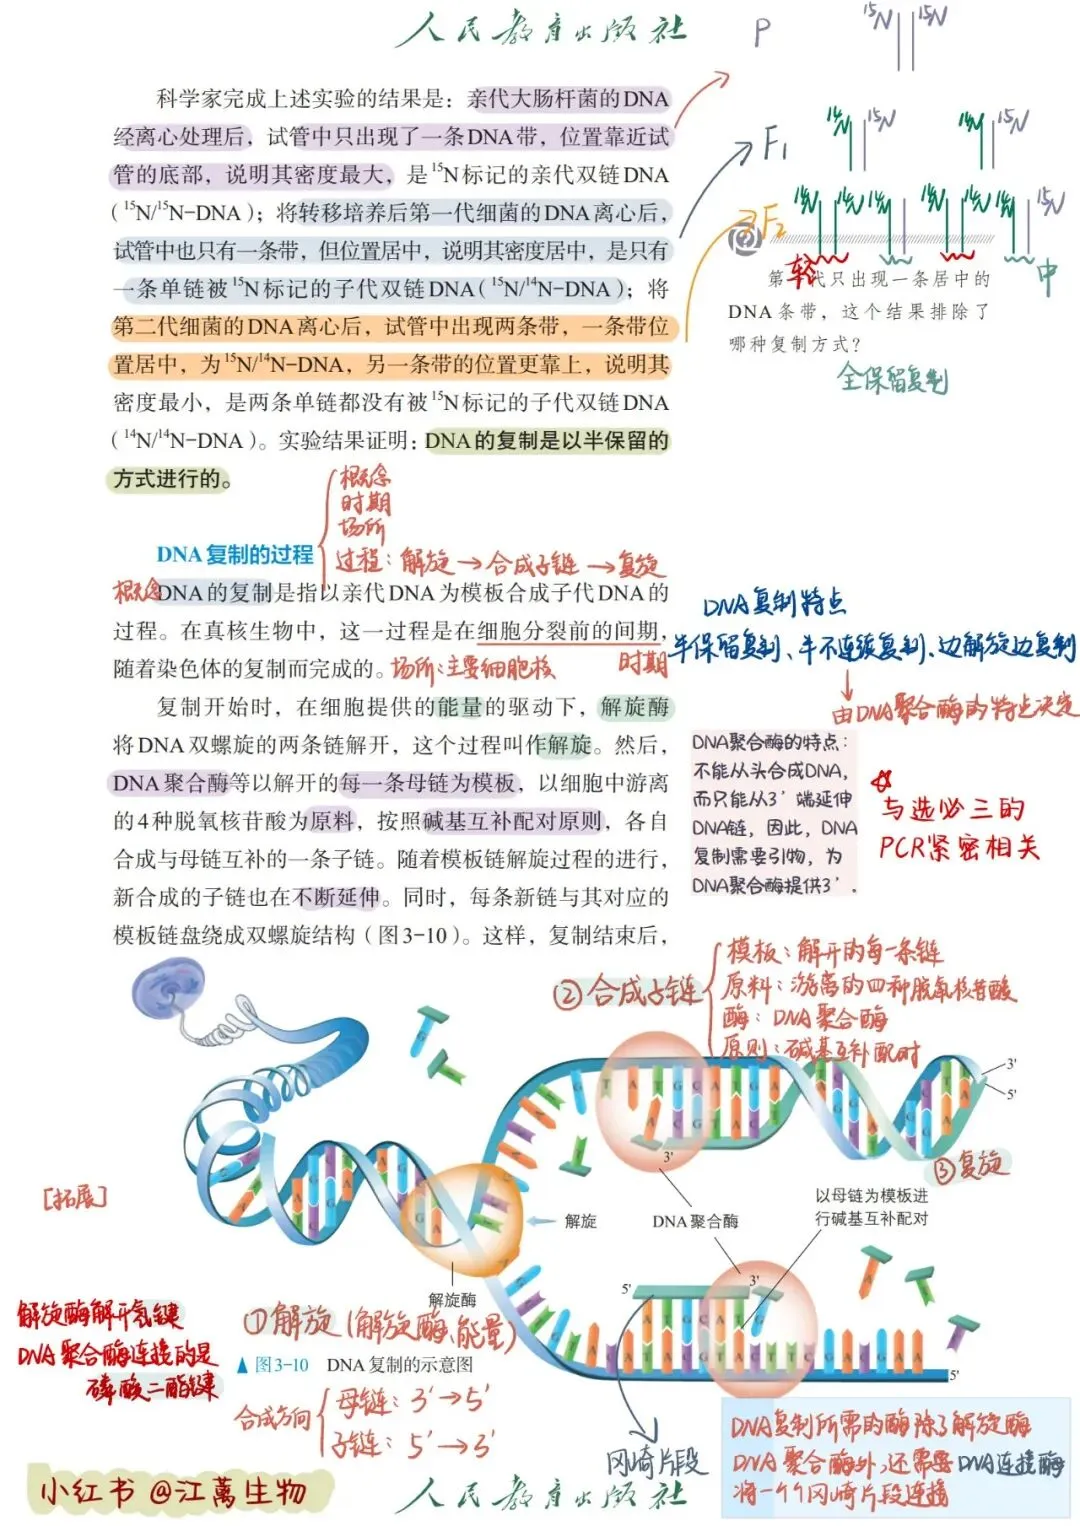
DNA双螺旋的稳定性依赖于两个主要因素:碱基对之间的氢键和碱基堆积力(相邻碱基之间的范德华力)。当DNA溶液被加热到一定温度时,分子的热运动加剧,足以克服维持双螺旋的弱相互作用力——主要是氢键被破坏,两条链逐渐分离。这个过程被称为DNA变性或DNA解链。
4.2解链温度(Tm)
DNA变性是一个渐进的、协作的过程,而不是在某个温度突然全部打开。科学家用解链温度(Tm)来描述DNA变性的难易程度。Tm被定义为50%的DNA双链被解链时的温度。
Tm的高低取决于以下几个因素:
G-C含量:G-C含量越高,Tm越高,因为G-C对有三个氢键,比A-T对更稳定。
盐浓度:盐浓度越高,Tm越高。因为盐中的正离子可以中和DNA磷酸骨架上的负电荷,减少两条链之间的静电排斥,使双螺旋更稳定。
pH:极端的pH(过酸或过碱)会破坏氢键,导致DNA变性。
分子长度:DNA分子越长,所含的氢键总数越多,完全解链需要的能量就越多,Tm也越高。
对于大多数生物体的DNA,Tm范围在80°C到100°C之间。
4.3加热解链是可逆的
一个重要的特点是,DNA热变性是可逆的。如果缓慢降温,两条互补的单链可以重新配对,恢复成双螺旋结构,这个过程被称为复性或退火。这也是PCR(聚合酶链式反应)技术的基础——通过加热使DNA变性,再降温使引物与模板退火,实现DNA的体外扩增。
4.4富含A-T的序列是“薄弱环节”
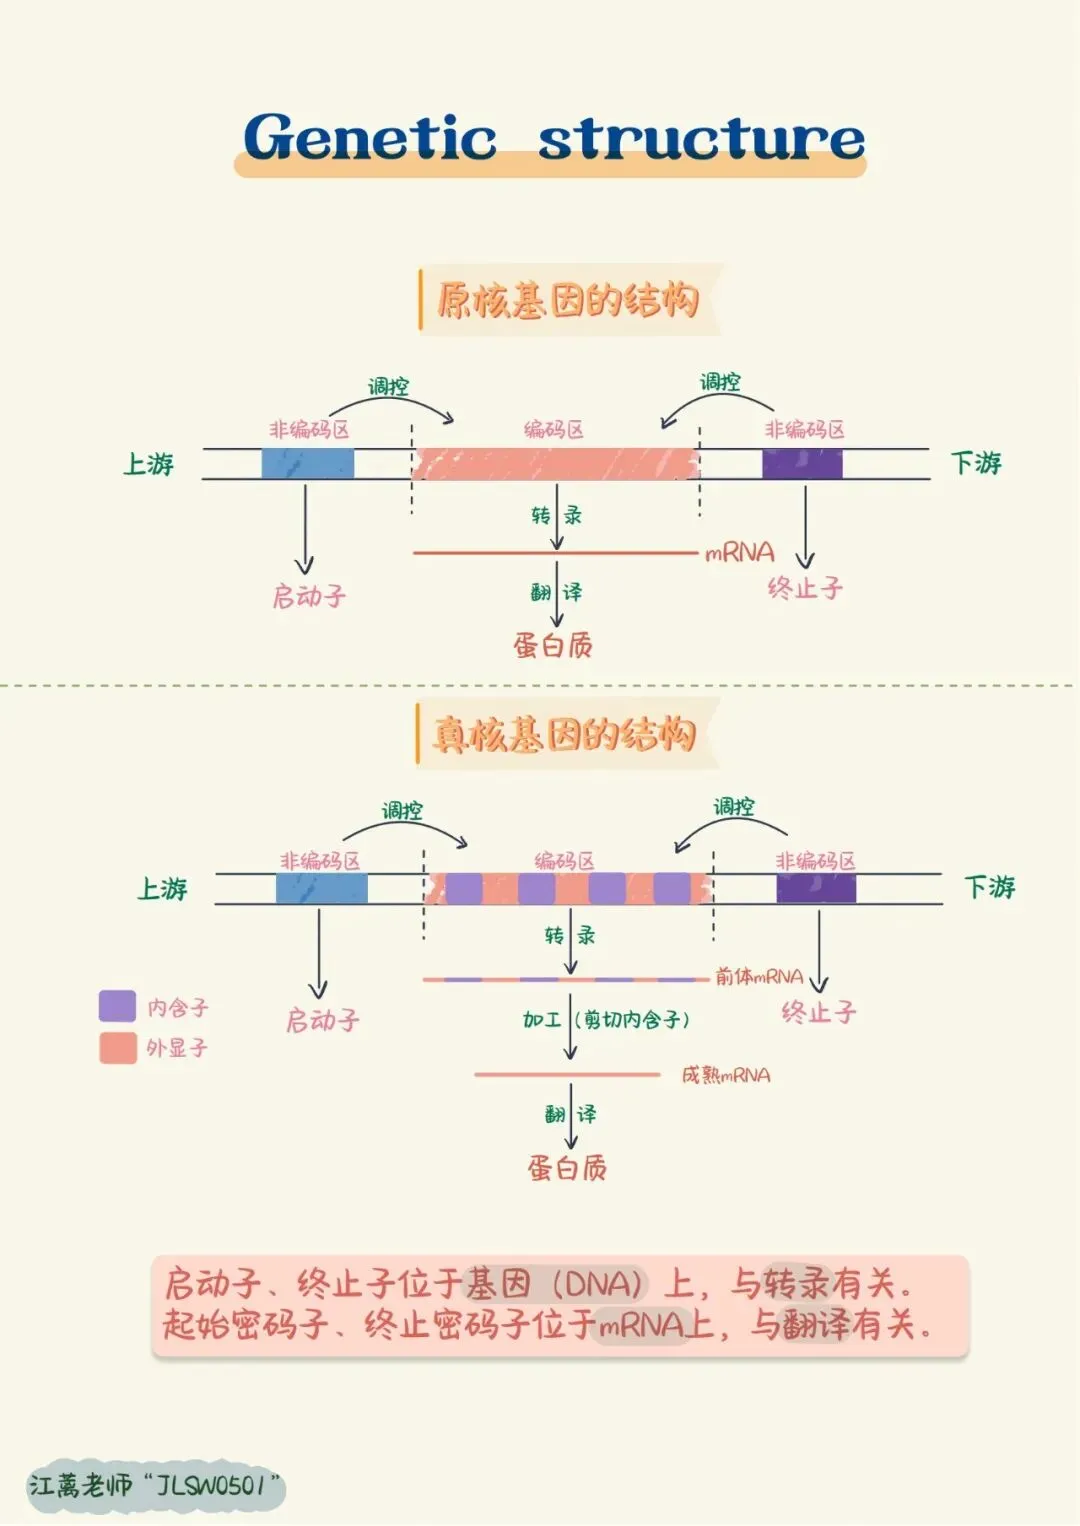
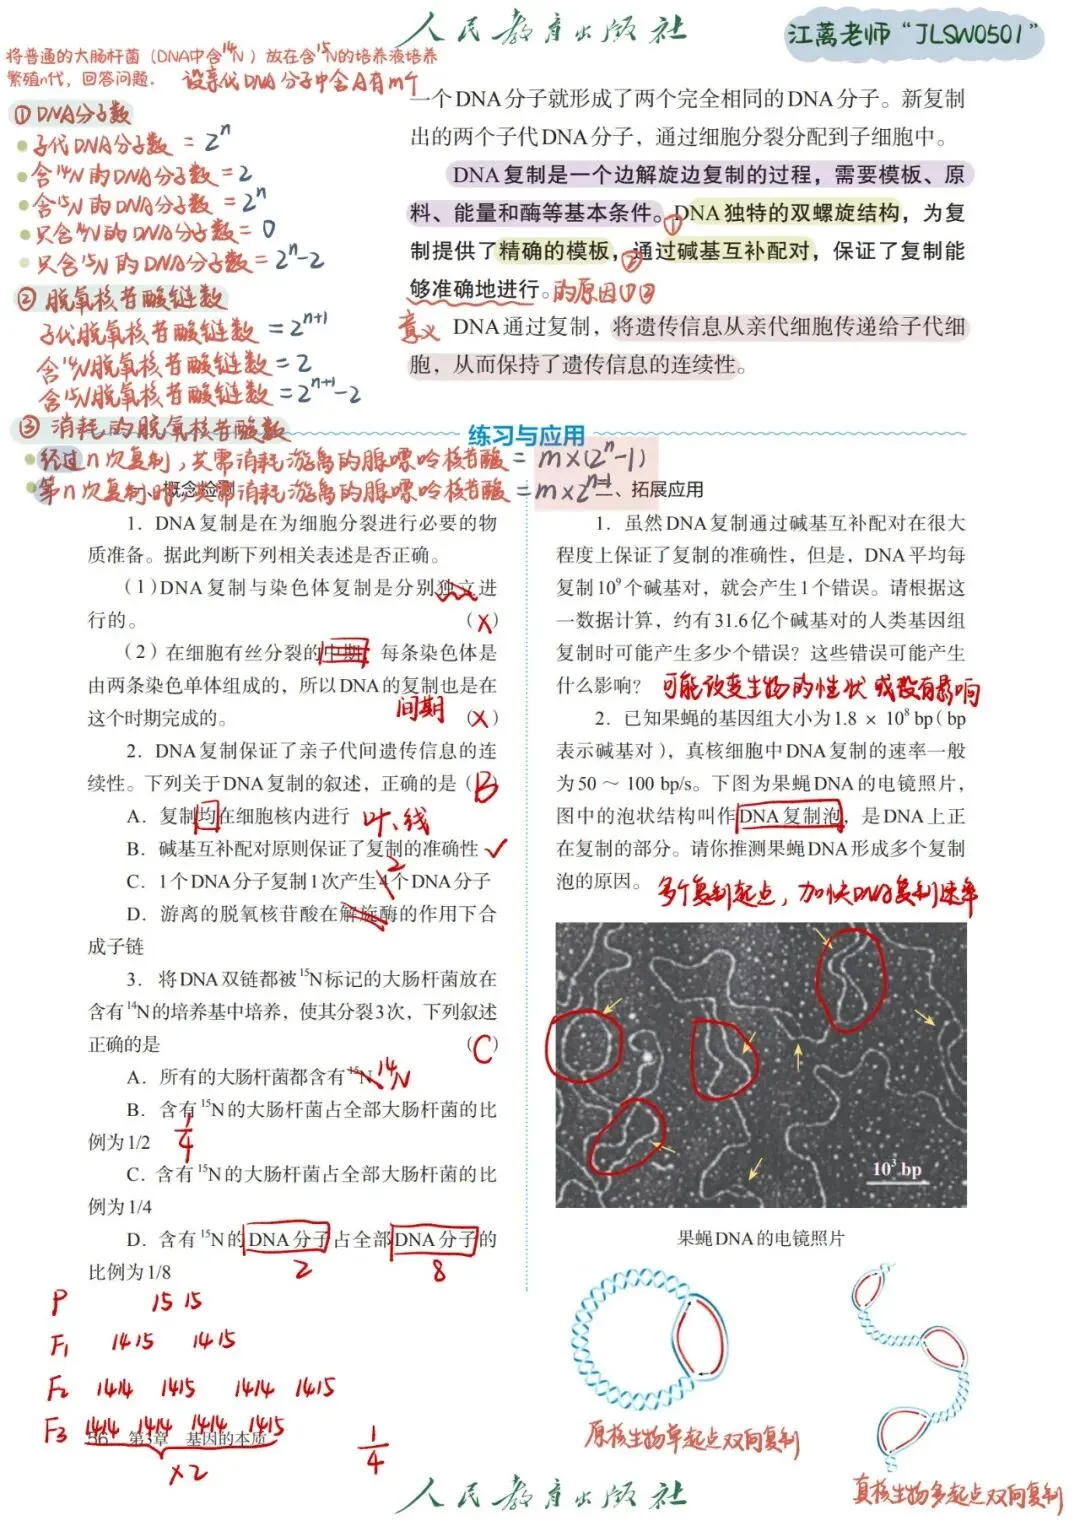
在DNA复制中,复制起点往往位于富含A-T的序列中,这些序列被称为DNA解旋元件(DUE)。原因很简单:A-T对只有两个氢键,比G-C对更容易被打开。细胞利用这一“工程化的薄弱点”作为复制的起始位置,通过DnaA等起始蛋白施加扭转应力,使富含A-T的区域优先解链。
五、DNA解旋酶是怎样断开氢键的?
5.1解旋酶是什么?
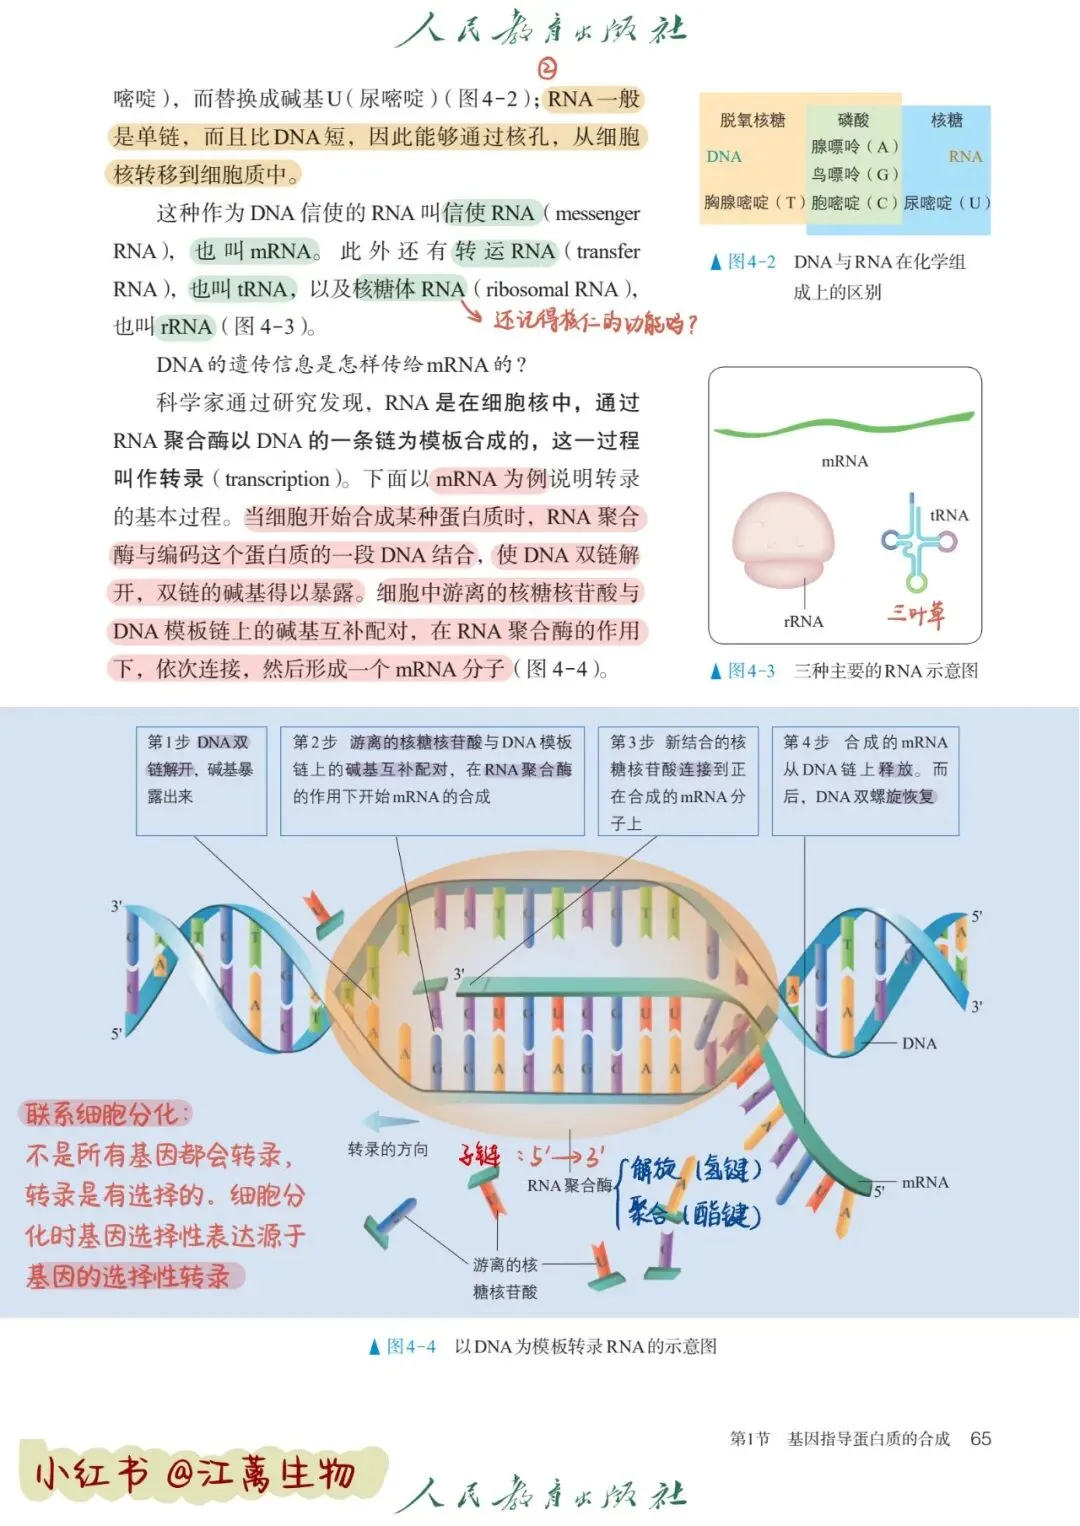
DNA解旋酶是一类分子马达蛋白,它们利用ATP水解产生的能量将双链DNA分离成单链。解旋酶在DNA复制、修复、重组和转录等几乎所有核酸代谢过程中都发挥着关键作用。
5.2解旋酶的分类与结构
解旋酶可以根据其寡聚结构、保守基序、解旋方向等多种特征进行分类。在DNA复制中起主要作用的是复制解旋酶,它们通常以六聚体形式存在——六个亚基围成一个中央孔道,单链DNA从这个孔道中穿过。
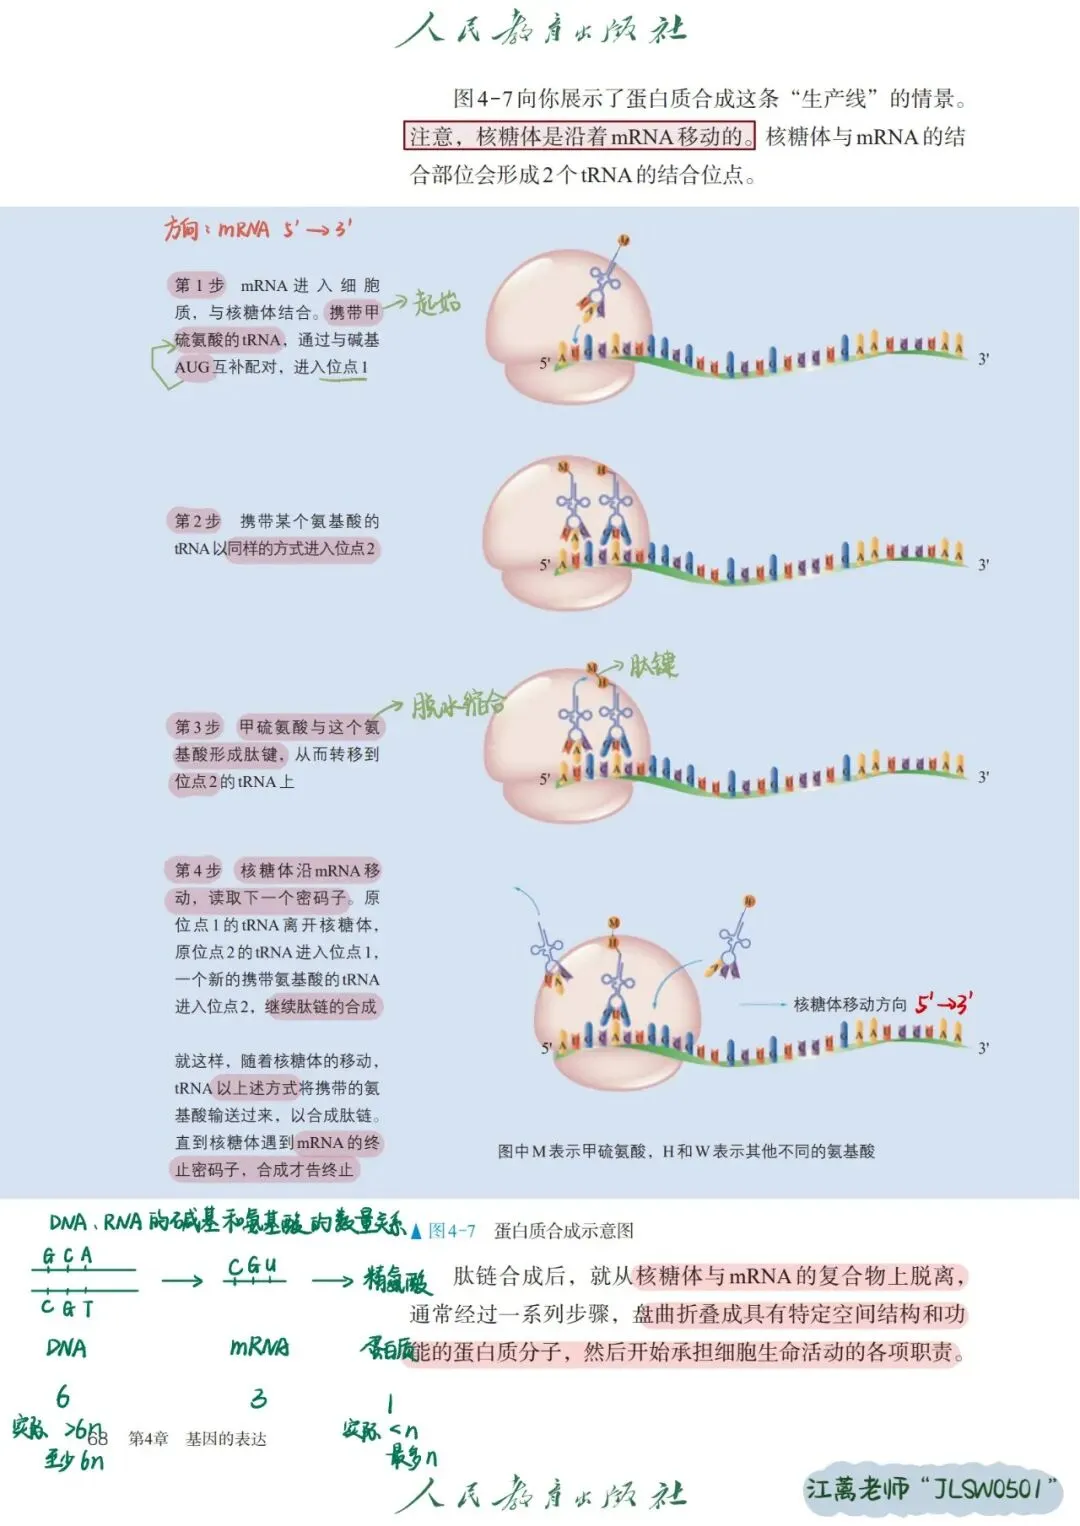
以大肠杆菌的DnaB解旋酶为例,它结合在后随链模板上,沿着5'→3'方向移动;而真核生物的MCM解旋酶则结合在前导链模板上,沿3'→5'方向移动。
5.3解旋酶如何“剪断”氢键?
解旋酶断开氢键的机制,可以理解为一种主动的、耗能的机械撕裂过程。
第一步:结合。解旋酶首先结合到DNA的单链区域或单链/双链交界处。
第二步:ATP水解。解旋酶的每个亚基都有一个ATP结合位点,具有内在的ATPase活性,能够将ATP分解为ADP和无机磷酸。
第三步:构象变化。ATP水解释放的能量驱动解旋酶亚基发生构象变化。六个亚基相互之间发生相对位移,产生一种“旋转”或“挤压”的运动,使解旋酶沿着DNA链单向移动。
第四步:强行分离。当解旋酶沿着DNA链移动时,它就像一个“分子楔子”,强行插入双螺旋的碱基对之间,将氢键逐个打断。解旋酶并不是像剪刀一样“切断”氢键,而是通过施加机械力,将两条链“拉开”。
解旋酶的工作方式可以用一个比喻来理解:想象你把两只手交叉握在一起(手指之间的力相当于氢键),然后你用力把两只手分开——氢键就是被这样“拉开”的。
5.4解旋酶不是“一个人在工作”
解旋酶在解旋过程中需要与其他蛋白协同工作:
单链结合蛋白(SSB):解旋酶把双链打开后,暴露出来的单链很容易重新配对(形成发夹结构)或被核酸酶降解。SSB蛋白结合到单链DNA的糖-磷酸骨架上,将单链拉直并保护起来,防止其重新退火或形成二级结构。
拓扑异构酶:解旋酶沿着DNA移动时,前方会产生正超螺旋(DNA过度缠绕),后方会产生负超螺旋。拓扑异构酶负责切断和重新连接DNA骨架,释放这种扭转压力,使解旋酶能够继续前进。
六、常见误区辨析
误区一:氢键是一种化学键。
严格来说,氢键不是化学键。化学键是指原子间通过共享电子或电子转移形成的强相互作用(离子键、共价键、金属键)。氢键是一种分子间或分子内的弱相互作用,属于静电作用范畴。但在生物学中,为了表述方便,我们常把它称为“键”。
误区二:氢键很强,所以DNA很稳定。
氢键本身很弱(<25kJ/mol),但DNA的稳定性来自于大量氢键的协同作用以及碱基堆积力。单个氢键容易断裂,但数百万个氢键的集体力量可以维持双螺旋的稳定。
误区三:加热DNA时,共价键被破坏了。
加热DNA只破坏氢键,不破坏共价键(磷酸二酯键和糖苷键)。所以加热后的DNA仍然是两条完整的单链,只是它们之间的“拉链”被拉开了。
误区四:解旋酶像剪刀一样“剪断”氢键。
解旋酶不是“剪断”氢键,而是通过ATP水解提供的机械力,将两条链“拉开”。氢键的断裂是被动的物理分离过程,不是化学键的切割。
误区五:水在常温下是液体只是因为水分子小。
分子大小不是主要原因。氨(NH₃)的分子量比水(H₂O)还小,但氨在常温下是气体。水在常温下是液体的根本原因是氢键网络提供的强大内聚力。
七、总结
同学们,今天这节课的核心内容可以概括为以下几点:
氢键是一种由电负性原子(O、N、F)与带部分正电荷的氢原子之间的静电相互作用。它很弱(<25kJ/mol),但有方向性,当D—H···A三个原子共线时最强。
水分子有两个氢键供体和两个氢键受体,最多可与四个邻近水分子形成氢键。液态水中约52%的水分子保持四个氢键,氢键平均寿命约1皮秒。氢键网络是水在常温下保持液态的根本原因。
DNA碱基配对中,A与T形成两个氢键,G与C形成三个氢键。氢键数目的差异源于碱基Watson-Crick边上氢键供体和受体的精确互补,以及嘌呤-嘧啶配对的10.85Å空间限制。
加热DNA会破坏碱基对之间的氢键,使双螺旋解链。解链温度Tm随G-C含量的升高而升高,因为G-C对有三个氢键,比A-T对更稳定。富含A-T的序列是复制起点的“薄弱环节”,因为A-T对更容易被打开。
DNA解旋酶是ATP驱动的分子马达蛋白,通过水解ATP获得能量,沿DNA链单向移动,以机械力将双链“拉开”。解旋酶需要SSB蛋白和拓扑异构酶的协同配合,才能高效完成解旋过程。
参考文献
[1]NelsonDL,CoxMM.LehningerPrinciplesofBiochemistry(7thed.)[M].NewYork:W.H.FreemanandCompany,2017.
[2]王镜岩,朱圣庚,徐长法.生物化学(第3版)[M].北京:高等教育出版社,2002.
[3]TutejaN,TutejaR.UnravelingDNAhelicases:motif,structure,mechanismandfunction[J].EuropeanJournalofBiochemistry,2004,271(10):1849-1863.
[4]翟中和,王喜忠,丁明孝.细胞生物学(第4版)[M].北京:高等教育出版社,2011.
[5]BergJM,TymoczkoJL,StryerL.Biochemistry(8thed.)[M].NewYork:W.H.FreemanandCompany,2015.