ARTICLE · 1123462
【高中生物学拓展】长着“四翼”,就一定会飞吗?赫氏近鸟龙带来的演化启示
长着“四翼”,就一定会飞吗?赫氏近鸟龙带来的演化启示
有羽毛、有翅膀,就一定会飞吗?
生活在约1.6亿年前的赫氏近鸟龙,为这个问题留下了一份特别的化石记录。它的前肢和后肢都长着显著的长羽,呈现出引人注目的“四翼”形态。但拥有这样的外表,并不等于拥有飞行能力。
关于它能否飞行,科学家长期存在不同判断。2025年发表的一项研究,从翼部结构和换羽痕迹出发,为“近鸟龙不具备飞行能力”的解释增加了证据。它带来的启示,也比“有翅膀却不会飞”更丰富:理解演化,需要分清我们看到了什么,以及据此能够推断什么。[1]
一、“四翼”记录的是形态,不是飞行证明
赫氏近鸟龙(Anchiornis huxleyi)是一种生活在晚侏罗世的小型兽脚类恐龙,化石发现于中国东北地区。2009年发表的研究,使它成为认识鸟类起源的重要材料。这个新物种被命名为赫氏近鸟龙(Anchiornishuxleyi)。属名Anchiornis的含义是 “接近鸟类”,用来体现它的过渡特征;种名huxleyi,是为纪念最早提出鸟类源自恐龙猜想的英国学者托马斯・亨利・赫胥黎。
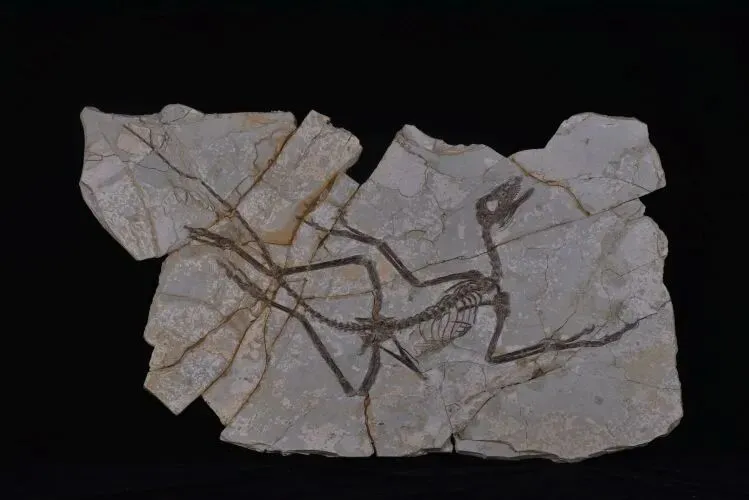
它最醒目的特征,是前后肢上发育的长羽。因此,“四翼恐龙”是对其羽毛分布的形象描述,并不表示它拥有四套像现代鸟翼那样运作的飞行器官。[2]
在演化关系上,近鸟龙属于接近鸟类起源的副鸟类。不同研究曾将它放在伤齿龙类或早期鸟翼类附近;这些具体位置仍有分歧。“属于副鸟类”也不意味着更细的分类问题已经解决。[1]
它的重要性,在于保存了一组有助于理解鸟类起源的性状,而不能仅凭年代较早,就认定它是现代鸟类的直接祖先。
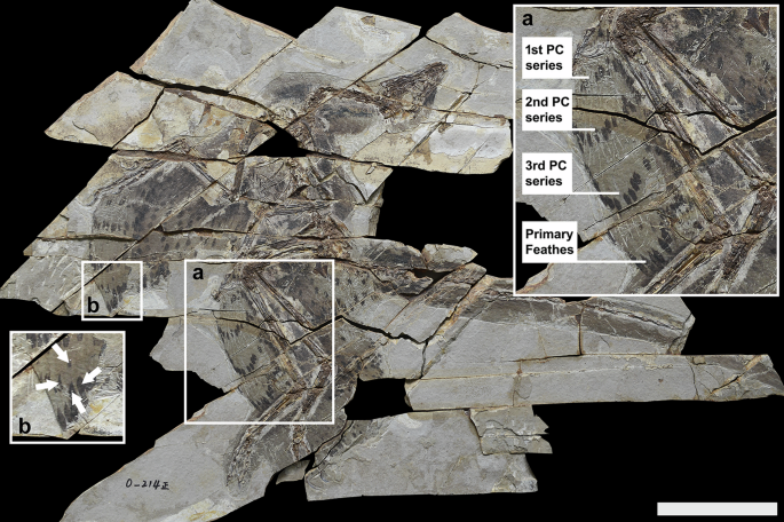
图 赫氏近鸟龙标本STM0-214及翼部细节。化石中的羽毛排列和深浅斑纹,为研究翼部结构提供了线索。图片:Kiat等,2025,原论文图1,未改动。
二、它的羽色有化石依据,但不是一张“彩色照片”
赫氏近鸟龙也是最早获得较完整、基于化石证据的羽色重建的恐龙之一。
2010年,研究团队分析了一个标本不同部位羽毛中的黑素体——与黑色素有关的微小结构,并与现代鸟类比较。研究支持这样的配色:躯干以灰黑色为主,头部部分羽毛呈红褐色,四肢长羽的浅色区域与深色末端形成鲜明对比。[3]
这让恐龙复原从主要依靠类比,向可检验的颜色推断迈出了重要一步。
不过,“根据化石推断羽色”不能写成“完整测出了全身真实颜色”。重建依赖取样位置、保存状况和比较模型;相关标本的尾部并未保存,复原图中的尾部需要参考其他标本。一个个体的配色,也不能自动代表整个物种所有年龄和性别的个体。[3]
科学复原图的价值,正来自证据与推断的结合;标明两者的边界,会让它更可信。
三、换羽痕迹,为什么能帮助判断飞行能力?
2025年的研究考察了9件保存羽毛斑纹的近鸟龙标本。研究者发现,部分短羽末端偏离了正常斑纹带,将其解释为尚未长成的新羽;这些新羽的位置缺乏固定顺序,左右翼也不完全对称,符合不规则换羽的特征。[1]
研究还发现,近鸟龙的初级飞羽数量约为20—28枚;在保存条件较好的标本中,最长一列初级覆羽覆盖超过80%的翼长。论文比较的31种现生飞行鸟类,对应覆盖比例为38%—62%。这些差异与换羽证据共同支持作者提出的“不具备飞行能力”判断。[1]
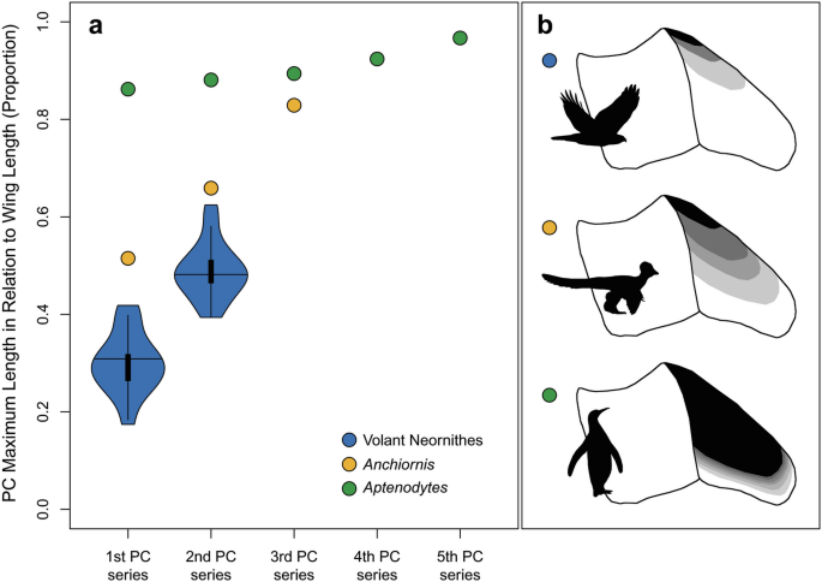
图|近鸟龙、现生飞行鸟类和王企鹅属鸟类的覆羽排列比较。覆羽是覆盖在较大羽毛基部之上的羽毛。图中差异有助于讨论翼的功能,但单项比例不能独立判定飞行能力。图片:Kiat等,2025,原论文图2,未改动。
这里还要纠正一个常见误解:会飞的鸟并非都“绝不大量脱换飞羽”。鸭、鹅等也会集中更换飞羽,并暂时失去飞行能力。该研究关注的是换羽有无固定顺序及其与翼部结构的组合,不能简化成“脱羽多,所以不会飞”。[1]
四、羽毛蛋白的证据,为什么需要谨慎解释?
原文把羽毛蛋白写成了“天生无法飞行”的决定性证据,这超出了研究能够支持的范围。
2019年的研究报告,近鸟龙羽毛中存在α-角蛋白和羽毛β-角蛋白相关信号,并据此提出:其羽毛可能尚未具备现代飞羽的全部分子和超微结构特征。这是一项关于羽毛材料演化的推断,并不是对活体近鸟龙羽毛强度的直接测量。[4]
2023年的实验研究进一步指出,埋藏过程中受热等变化,可能改变羽毛蛋白的结构,使化石呈现出不同于生前的分子信号。因此,今天测到的化石成分,不能不经校正就当作动物生前羽毛的原始组成。[5]
这并不意味着化石分子研究没有价值,而是说明:解释化石时,既要研究生命当年是什么样,也要研究它在成为化石的过程中发生了什么。
五、“二次失去飞行”,不等于“主动放弃天空”
近鸟龙是否来自具有飞行能力的祖先?
2025年论文讨论了“二次丧失飞行能力”的可能性,但这一解释依赖演化关系及祖先性状的重建,不能直接写成学界已经确认的历史事实。[1]
即使这一解释成立,“主动放弃飞行”也不是准确的演化表述。动物不会预先决定后代该保留什么能力。演化发生在种群的世代更替中,与可遗传变异、自然选择、遗传漂变等过程有关。
同样,“没有用就一定退化”“活下来的就是最优设计”,也都过于简单。性状可能因历史限制、发育关联或改变代价而保留;自然选择并不保证生物达到全局最优。
羽毛也可能承担多种功能。保温、展示和视觉交流都是值得研究的方向,但近鸟龙特殊长羽的具体用途,仍需要证据检验。
六、演化的启示:不同结构,可以有不同的历史
近鸟龙的意义,还在于帮助我们理解“镶嵌演化”。
2025年的头骨研究显示,它保留了非鸟恐龙的一些头骨特征,同时在局部结构上分别与驰龙类、伤齿龙类和早期鸟翼类相似。这说明,不同结构的演化并不总是同步进行。[6]
“镶嵌”并不是说身体零件最后被机械地拼装起来,而是说:一个物种可以同时具有不同演化阶段、不同变化速率的性状。过渡化石也并非一条直线上排列的“半成品”,而是当时真实生活着的生物。
羽毛的功能变化,则与“外适应”(exaptation,亦译“前适应”)有关:已经存在的结构,可以在后来的演化中被用于新的功能。羽毛和复杂羽饰的出现,并不能简单等同于飞行的出现;早期羽毛究竟承担哪些功能,仍是研究问题。[7]
这种从历史理解性状的方法,也能用于农业。2026年一项水稻研究发现,包含串联微RNA156基因的EBT1位点参与野生稻多年生生长的调控。研究者结合其他相关基因,获得了表现出较强多年生习性的重组材料。[8]
这为多年生水稻育种提供了机制线索,但还不能直接等同于已经获得能够广泛推广、持续高产的新品种。实验中的性状改善,与农田中的长期表现,需要分别验证。
结语
赫氏近鸟龙留下的,不是一则“放弃飞行便找到最优人生”的寓言。
它让我们看见,羽毛、翅膀和飞行能力之间,存在比直觉更复杂的关系;也让我们看见,科学认识如何随着新标本、新方法和新实验而修正。
对这只“四翼恐龙”,我们可以赞叹它的羽饰,也应保留对其生活方式的追问。
演化没有预设的终点;科学的力量,在于让每一步判断都与证据相称。
参考文献
[1] Kiat Y, Wang X, Zheng X, et al. Wing morphology of Anchiornis huxleyi and the evolution of molt strategies in paravian dinosaurs. Communications Biology, 2025, 8: 1633.
[2] Hu D, Hou L, Zhang L, Xu X. A pre-Archaeopteryx troodontid theropod from China with long feathers on the metatarsus. Nature, 2009, 461: 640–643.
[3] Li Q, Gao K Q, Vinther J, et al. Plumage Color Patterns of an Extinct Dinosaur. Science, 2010, 327: 1369–1372.
[4] Pan Y, et al. The molecular evolution of feathers with direct evidence from fossils. PNAS, 2019, 116: 3018–3023.
[5] Slater T S, Edwards N P, Webb S M, et al. Preservation of corneous β-proteins in Mesozoic feathers. Nature Ecology & Evolution, 2023, 7: 1706–1713.
[6]王敏,王孝理,郑晓廷,周忠和.赫氏近鸟龙(兽脚类恐龙:副鸟类)头骨形态对鸟类头骨演化的新启示.古脊椎动物学报, 2025, 63(1): 20–42.
[7] Foth C, Tischlinger H, Rauhut O W M. New specimen of Archaeopteryx provides insights into the evolution of pennaceous feathers. Nature, 2014, 511: 79–82.
[8] Dai B, Lv D, Chen E, et al. Resetting of a tandem microRNA156 enables vegetative perennial growth in rice. Science, 2026, 391: 1239–1245.