ARTICLE · 1144636
高中生物疑难问题讲稿:原核生物的DNA复制
高中生物疑难问题讲稿:原核生物的DNA复制
开场导入
同学们,今天这节课我们来攻克一个在高中生物中经常出现、但很多同学一直停留在“背结论”层面的核心问题——原核生物的DNA到底是怎么复制的?
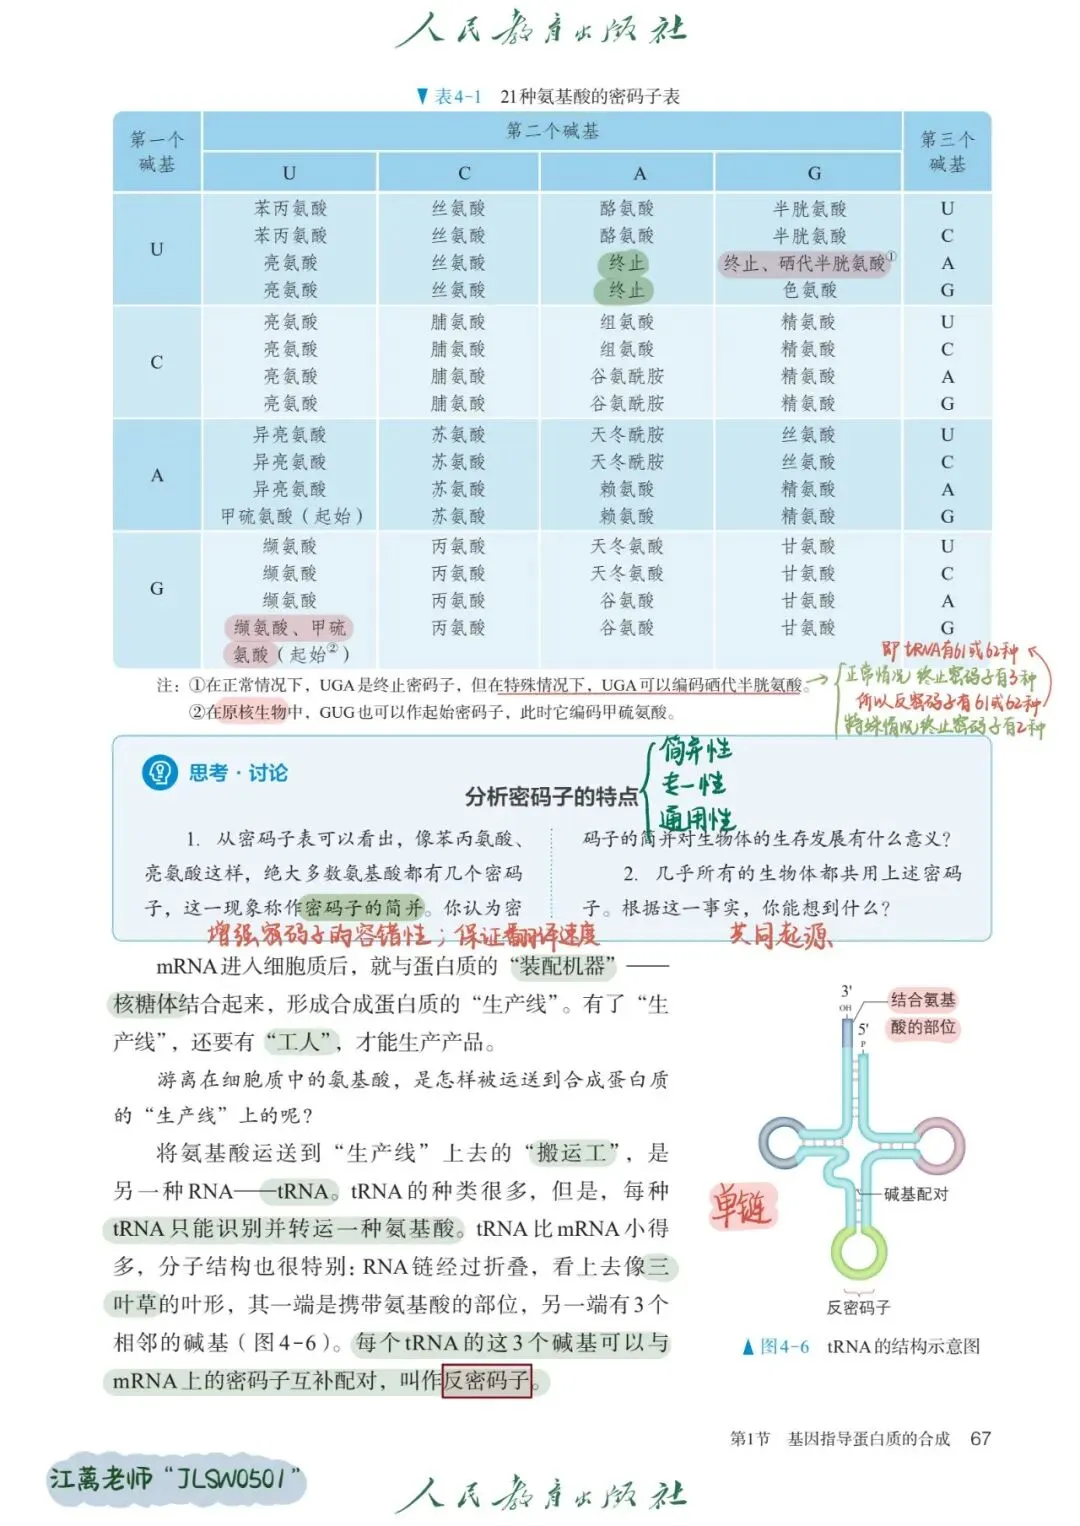
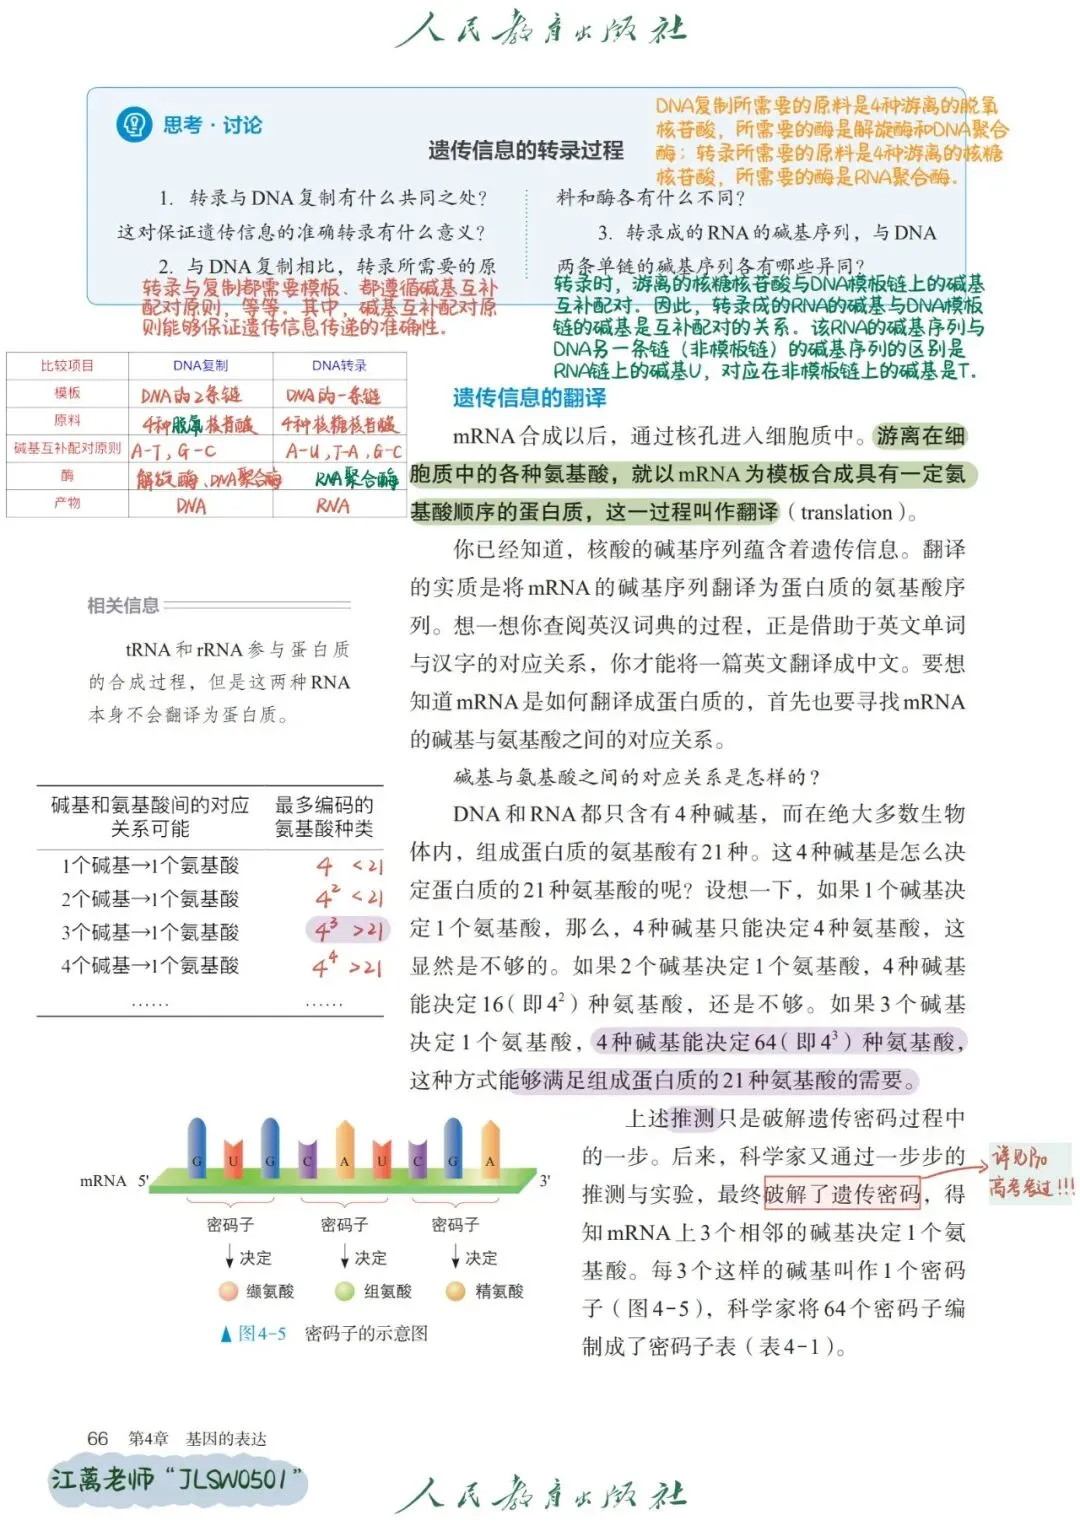
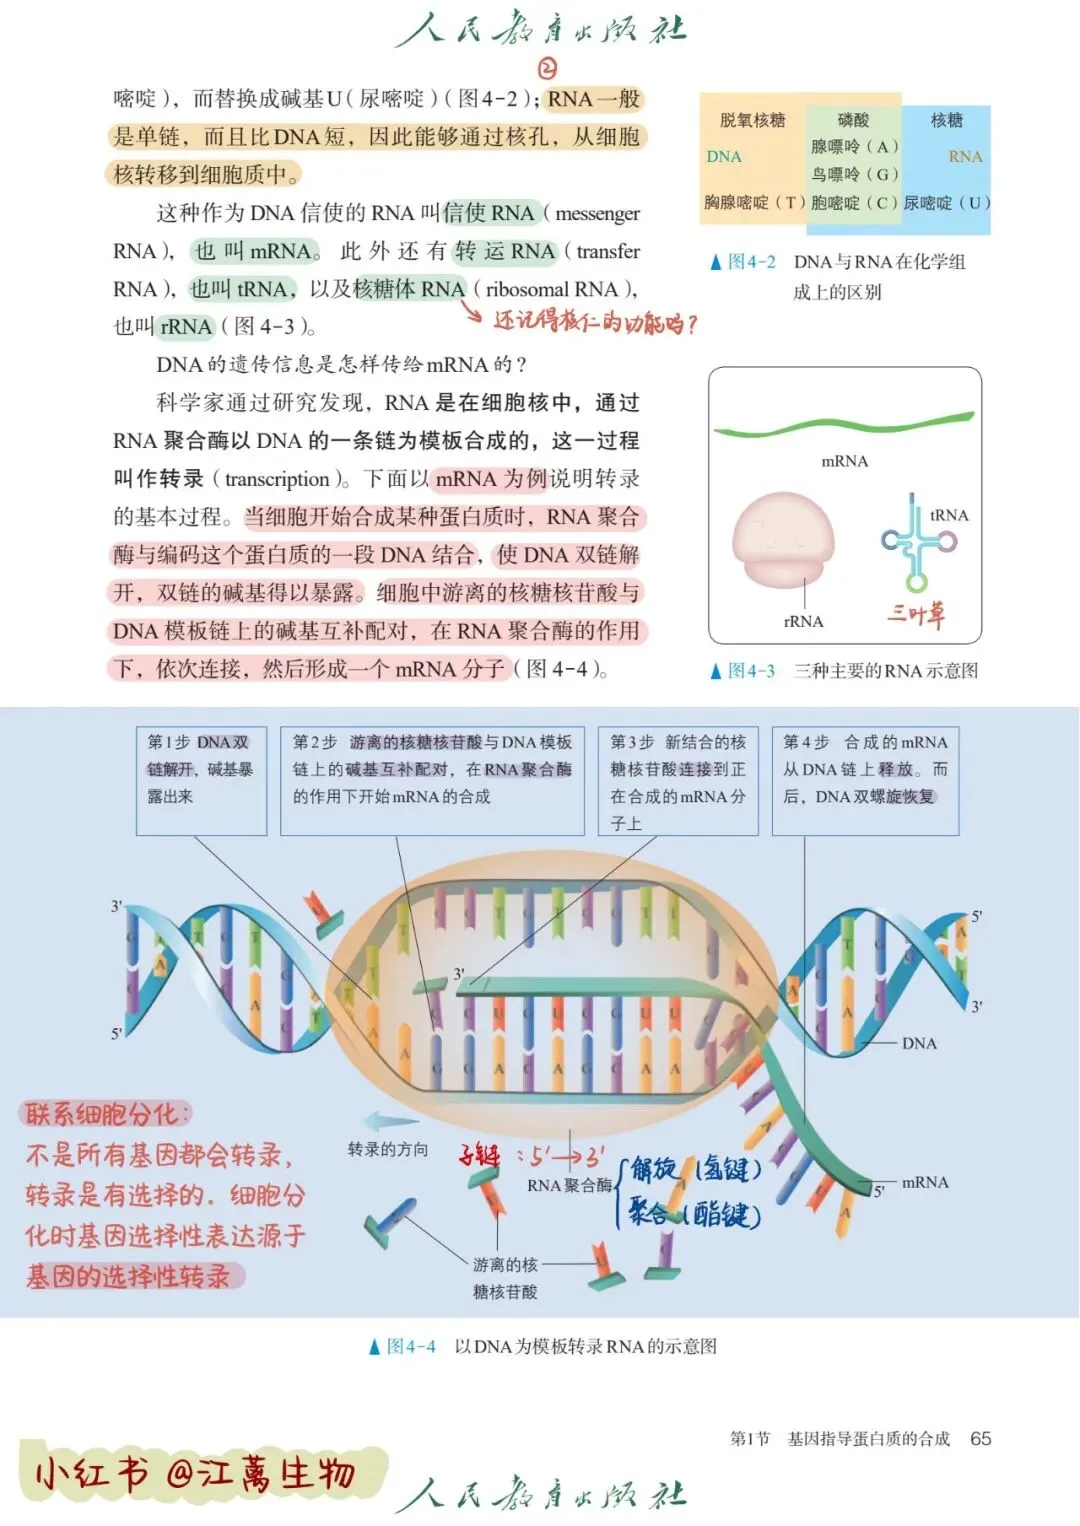
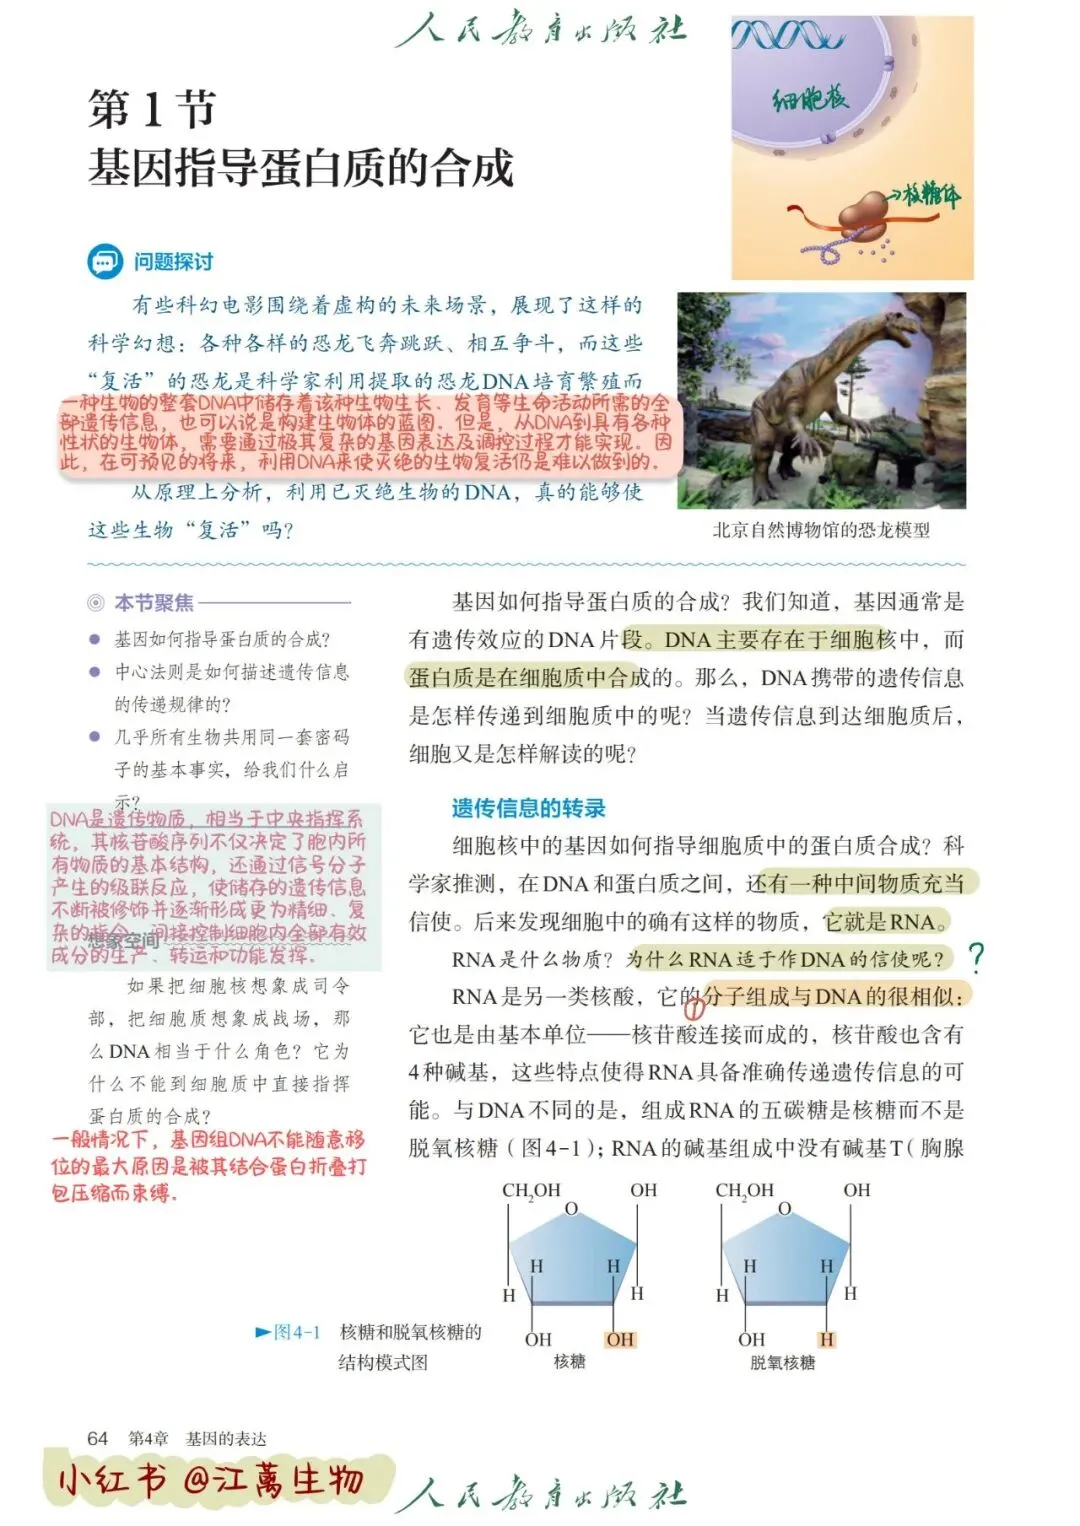
我在答疑的时候经常遇到这样的问题:有同学拿着课本问,“老师,课本上说原核生物的DNA是环状的,那它怎么复制啊?线头都没有,怎么解开?”还有同学问:“老师,为什么线粒体和叶绿体里的DNA也是环状的?”更多的同学对DNA复制中那一大堆酶感到困惑:解旋酶、拓扑异构酶、引物酶、DNA聚合酶I、DNA聚合酶III、DNA连接酶……它们到底谁干什么?为什么需要引物?引物为什么是RNA而不是DNA?PCR里的引物为什么又是DNA?
今天我们就从大学遗传学和分子生物学的视角,把这些问题一个一个彻底讲清楚。
一、为什么原核生物的DNA是环状的?
1.1环状DNA的结构特征
我们先从最基础的问题开始:原核生物的DNA为什么是环状的?
原核生物(以细菌为主)的染色体通常是一个环状双链DNA分子。大肠杆菌的基因组大小约为4.6Mb(460万个碱基对),全长约1.5毫米,是细胞本身长度的约1000倍。这么长的DNA分子必须高度压缩才能装进细胞里,但它没有游离的末端——两条链首尾相连,形成一个闭合的环。
环状DNA与线状DNA相比,有几个重要的优势:
第一,解决了“末端复制问题”。线状DNA在复制时,由于DNA聚合酶只能从5'→3'方向合成,且需要RNA引物,当复制叉到达染色体末端时,后随链的最末端引物被切除后无法填补,会导致每复制一次染色体就缩短一点。真核生物的端粒就是为了解决这个问题而存在的。而环状DNA没有末端,不存在这个问题。
第二,复制完成后天然分离。环状DNA复制完成后,两个子代环状染色体可以通过拓扑异构酶的作用相互分离,不需要像线状染色体那样进行末端处理。
第三,拓扑结构更稳定。环状DNA可以形成超螺旋结构,使DNA进一步压缩,同时也增强了DNA的稳定性。
1.2为什么线粒体和叶绿体的DNA也是环状的?
这是一个非常好的问题。线粒体和叶绿体的DNA之所以是环状的,答案就在内共生理论中。
内共生理论认为,线粒体和叶绿体最初是被祖先宿主细胞吞噬的自由生活的细菌。它们最终没有被消化,而是与宿主形成了共生关系,演化为今天的细胞器。支持这一理论的证据包括:线粒体和叶绿体都含有环状DNA、细菌型70S核糖体以及双层膜结构。
也就是说,线粒体和叶绿体的环状DNA是它们原核生物祖先的“遗产”。在漫长的进化过程中,大部分线粒体和叶绿体基因转移到了细胞核中,使这些细胞器的基因组显著缩小,但它们仍然保留了环状DNA这一细菌祖先的特征。
二、原核生物DNA复制的完整过程
2.1复制起点:oriC
原核生物的DNA复制始于一个特定的复制起点,称为oriC。大肠杆菌的oriC位于染色体上一个特定的位置,相当于一个“时钟”的12点钟方向;复制终止区则位于6点钟方向。
在复制起始阶段,起始蛋白DnaA在oriC处有序组装,识别并结合到oriC的重复序列上。DnaA-ATP的组装触发DNA双链的局部解旋。随后,DnaB解旋酶被加载到解开的单链区域,开始向两侧解开双螺旋。
2.2双向复制与复制叉
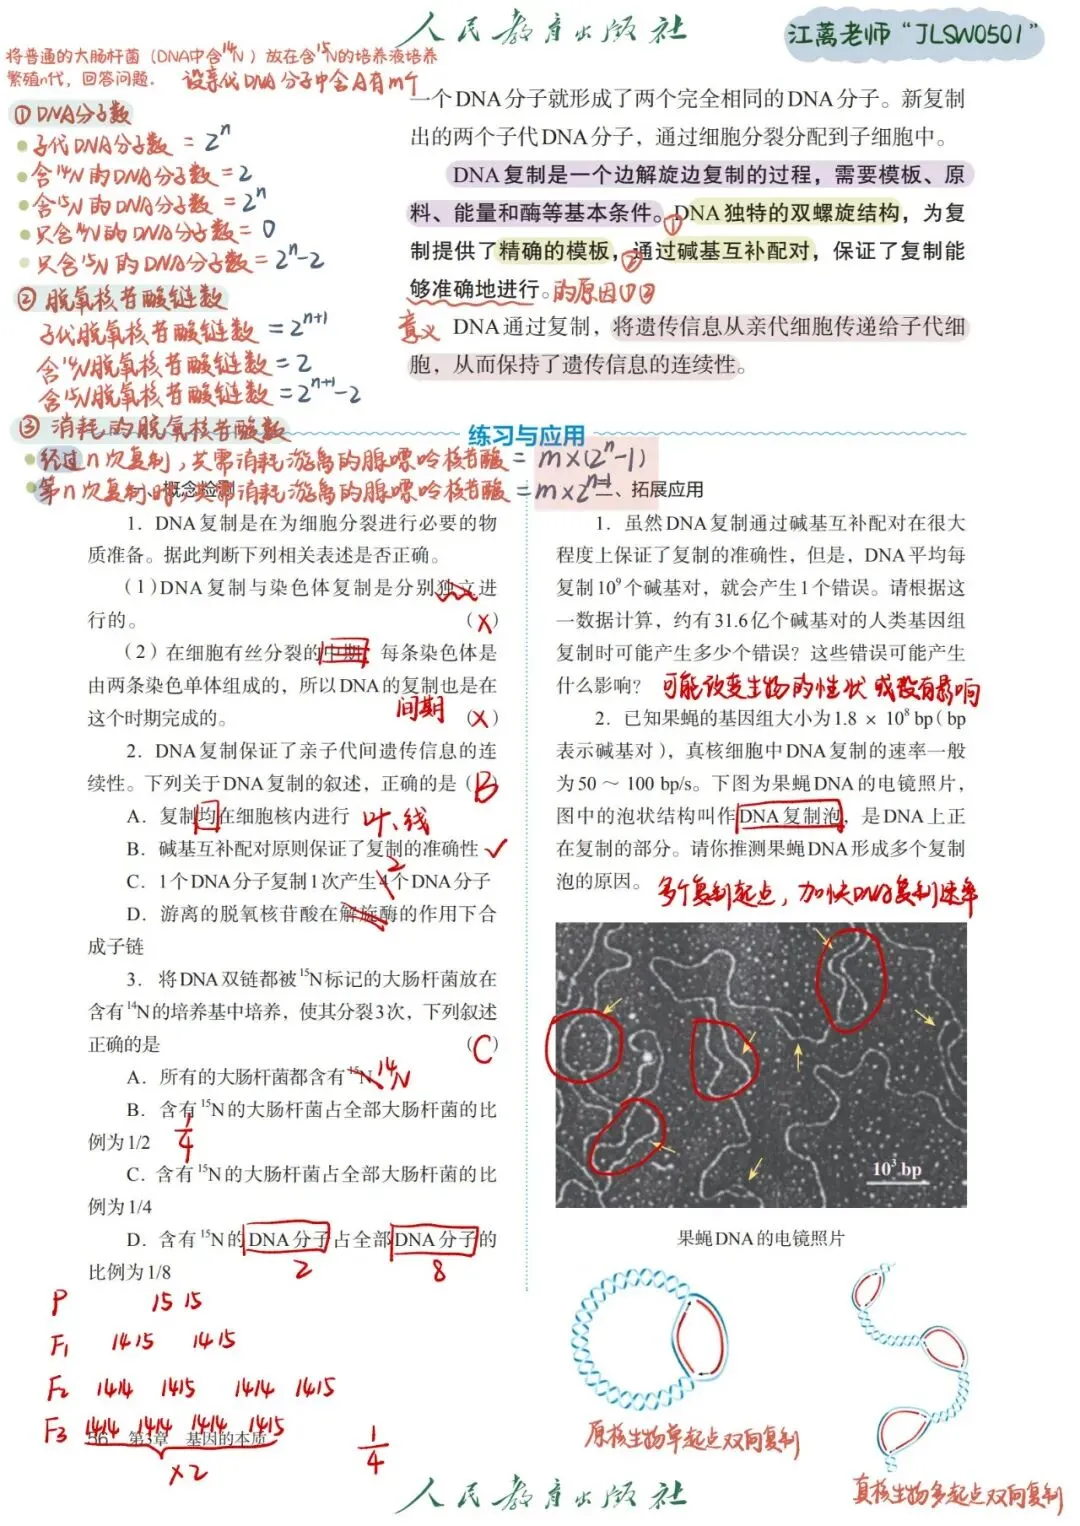
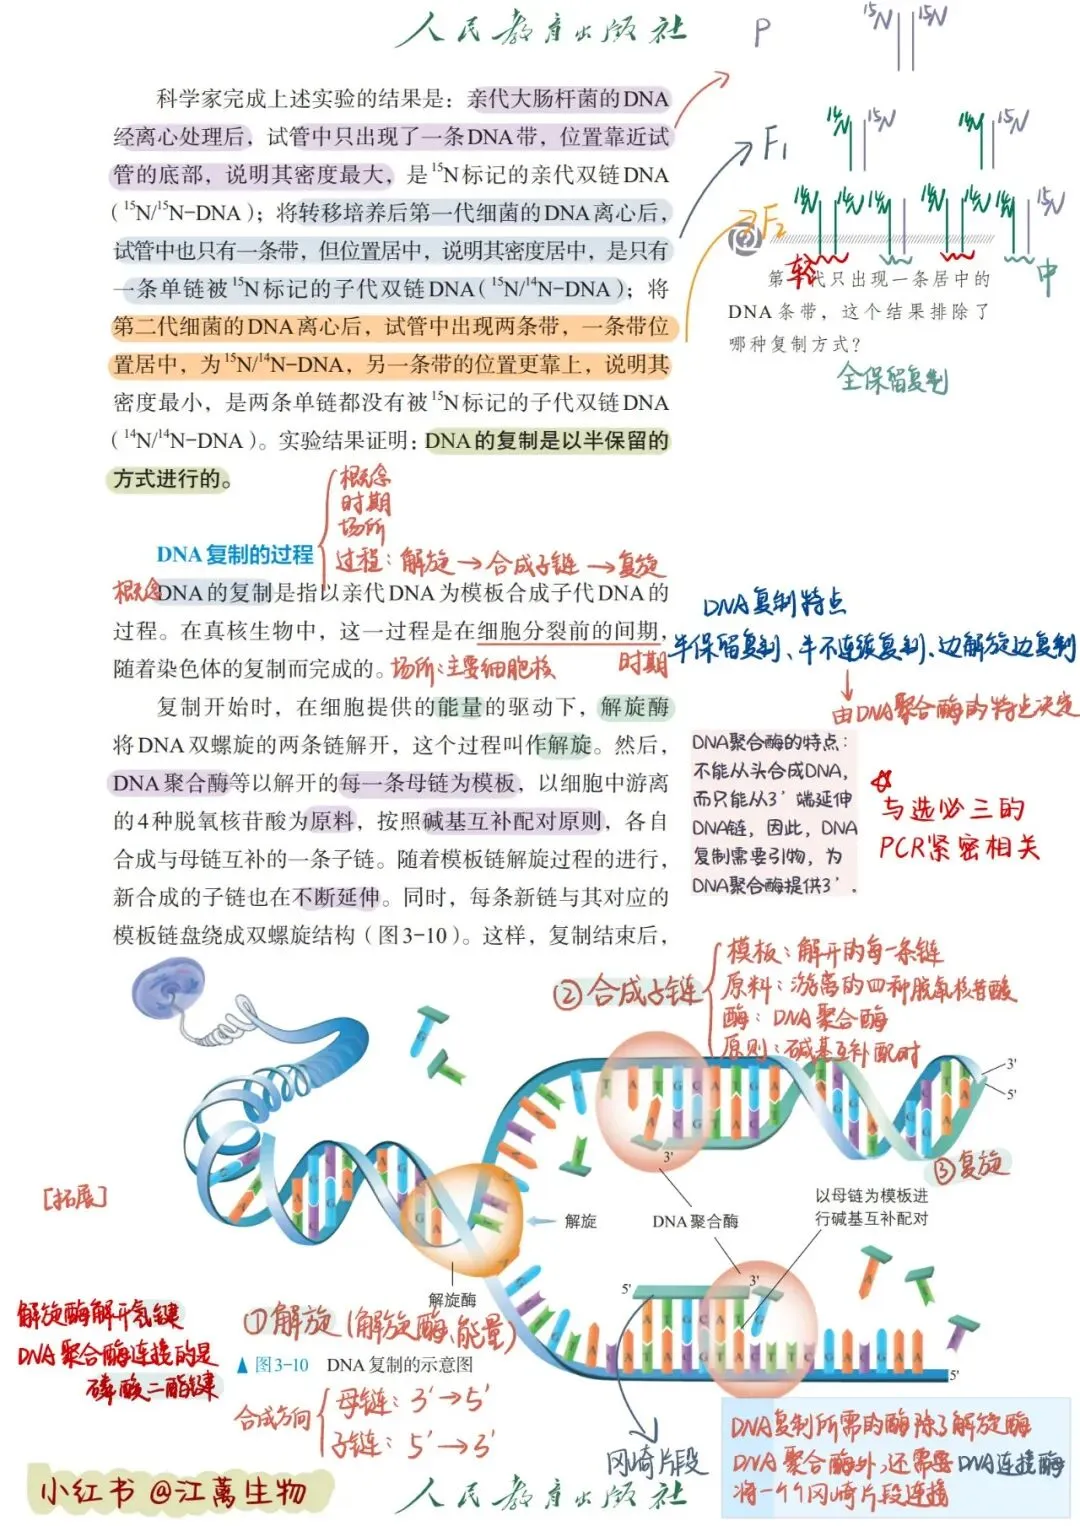
原核生物的DNA复制是双向复制的。在oriC处,两个复制叉(replicationfork)被组装起来,沿着环状染色体的两个方向(两个replichore)反向移动,同时合成DNA。
复制叉是Y形的活性区域,亲代双链DNA在这里分开,两条单链分别作为模板合成互补链。每个复制叉都包含一个复杂的分子机器,称为复制体,其中包括DnaB解旋酶和DNA聚合酶III全酶等。
在环状DNA中,双向复制会形成一个特征性的结构,称为θ结构——因为复制眼(复制泡)的形状看起来像希腊字母θ。
2.3前导链与后随链的不对称合成
由于DNA的两条链是反向平行的,而DNA聚合酶只能沿5'→3'方向合成,这就导致了两条链的合成方式不同:
前导链:沿着复制叉移动的方向连续合成,只需要一个引物。
后随链:合成方向与复制叉移动方向相反,必须以冈崎片段的形式不连续合成,每个冈崎片段都需要一个新的引物。
在细菌中,复制叉的移动速度非常快,大肠杆菌中每个复制叉的移动速度约为600-1000bp/s。
三、DNA复制相关的酶:谁干什么?
3.1DNA聚合酶I:修复专家
DNA聚合酶I(PolI)是大肠杆菌中第一个被发现的DNA聚合酶。它在细胞中的含量约为400个分子/细胞。
PolI的主要功能包括:
切除RNA引物并填补缺口。在DNA复制过程中,后随链的每个冈崎片段都需要一个RNA引物。当DNA聚合酶III完成冈崎片段的合成后,RNA引物需要被去除并由DNA填补。PolI具有5'→3'外切核酸酶活性,可以从5'端切除RNA引物,同时利用其聚合酶活性填补留下的缺口。
DNA修复。PolI还参与DNA损伤修复,能够移除错配的碱基对并填补单链DNA的缺口。
PolI合成DNA的速度较慢,约为20个核苷酸/秒。
3.2DNA聚合酶III:复制的主力
DNA聚合酶III(PolIII)是原核生物DNA复制的主要合成酶。它在细胞中的含量极低,只有约10个分子/细胞,但其合成速度高达约1000个核苷酸/秒,接近复制叉的移动速度。
PolIII以全酶的形式存在,由多个亚基组成:核心聚合酶复合体(αεθ)负责合成DNA,β2滑动夹确保聚合酶的持续合成能力(processivity),钳夹加载器复合体负责将β2加载到引物-模板交界处。
PolIII具有3'→5'外切核酸酶活性,用于校对和切除错误掺入的核苷酸,保证复制的保真性。但PolIII没有5'→3'外切核酸酶活性,因此不能切除RNA引物——这正是PolI的职责。
3.3DNA聚合酶II:修复功能
DNA聚合酶II的功能尚不完全清楚,但被认为参与SOSDNA修复。
3.4引物酶:合成RNA引物
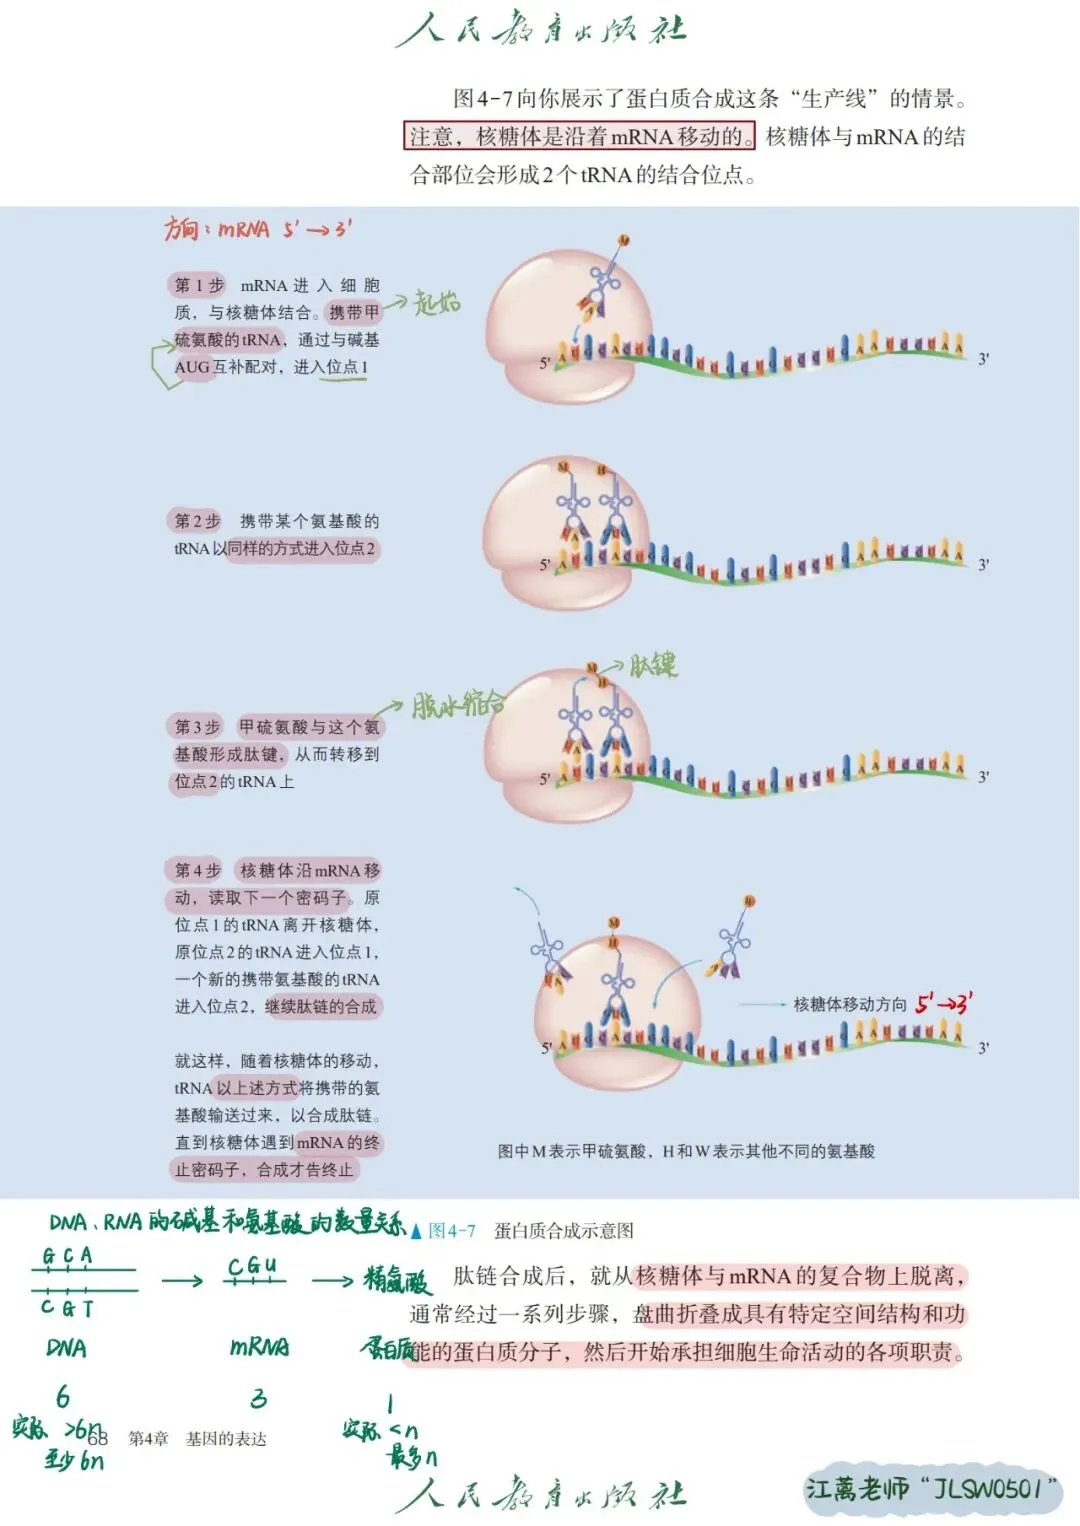
引物酶(primase)是一种依赖DNA的RNA聚合酶。它的功能是在单链DNA模板上合成短的RNA引物,为DNA聚合酶提供起始合成的3'-OH末端。
在大肠杆菌中,引物酶是DnaG蛋白。它合成约10-60个核苷酸的RNA引物。在DNA复制中,前导链只需要一个引物,而后随链的每个冈崎片段都需要一个新的引物。
四、为什么DNA复制需要RNA引物?
4.1核心原因:DNA聚合酶不能从头合成
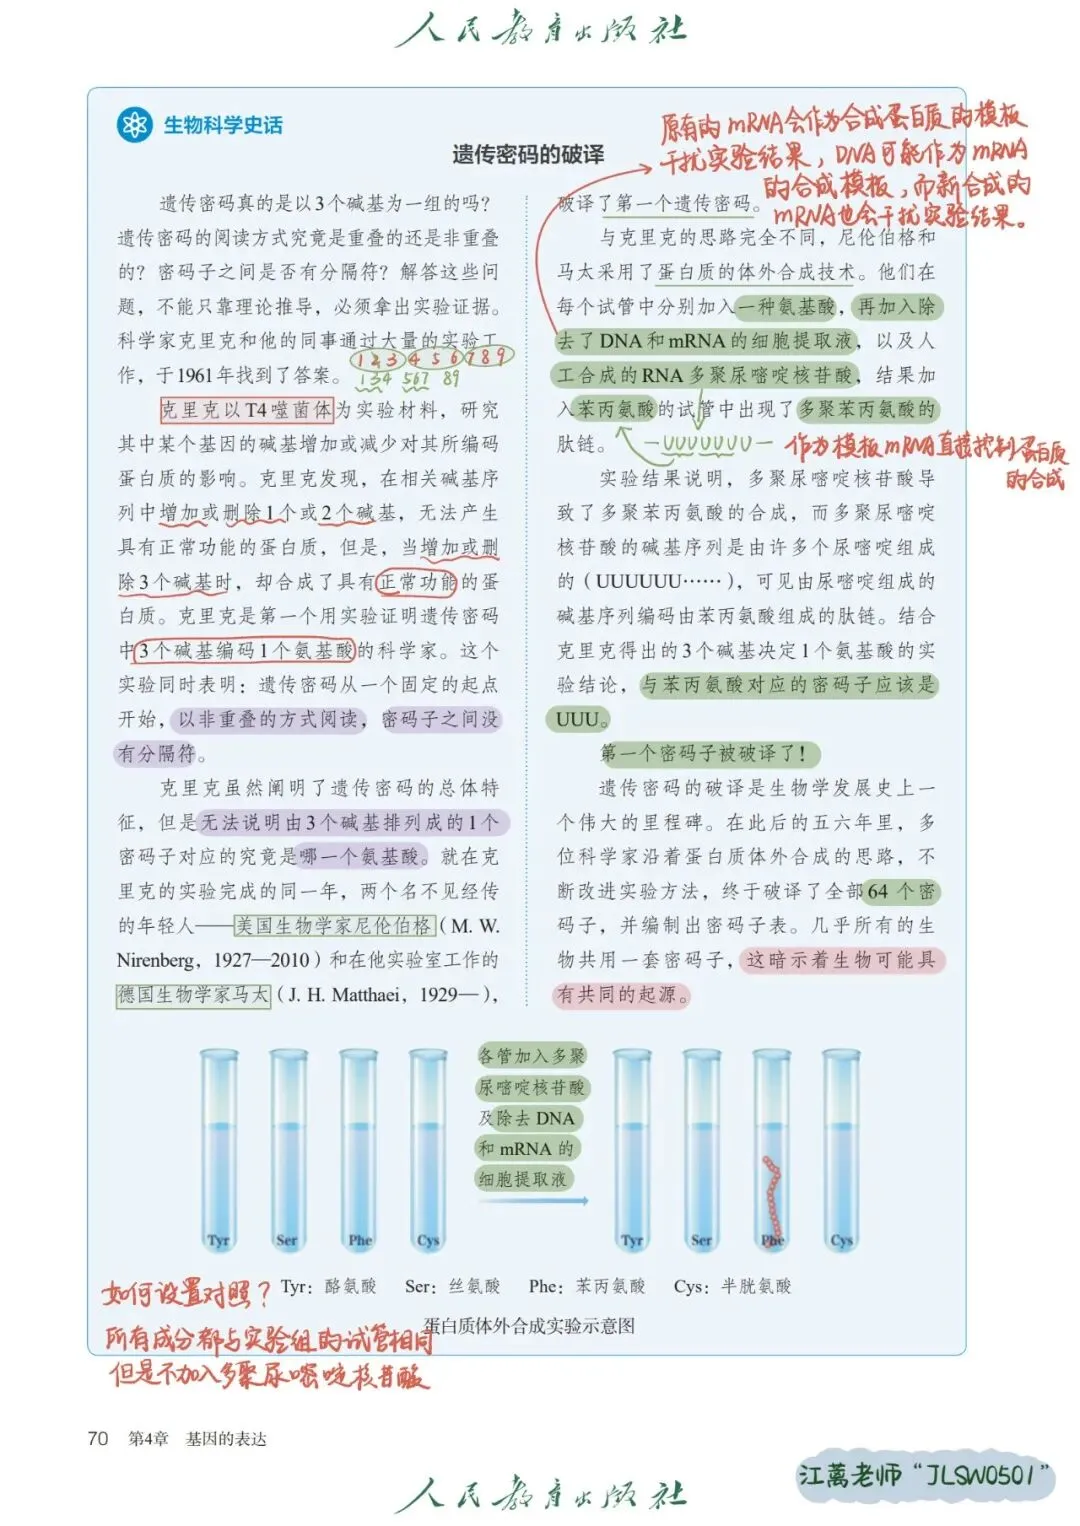
这是一个非常经典的疑难问题。答案的核心是:已知的所有DNA聚合酶都不能从头合成多核苷酸链。
DNA聚合酶的催化机制决定了它只能将新的核苷酸加到已有的3'-OH末端上。它不能将两个游离的核苷酸连接在一起,即使一个带有3'-OH,另一个带有5'-磷酸基团。
因此,DNA聚合酶需要一个“引子”来提供起始的3'-OH末端。这个引子就是RNA引物。
4.2为什么引物是RNA而不是DNA?
既然引物需要提供3'-OH,为什么不用DNA做引物呢?答案与引物酶的功能有关。
引物酶本质上是一种RNA聚合酶,它能够从头合成RNA链,而不需要一个预先存在的3'-OH末端。这与DNA聚合酶不同——RNA聚合酶不需要引物就能开始合成RNA。
在进化上,RNA比DNA更古老。在DNA作为遗传物质出现之前,RNA已经在生命活动中扮演了重要角色。因此,DNA复制系统“借用”了RNA聚合酶来合成引物,这是一种进化上的保守策略。
4.3引物与PCR引物的区别
同学们在做PCR实验时可能会发现,PCR的引物是DNA引物,而不是RNA引物。这是为什么呢?
体内DNA复制使用RNA引物,因为引物酶是RNA聚合酶,能够从头合成引物。
PCR(体外DNA扩增)使用DNA引物,因为PCR需要在高温(90°C以上)下进行变性步骤,RNA在高温下不稳定,而DNA引物更加温度稳定。此外,PCR使用的TaqDNA聚合酶本身也不能从头合成DNA,需要预先设计的DNA引物来提供3'-OH末端。
4.4复制中引物如何被去除?
在细菌中,引物的去除涉及RNaseH和DNA聚合酶I的5'→3'外切核酸酶活性。PolI从5'端切除RNA引物,同时用DNA填补留下的缺口。
五、解旋酶、拓扑异构酶、DNA连接酶的分工
5.1解旋酶:打开双螺旋
解旋酶(helicase)是用于解开DNA双链的酶蛋白。在大肠杆菌中,DnaB解旋酶位于复制叉的前沿,利用ATP水解的能量将两条DNA链分开。
解旋酶的工作方式就像一个“分子楔子”,强行插入双螺旋的碱基对之间,将氢键逐个打断,把两条链“拉开”。
5.2拓扑异构酶:缓解超螺旋张力
解旋酶沿着DNA移动时,前方会产生正超螺旋(DNA过度缠绕),后方会产生负超螺旋。如果不释放这种扭转压力,解旋酶将无法继续前进。
DNA拓扑异构酶能够将DNA双链中的一条链或两条链切断,松开超螺旋后再将DNA链连接起来,从而避免出现链的缠绕。在大肠杆菌中,DNA回旋酶(一种II型拓扑异构酶)负责引入负超螺旋,抵消复制叉前进产生的正超螺旋。
5.3DNA连接酶:缝合缺口
DNA连接酶的功能是催化相邻DNA的3'-OH和5'-磷酸基末端之间形成磷酸二酯键,把两段DNA拼接起来。
在原核生物DNA复制中,DNA连接酶的主要作用是在PolI切除RNA引物并用DNA填补缺口后,将冈崎片段之间的缺口封闭。连接过程需要消耗能量——大肠杆菌的DNA连接酶利用NAD⁺作为能量来源,而T4DNA连接酶利用ATP。
这里有一个重要的细节:DNA连接酶只能连接碱基互补基础上的双链中的单链缺口,不能连接单独存在的DNA单链或RNA单链。
六、什么是磷酸二酯键?
磷酸二酯键是核酸分子中的磷酸基团的磷原子与另外两个五碳糖分子的碳原子之间形成的共价键。
在DNA中,磷酸二酯键连接一个核苷酸的3'碳原子与下一个核苷酸的5'碳原子,构成DNA的糖-磷酸骨架。
磷酸二酯键是共价键,比氢键强得多。DNA的稳定性主要来自磷酸二酯键,而碱基对之间的氢键则负责维持双螺旋的结构和碱基配对的特异性。
七、为什么会出现复制叉?
复制叉是DNA复制过程中必然出现的结构。它的形成原因在于:DNA是双链的,两条链必须分开才能作为模板进行复制。
复制叉是Y形的活性区域,亲代双链DNA在这里分开,两条单链分别作为模板合成互补链。
在原核生物的环状DNA中,双向复制产生两个复制叉,它们从oriC出发,以相反方向沿染色体移动,最终在终止区相遇。
八、常见误区辨析
误区一:原核生物的DNA是线状的。
错误。原核生物(细菌)的染色体通常是环状的双链DNA分子。线粒体和叶绿体的DNA也是环状的,这是它们原核祖先的遗产。
误区二:DNA聚合酶III负责切除RNA引物。
错误。DNA聚合酶III负责合成DNA,没有5'→3'外切核酸酶活性,不能切除RNA引物。切除引物是DNA聚合酶I的职责。
误区三:DNA复制不需要引物。
错误。所有已知的DNA聚合酶都不能从头合成DNA,都需要一个RNA引物来提供3'-OH末端。
误区四:PCR引物和体内的DNA复制引物是一样的。
错误。体内DNA复制使用RNA引物,PCR使用DNA引物。PCR引物更稳定,能耐受高温变性步骤。
误区五:DNA连接酶连接氢键。
错误。DNA连接酶催化的是磷酸二酯键的形成,而不是氢键。氢键是碱基对之间的相互作用,不需要DNA连接酶来连接。
九、总结
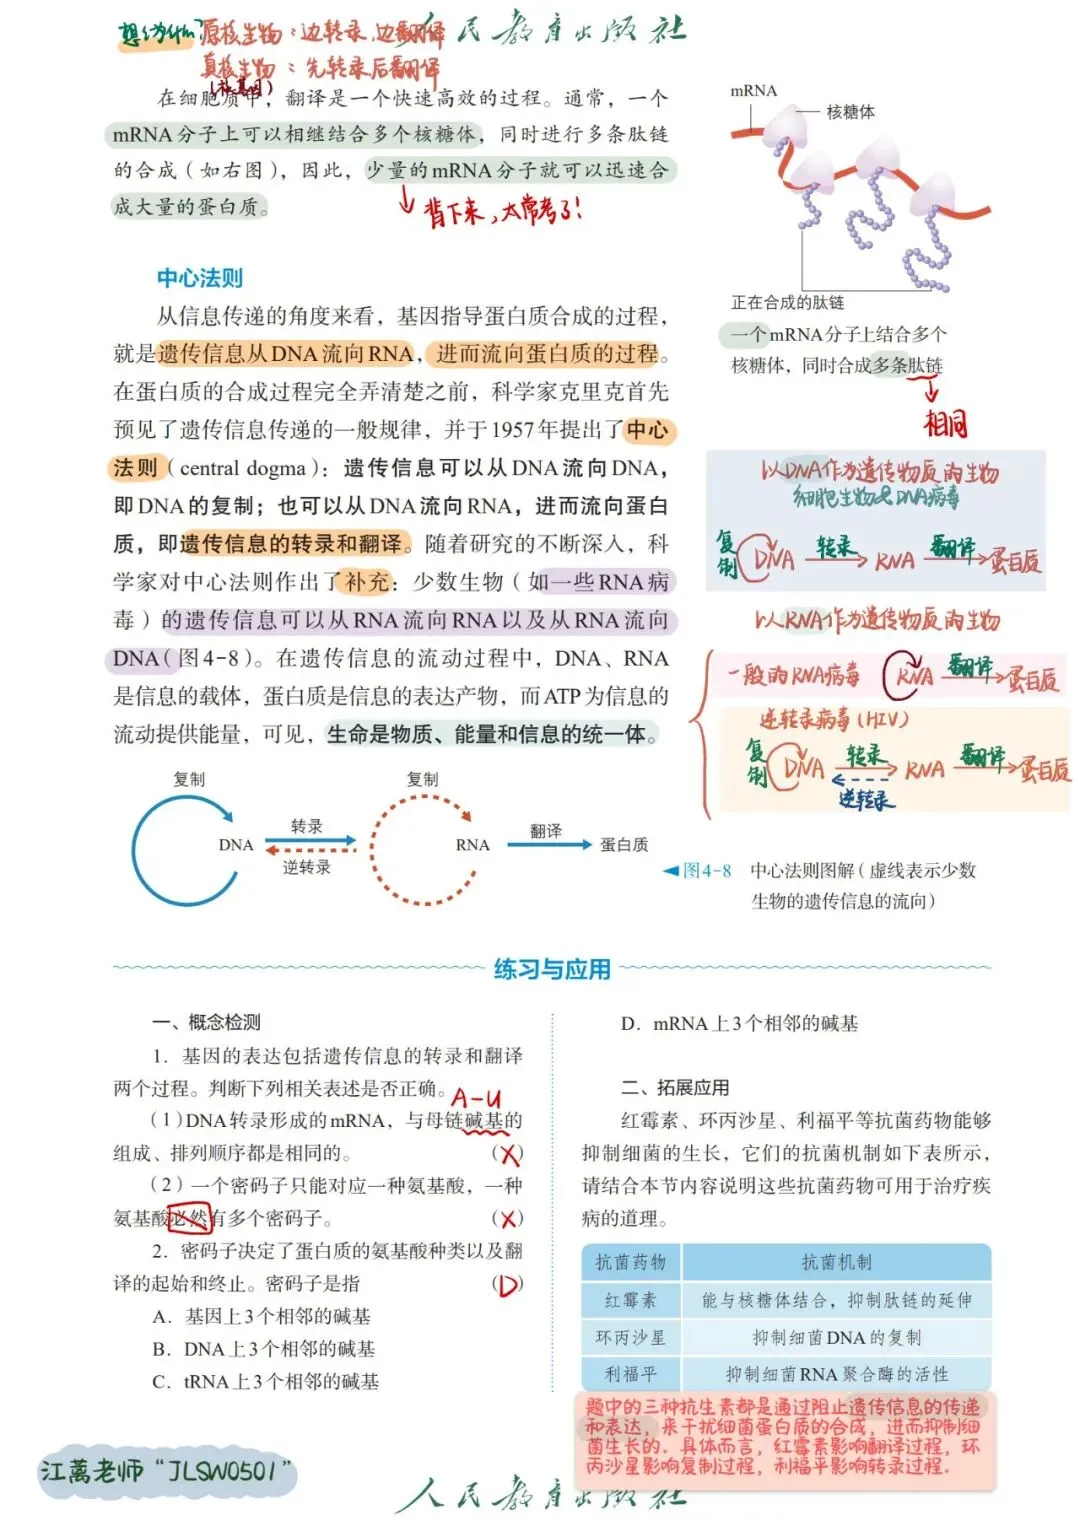
同学们,今天这节课的核心内容可以概括为以下几点:
原核生物的DNA是环状的,这一结构解决了末端复制问题。线粒体和叶绿体的环状DNA来自它们的内共生细菌祖先。
原核生物DNA复制从oriC开始,双向进行,形成两个反向移动的复制叉。前导链连续合成,后随链不连续合成(冈崎片段)。
DNA聚合酶I负责切除RNA引物和填补缺口,DNA聚合酶III是DNA合成的主力。引物酶合成RNA引物,为DNA聚合酶提供3'-OH末端。
DNA复制需要RNA引物,因为DNA聚合酶不能从头合成DNA。PCR使用DNA引物,因为DNA引物更耐高温。
解旋酶打开双螺旋,拓扑异构酶缓解超螺旋张力,DNA连接酶催化磷酸二酯键形成,封闭冈崎片段之间的缺口。
磷酸二酯键是连接核苷酸的共价键,构成DNA的糖-磷酸骨架。
参考文献
[1]NelsonDL,CoxMM.LehningerPrinciplesofBiochemistry(7thed.)[M].NewYork:W.H.FreemanandCompany,2017.
[2]王镜岩,朱圣庚,徐长法.生物化学(第3版)[M].北京:高等教育出版社,2002.
[3]翟中和,王喜忠,丁明孝.细胞生物学(第4版)[M].北京:高等教育出版社,2011.
[4]GriffithsAJF,WesslerSR,CarrollSB,etal.IntroductiontoGeneticAnalysis(11thed.)[M].NewYork:W.H.FreemanandCompany,2015.
[5]LewinB.GenesIX[M].Sudbury:JonesandBartlettPublishers,2008.