ARTICLE · 1144641
高中生物疑难问题讲稿:DNA复制的方向之谜与半不连续机制
高中生物疑难问题讲稿:DNA复制的方向之谜与半不连续机制
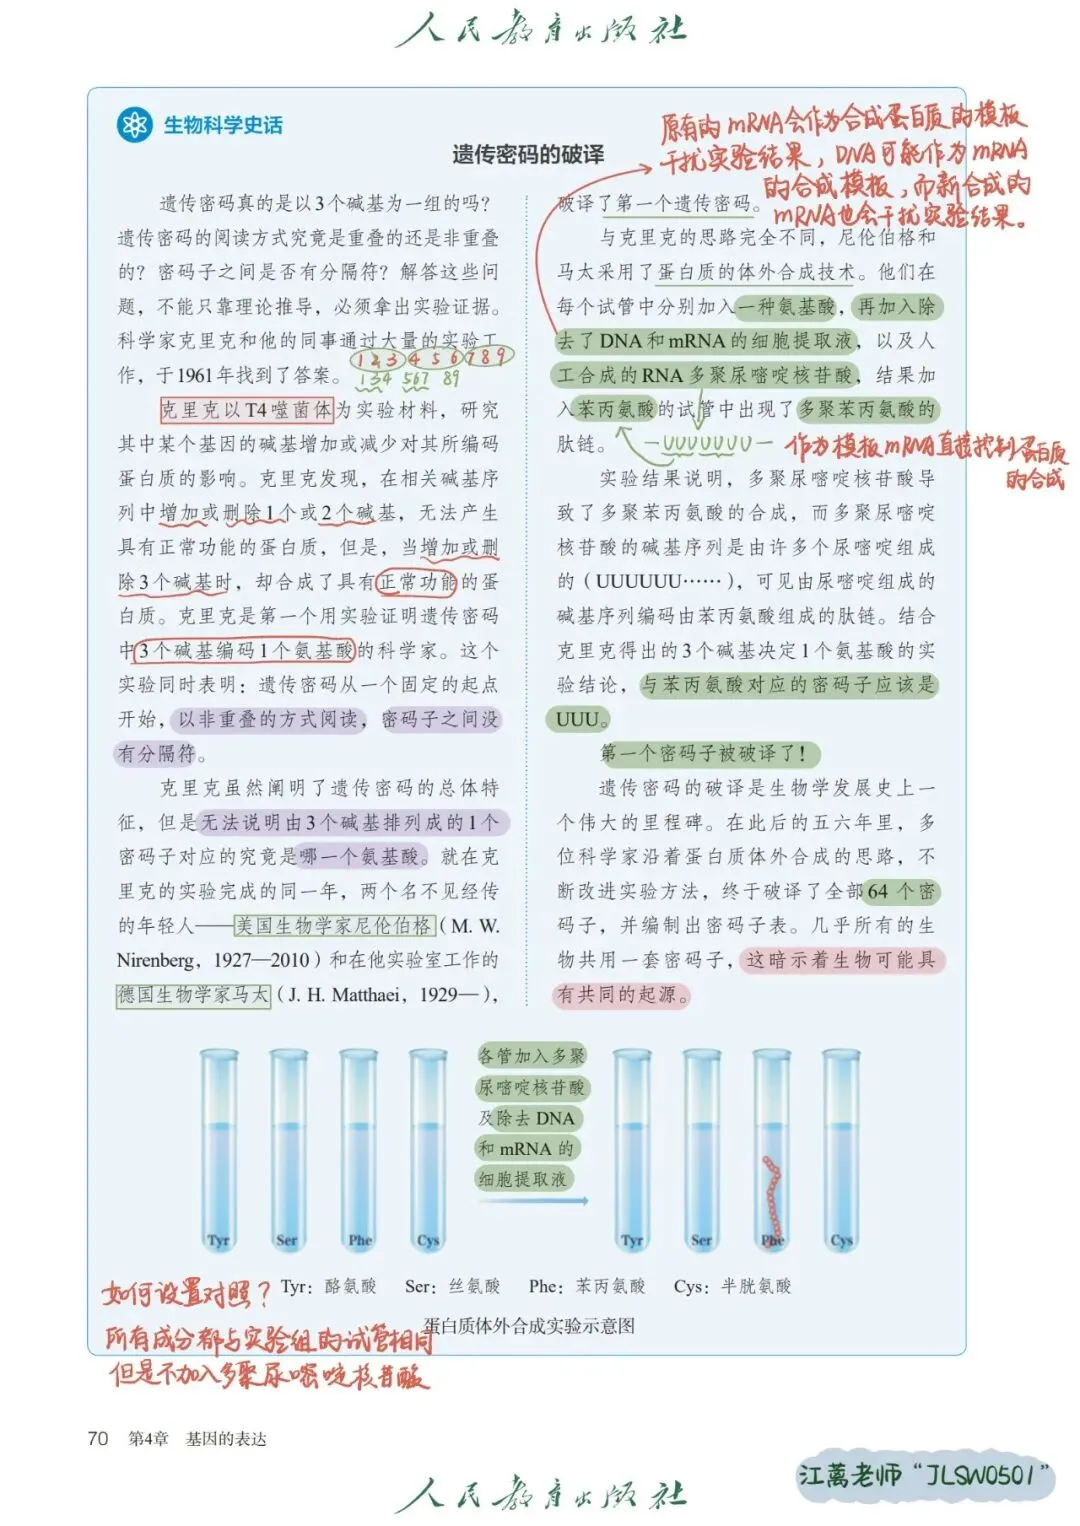
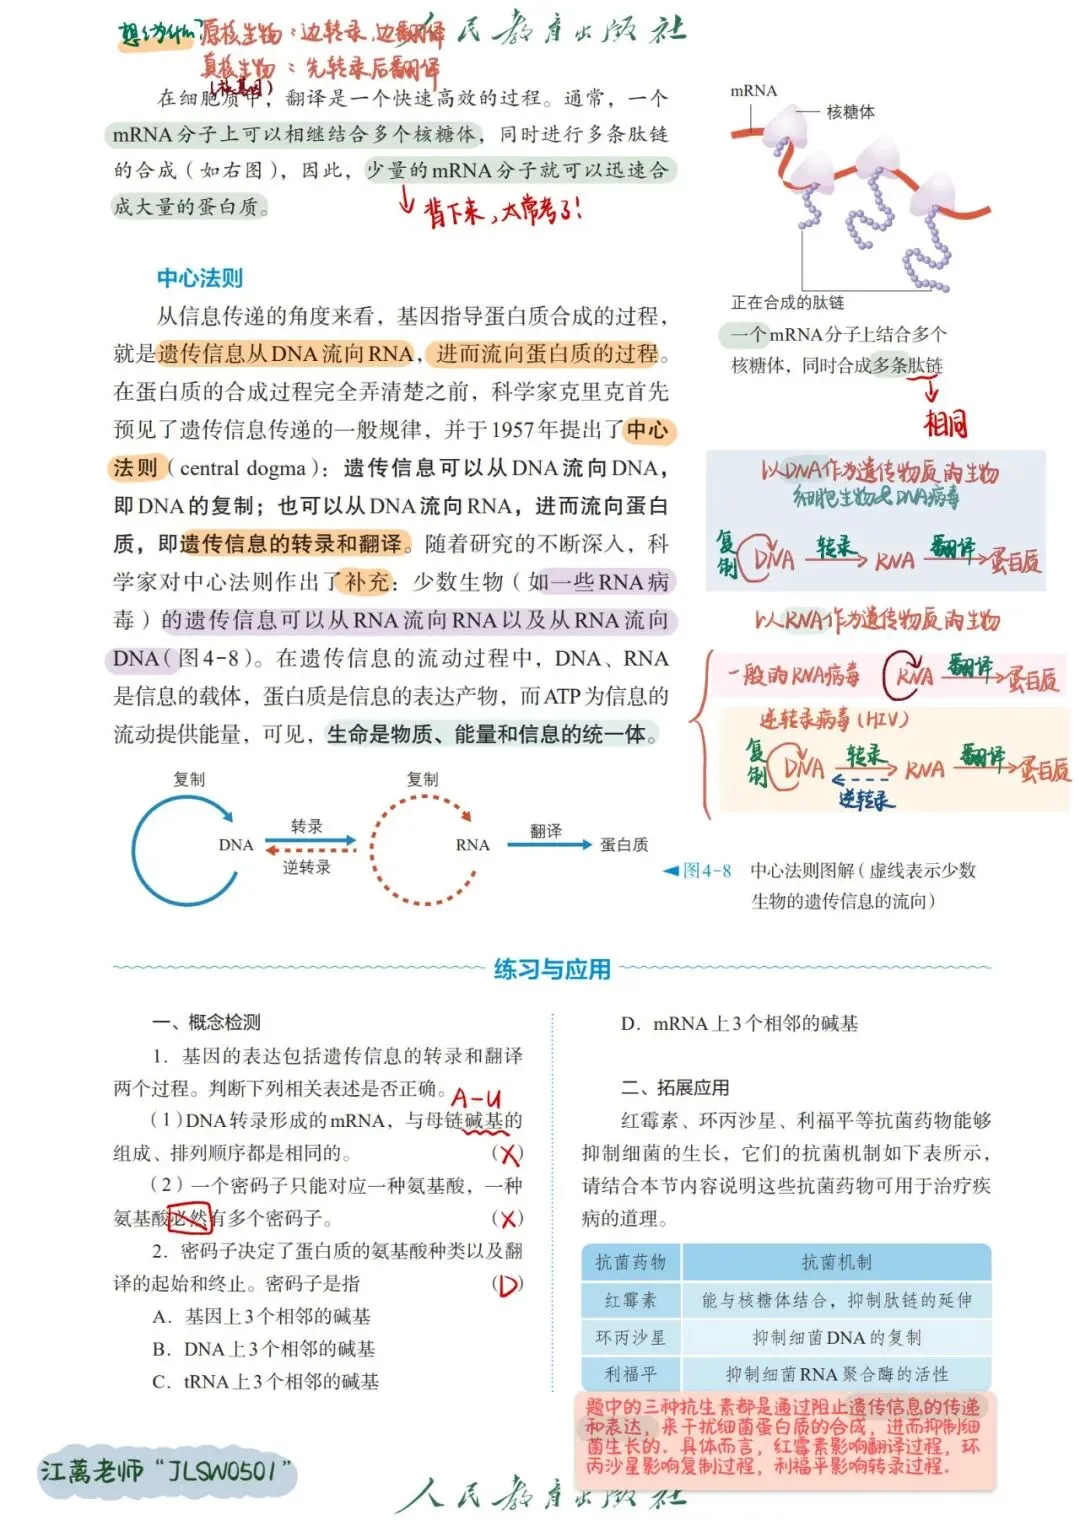
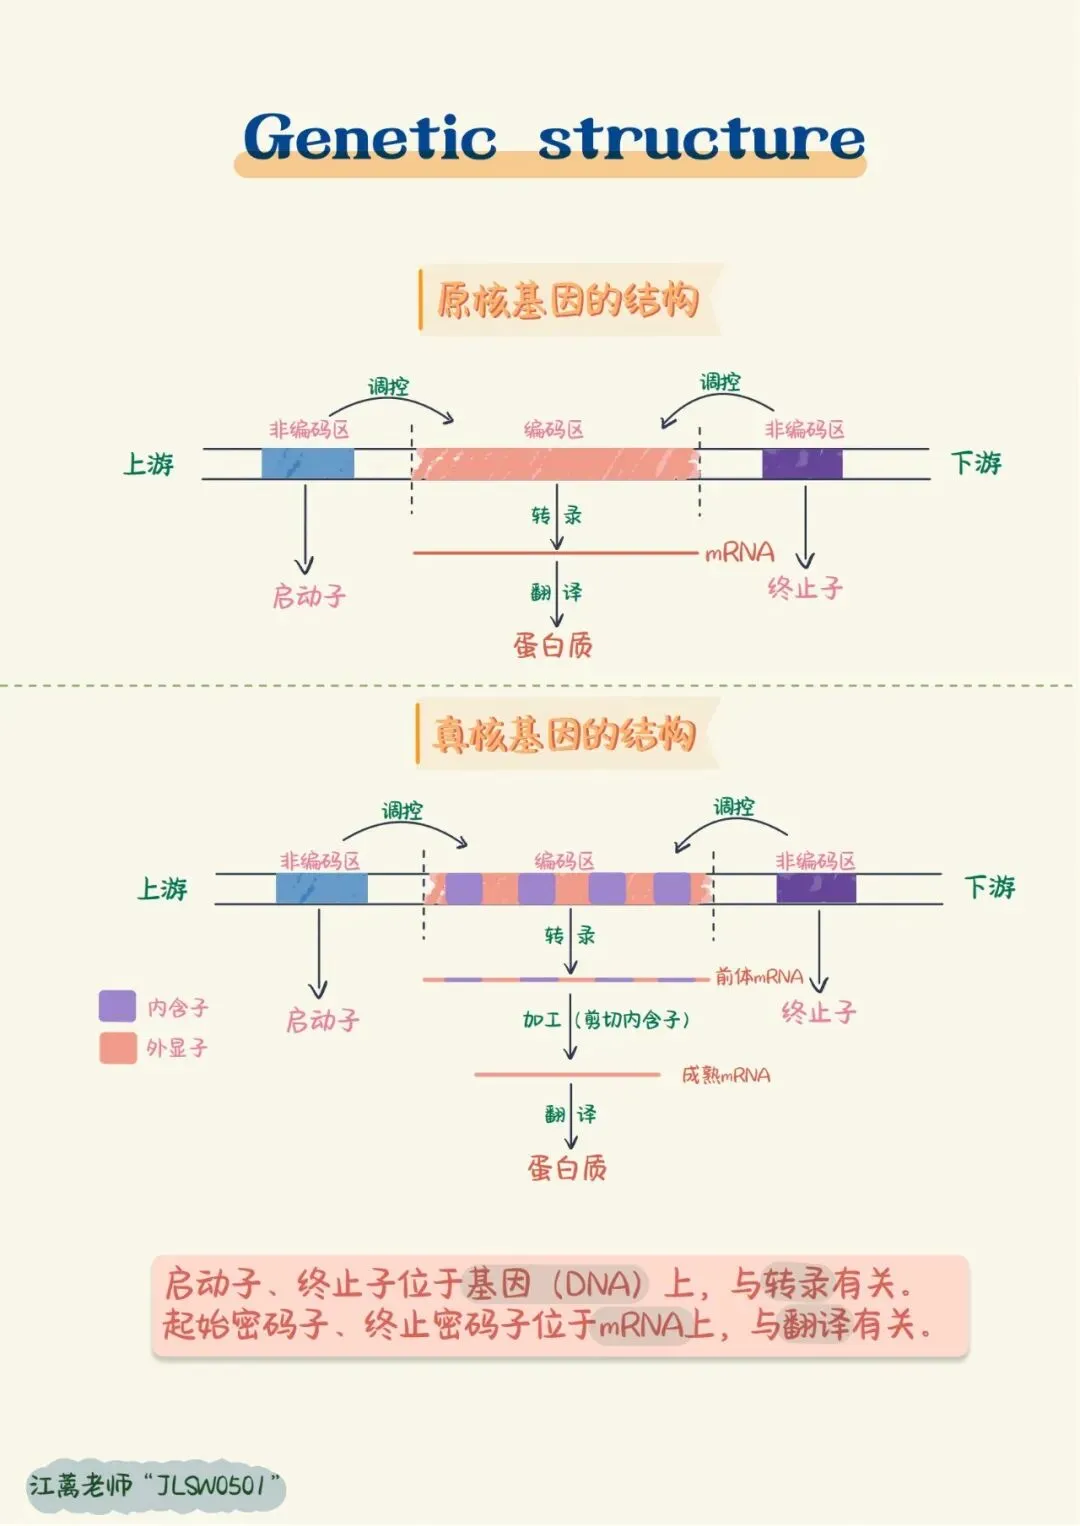
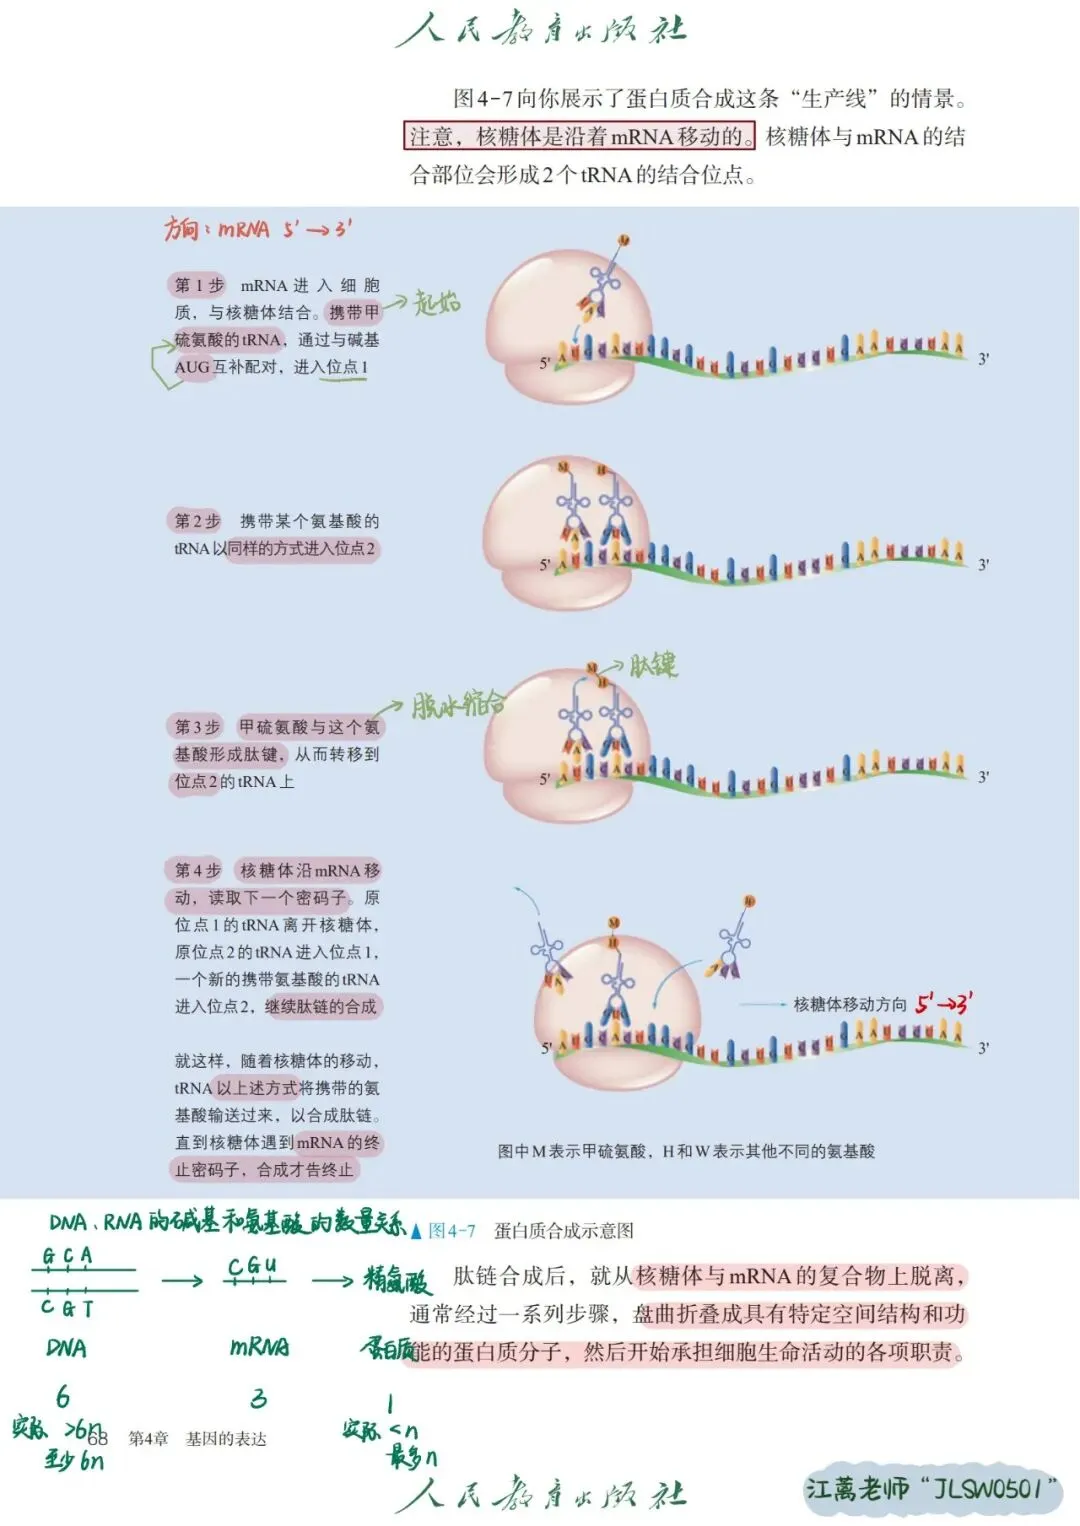
开场导入
同学们,今天这节课我们来啃一块高中生物“看起来简单、深入下去却极其复杂”的硬骨头——DNA复制的方向问题。
我在答疑的时候经常遇到这样的场景:“老师,课本上写DNA复制从5'到3',可是为什么另一条链是3'到5'?那它怎么复制啊?”还有同学问:“老师,为什么PCR需要设计一对引物?为什么叫前导链和后随链?冈崎片段到底是个啥?为什么原料是dNTP而不是dNMP?”
这些问题问得非常好。这说明大家已经不满足于死记硬背,而是开始思考生命现象的底层逻辑了。今天,我们就从大学分子生物学和生物化学的视角,把5'端与3'端的本质、DNA聚合酶的工作机制、半不连续复制、冈崎片段、dNTP原料以及经典证据,一个一个彻底讲清楚。
一、什么是5'端和3'端?如何断裂氢键?
1.15'端与3'端的化学本质
要理解DNA复制为什么有方向性,我们首先必须搞清楚DNA分子的“方向”是怎么来的。
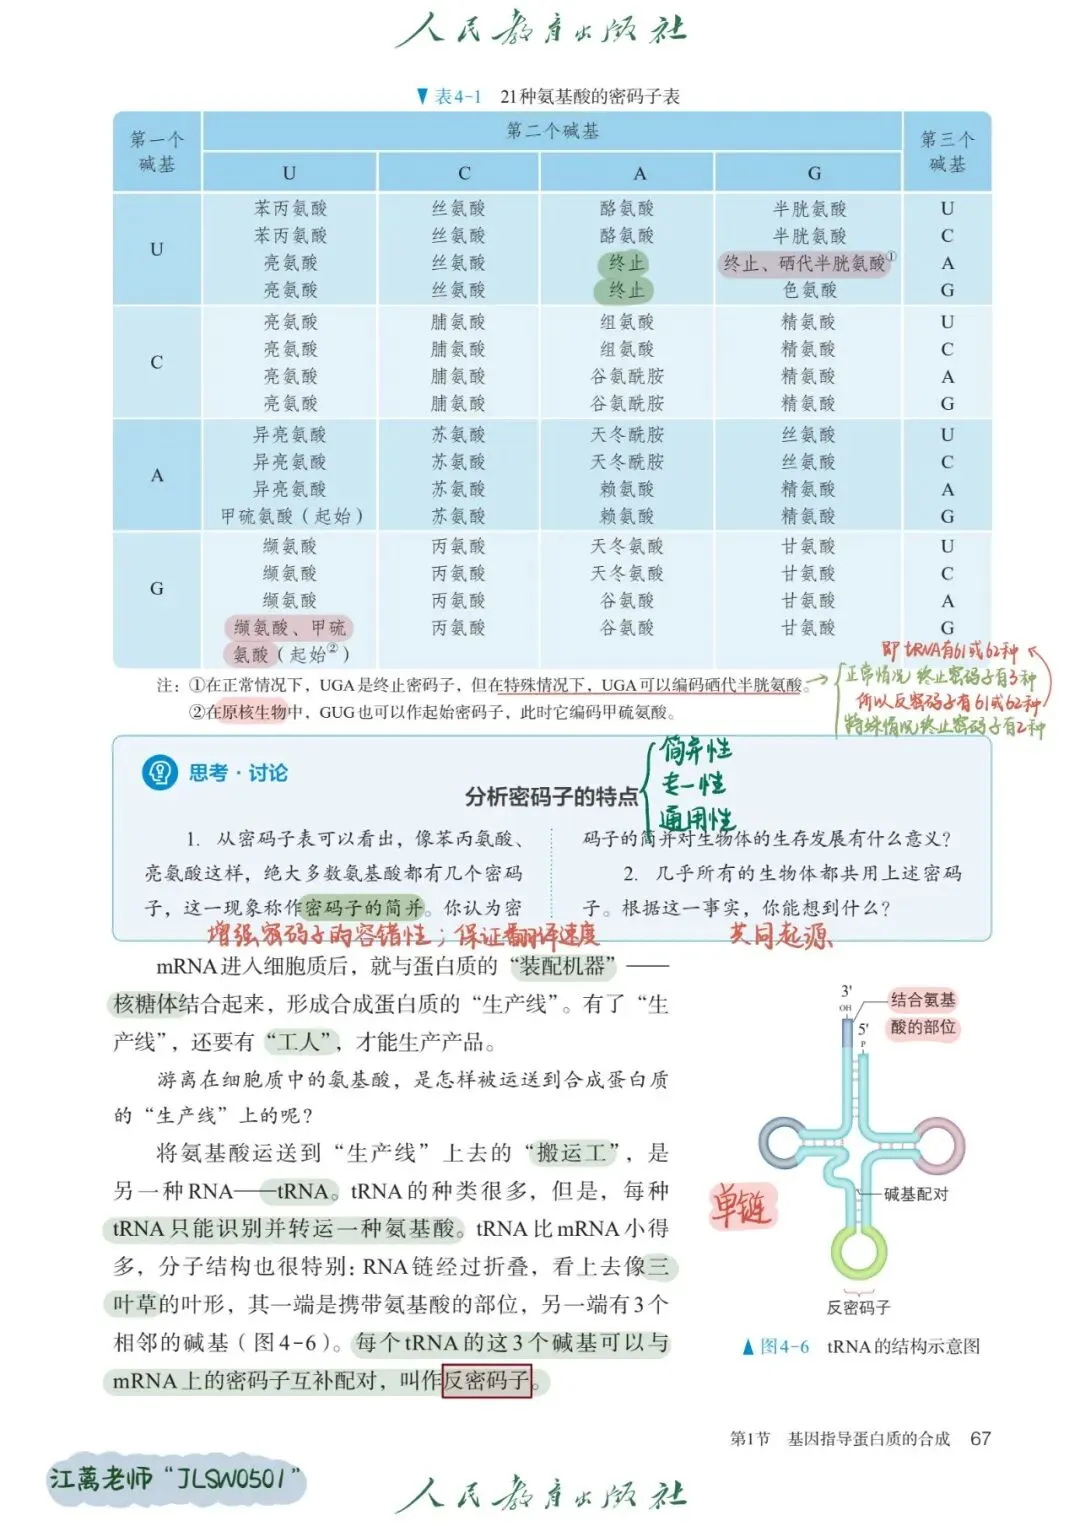
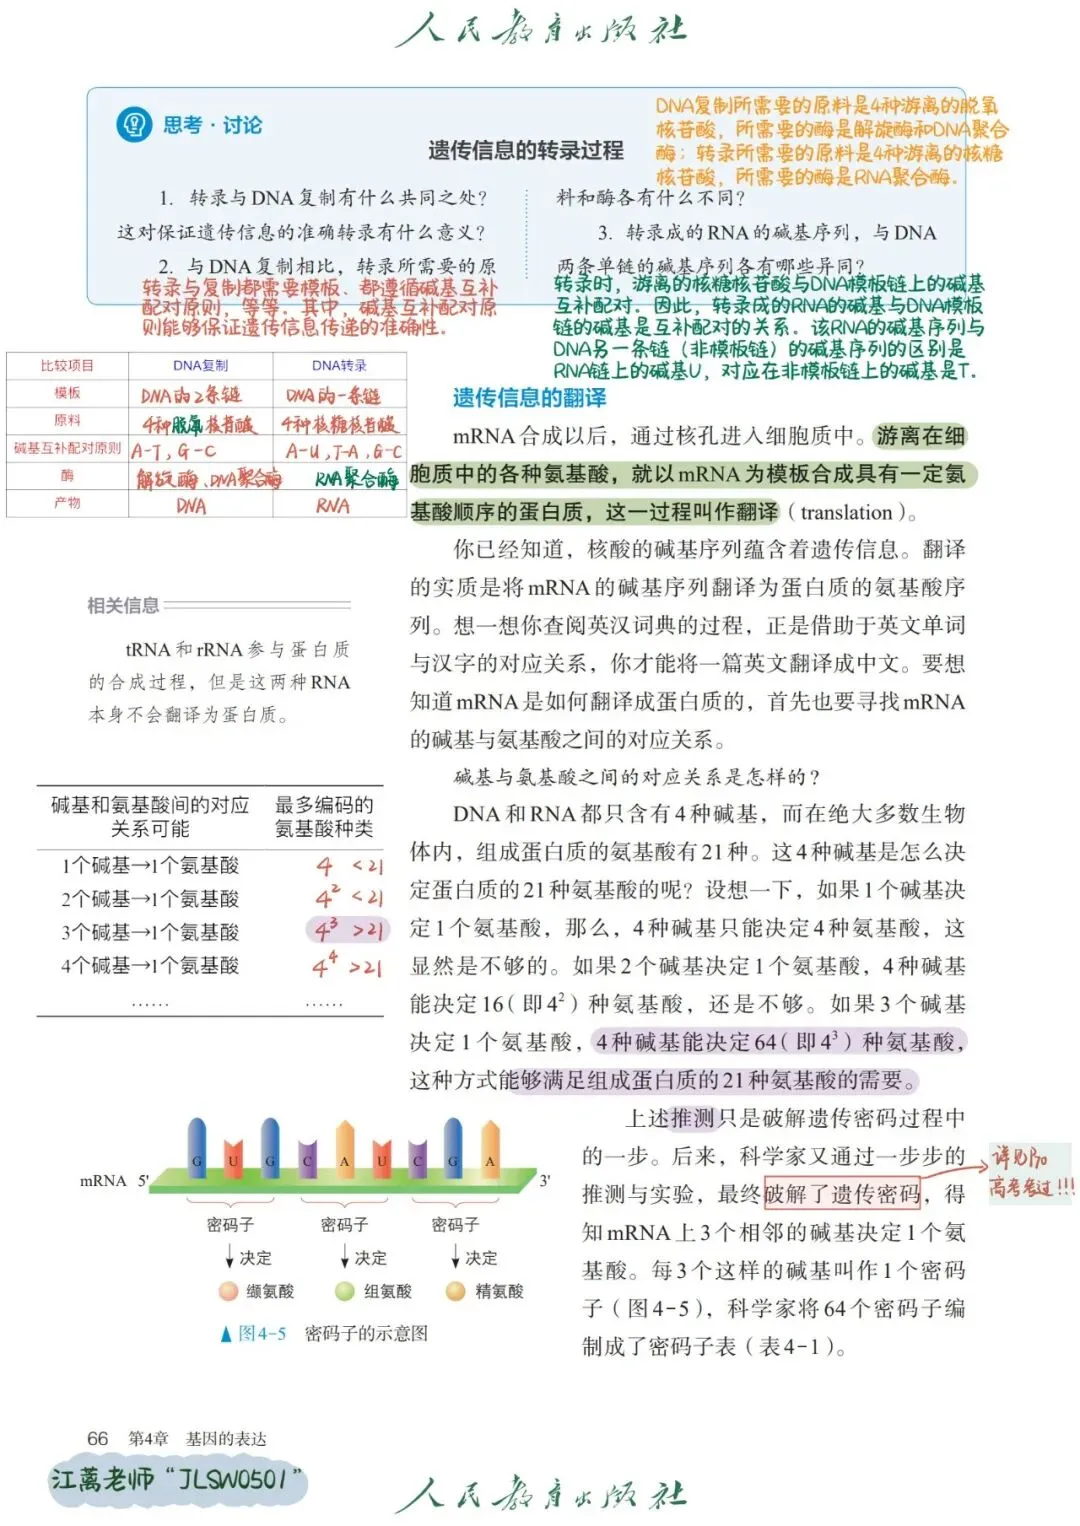
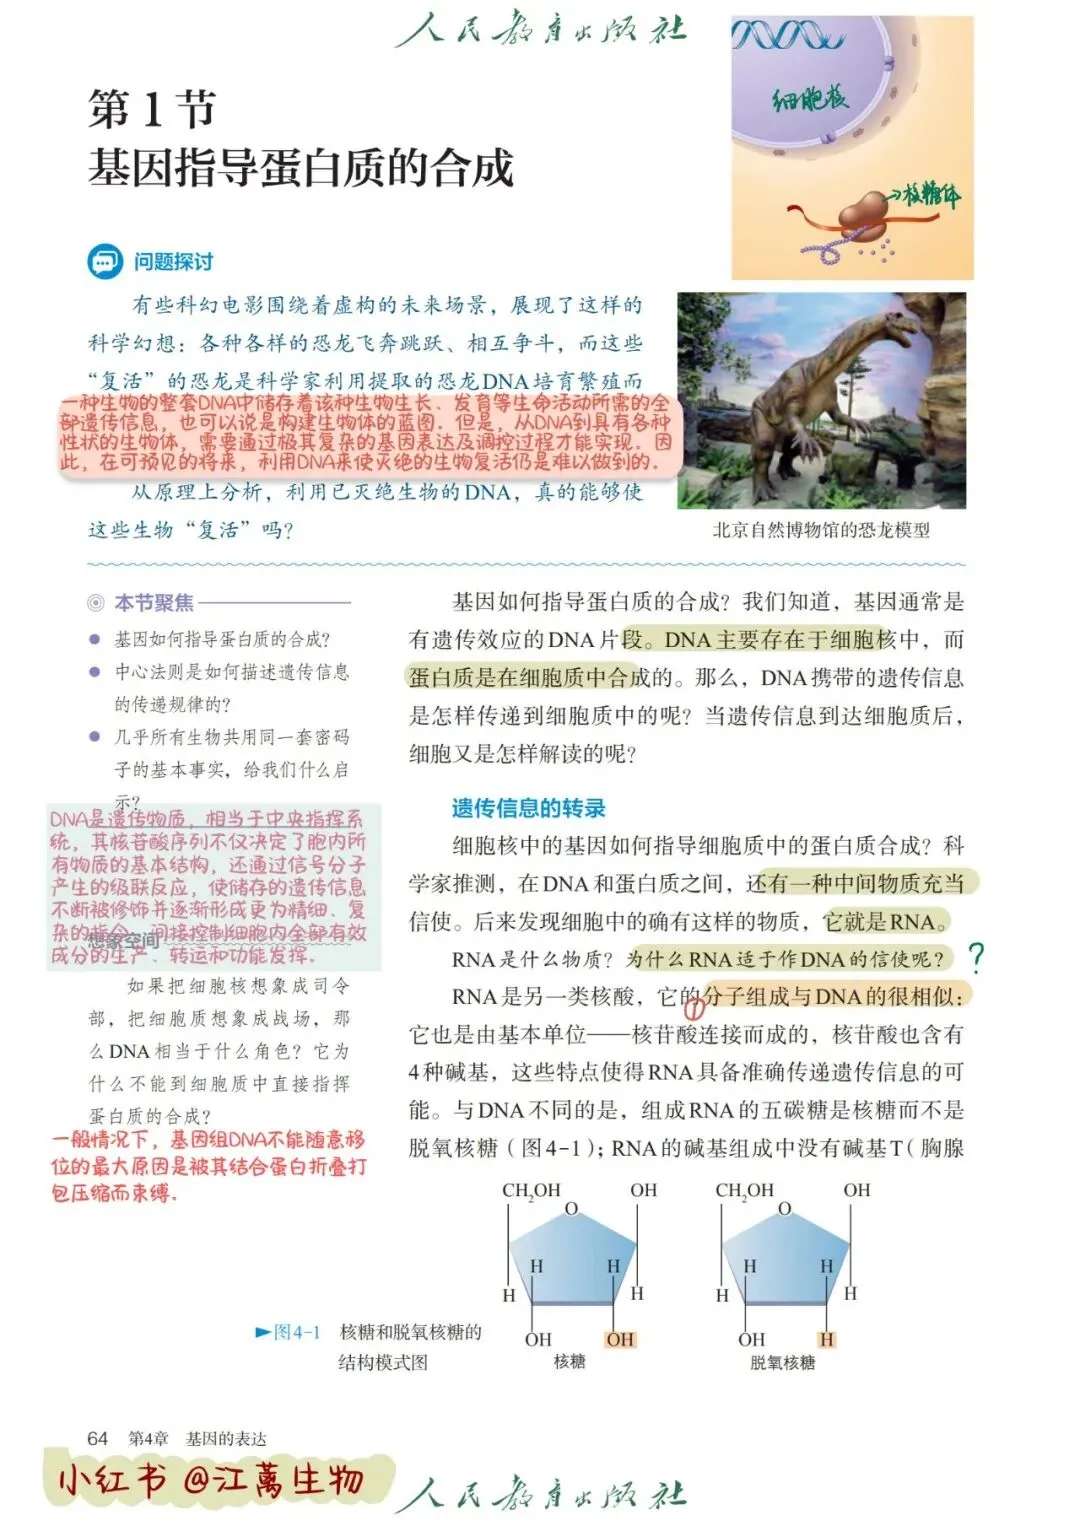
DNA是由核苷酸聚合而成的。每一个核苷酸都由三部分组成:一个磷酸基团、一个脱氧核糖(五碳糖)和一个含氮碱基。在DNA链中,核苷酸之间通过磷酸二酯键连接。具体来说,一个核苷酸的3'碳原子上的羟基(-OH)与下一个核苷酸的5'碳原子上的磷酸基团形成酯键。
这就赋予了DNA链两个不同的末端:
·5'端:带有游离磷酸基团的一端。
·3'端:带有游离羟基(-OH)的一端。
两条DNA链通过碱基对之间的氢键结合在一起,且方向相反,称为反向平行。一条链是5'→3'方向,另一条链必然是3'→5'方向。
1.2如何断裂氢键?
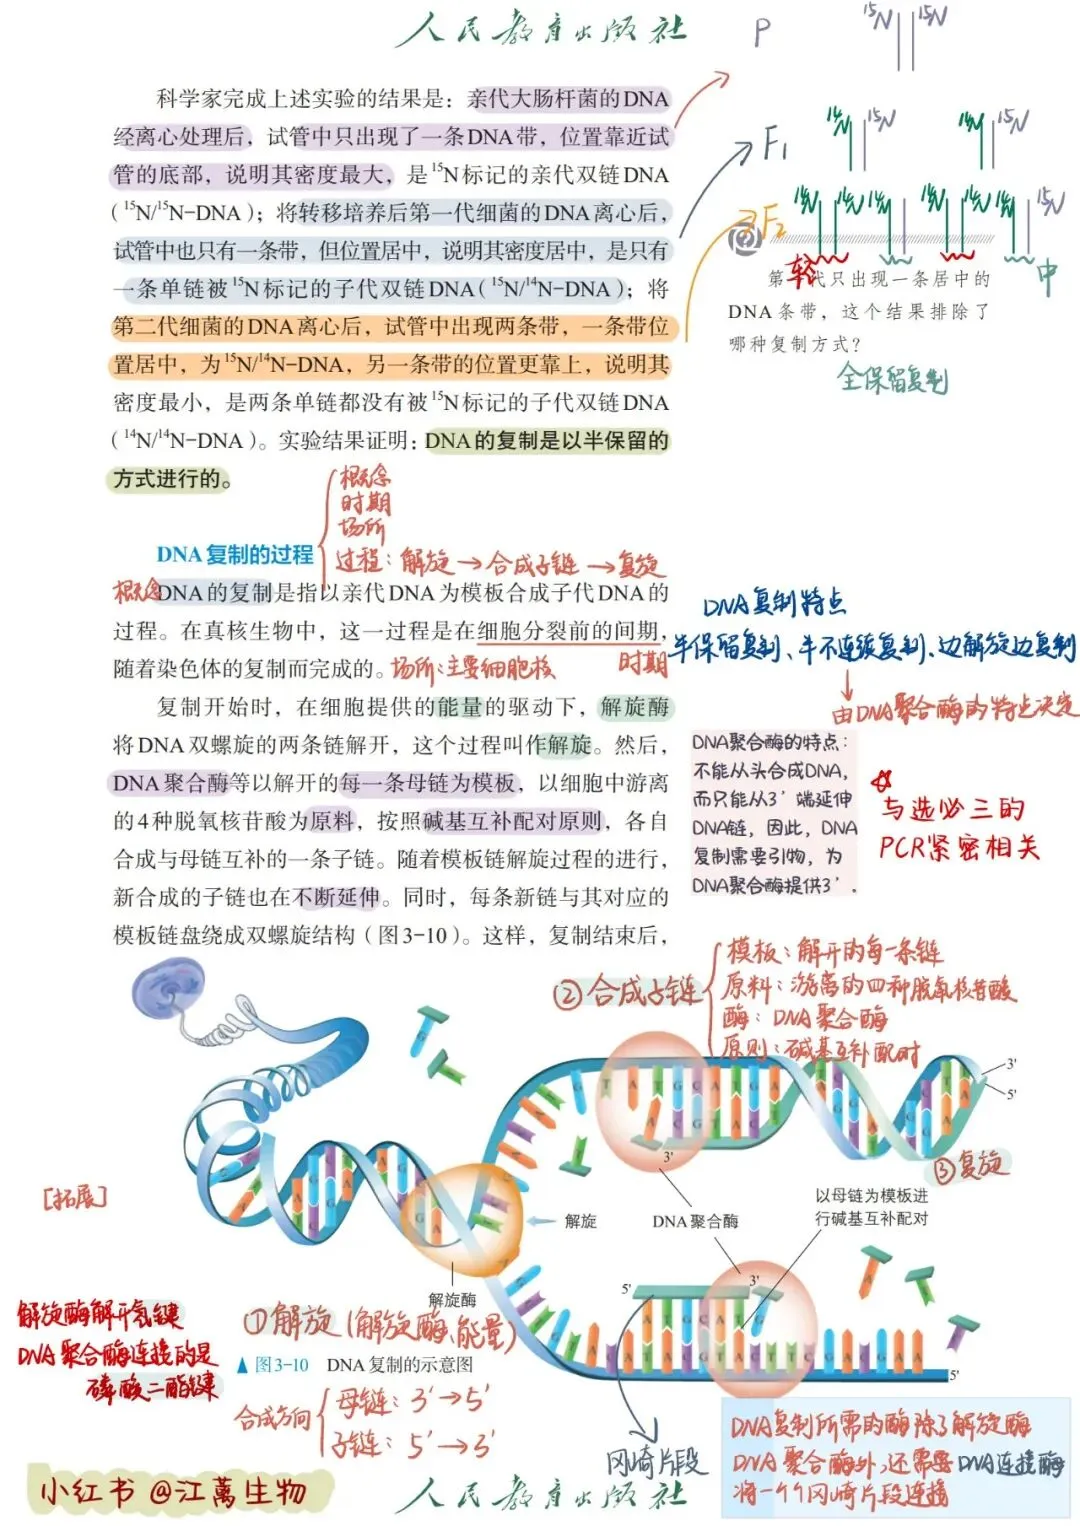
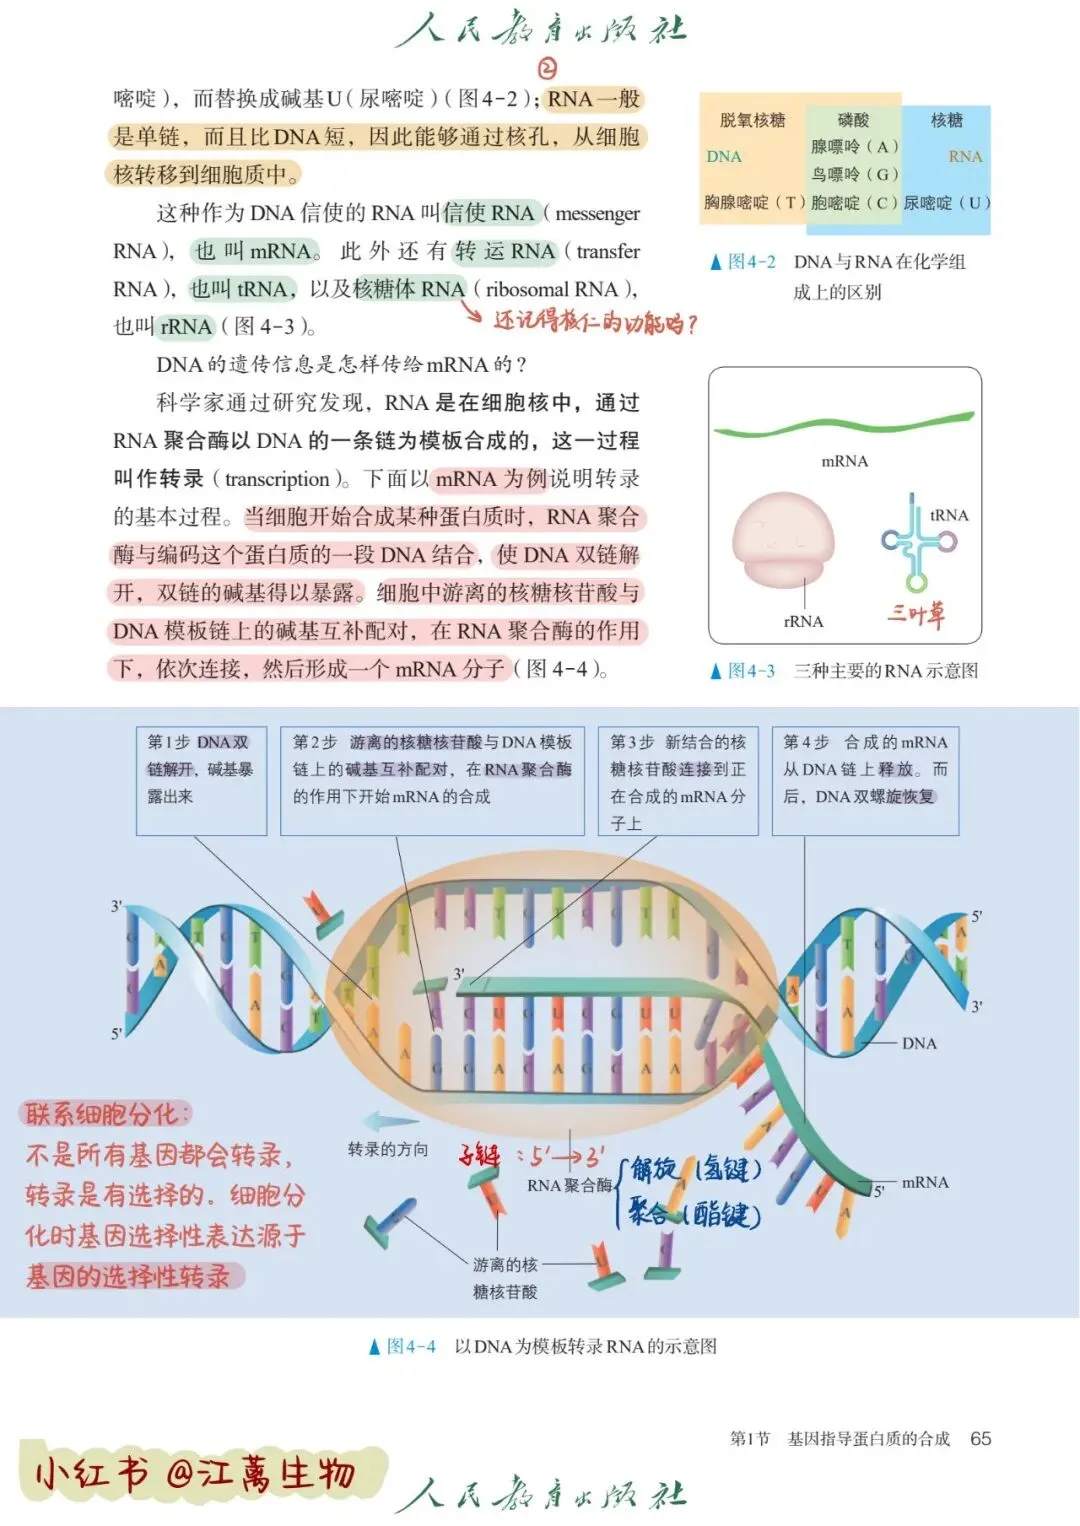
在复制开始前,双螺旋结构必须先解开。这依赖于DNA解旋酶。
解旋酶并不是“化学剪刀”,而是一个ATP驱动的分子马达。它沿着DNA链移动,利用ATP水解产生的能量,像“楔子”一样强行插入碱基对之间,通过机械力将两条链“拉开”。氢键本质上是弱的静电相互作用,这种物理拉力足以破坏它们。简单来说,解旋酶的工作方式是物理剥离,而不是化学切割。被解开的单链立刻被单链结合蛋白结合,防止它们重新退火。
二、DNA聚合酶是什么?为什么只能从5'到3'合成?
2.1DNA聚合酶的作用
DNA聚合酶是负责合成DNA的酶。它的核心功能是:催化一个新的核苷酸加到已有的核苷酸链的3'-OH末端上,形成磷酸二酯键。
注意,这里的关键词是“3'-OH末端”。DNA聚合酶不能凭空开始合成,它必须有一个已存在的3'-OH末端作为“起跑点”,这也就是为什么DNA复制需要RNA引物(提供3'-OH)。
2.2为什么DNA聚合酶只能从5'→3'方向合成?
这是本节课最核心的问题,答案隐藏在生化反应的机理中:
DNA聚合酶催化的反应是:dNTP的α-磷酸基团受到引物链3'-OH的亲核攻击。反应发生时,dNTP的α-磷酸基团与3'-OH形成磷酸二酯键,同时释放出焦磷酸(PPi)。焦磷酸的水解会释放大量能量,推动反应正向进行。
也就是说,能量来自底物dNTP自身。如果DNA聚合酶要从3'→5'方向合成,它需要什么?它需要3'端的核苷酸(带有游离3'-OH)去攻击5'端核苷酸的磷酸基团。但在生理条件下,DNA链的5'端通常带有磷酸基团,而不是高能的三磷酸基团。没有高能键的驱动,这个反应在热力学上是不可行的。
更重要的是,3'→5'合成会导致校对机制失效。DNA聚合酶具有3'→5'外切核酸酶活性,能够切除错误掺入的核苷酸。这种校对机制要求新合成的链末端始终是3'-OH。如果从3'→5'合成,链末端变成5'-P,就无法进行校对,DNA复制的错误率将急剧升高。
所以,5'→3'合成是自然选择在能量学和保真度上双重优化的结果。
三、半不连续复制:前导链与后随链
3.1反向平行带来的矛盾
现在问题来了:DNA双链是反向平行的,复制叉处两条链同时作为模板。既然DNA聚合酶只能沿5'→3'方向合成,那么:
·以3'→5'方向的链为模板,新链可以沿着复制叉移动的方向连续合成。这条链叫做前导链。
·以5'→3'方向的链为模板,新链的合成方向必须也是5'→3',但这与复制叉移动方向相反。这怎么解决?
3.2后随链与冈崎片段
生命给出的解决方案极其精妙:不连续合成。
后随链的合成是分段进行的。当复制叉向前推进,暴露出足够长的单链模板时,引物酶会合成一段RNA引物,DNA聚合酶III随后延伸这段引物,合成一段短的DNA片段,直到遇到前一个片段的引物。然后,DNA聚合酶I切除RNA引物并填补缺口,DNA连接酶将相邻片段连接起来。
这些不连续合成的短DNA片段,被称为冈崎片段。在大肠杆菌中,冈崎片段长度约为1000-2000个核苷酸;在真核生物中约为100-200个核苷酸。
3.3为什么需要冈崎片段?
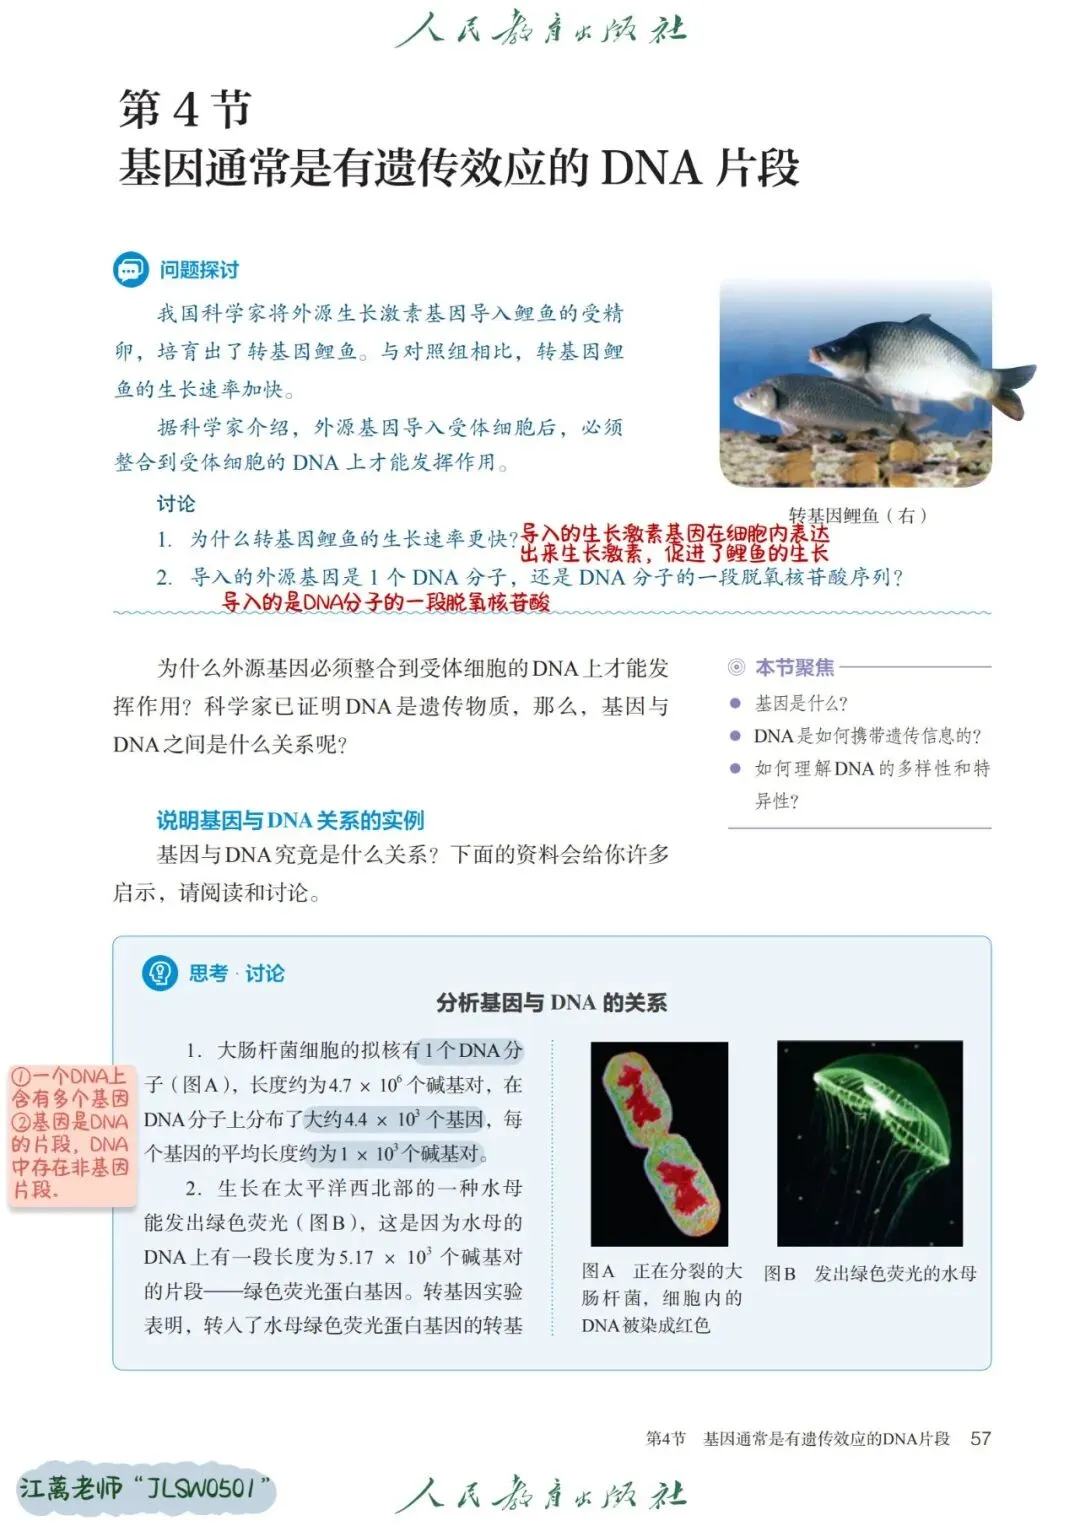
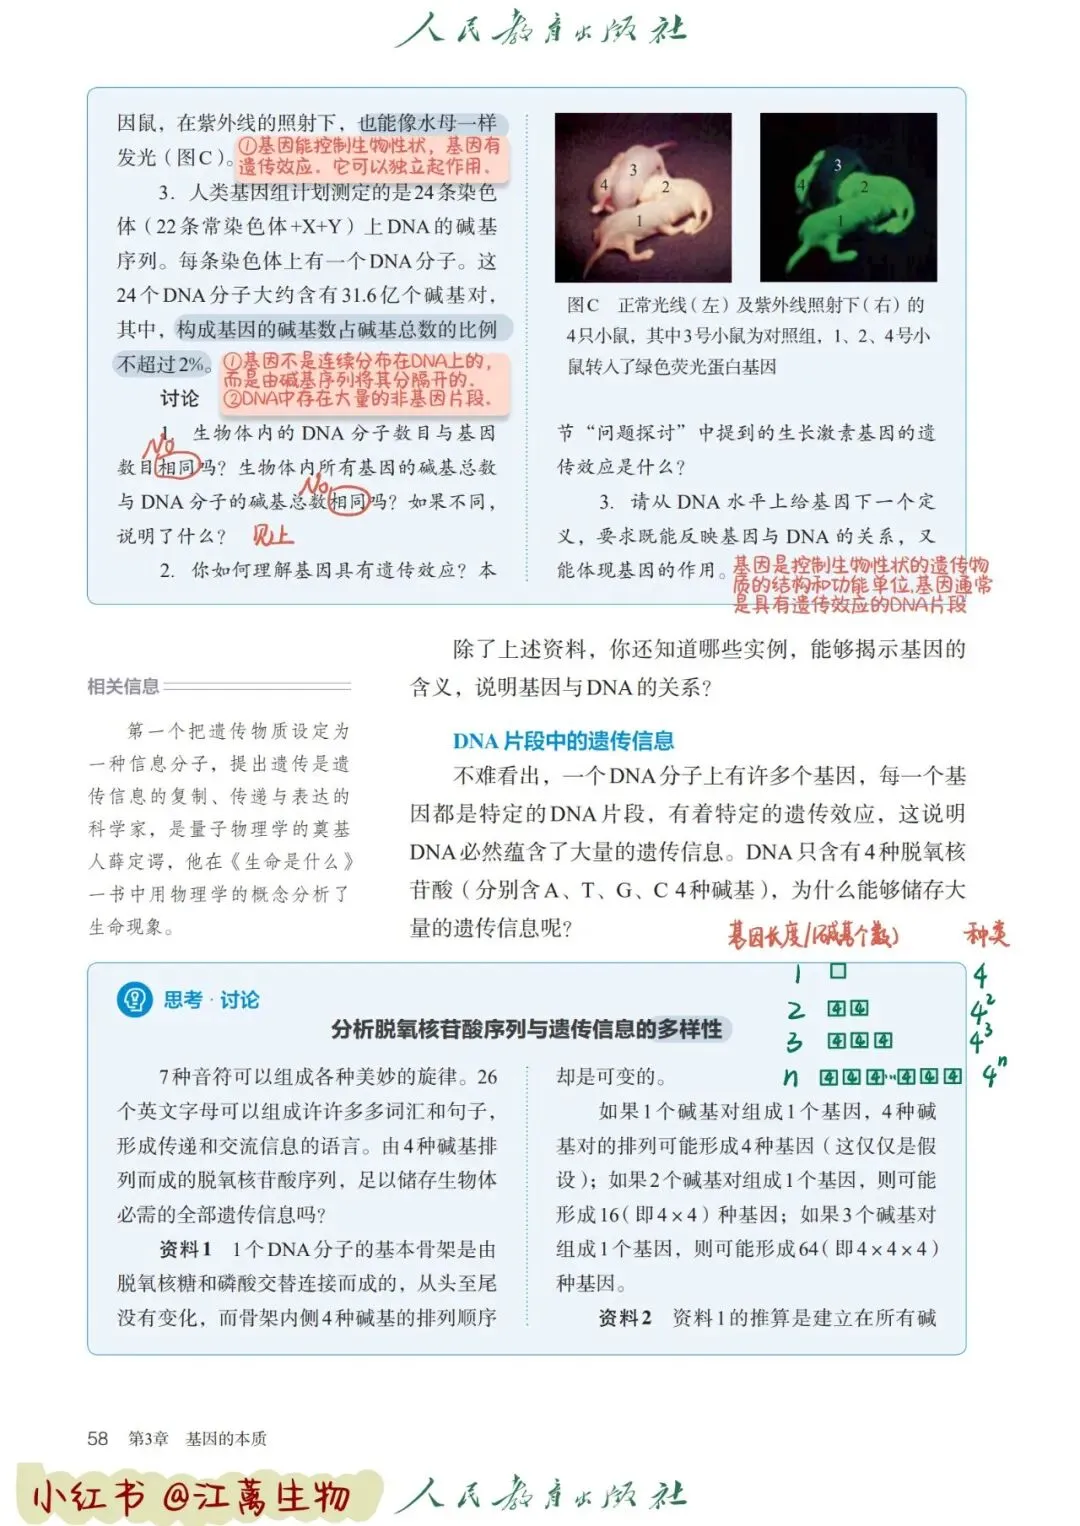
冈崎片段是生命在“5'→3'法则”约束下的必然妥协。既然不能反方向连续合成,就只能“化整为零”,反向分段合成,再缝合起来。这种机制被称为半不连续复制——前导链连续,后随链不连续。
所以,回到同学们的问题:“一条链是5'到3',另一条链是3'到5',怎么复制?”答案是:两条新链都从5'到3'合成,但后随链的合成是“倒退着”进行的,分段合成后再由连接酶拼接。
四、原料为什么是dNTP?如何证明?
4.1为什么是dNTP?
DNA合成的原料是四种脱氧核苷三磷酸:dATP、dTTP、dCTP、dGTP。
为什么是三磷酸(dNTP),而不是一磷酸(dNMP)或二磷酸(dNDP)?
因为需要能量。如前所述,DNA聚合酶催化的反应需要能量驱动。dNTP的α-磷酸基团与3'-OH形成磷酸二酯键后,释放出焦磷酸(PPi)。焦磷酸随后被焦磷酸酶水解为两分子无机磷酸,释放大量自由能。这种“焦磷酸水解驱动”的机制,使得磷酸二酯键的形成在生理条件下不可逆。如果用dNMP做原料,就没有高能磷酸键提供能量,反应根本无法进行。
4.2如何证明?
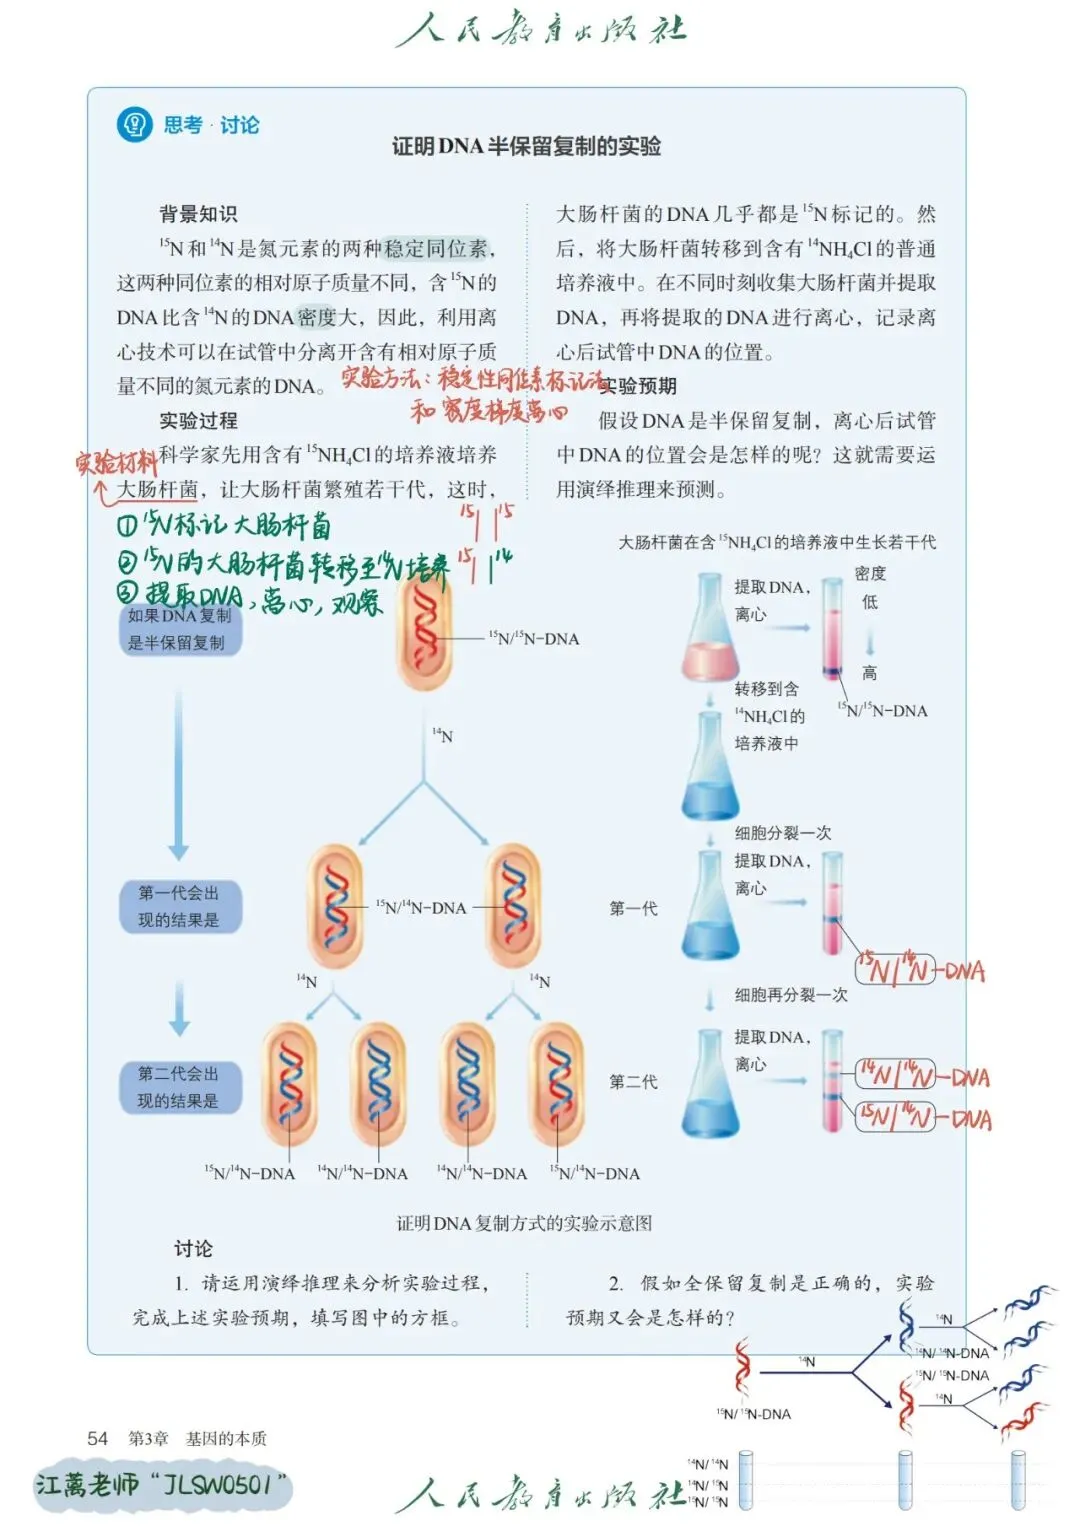
证据一:同位素标记实验。科学家用放射性同位素标记dNTP,追踪它们在DNA合成中的掺入情况。实验证明,只有dNTP能够被掺入新合成的DNA链中,且伴随焦磷酸的释放。
证据二:Kornberg的实验。1956年,ArthurKornberg在大肠杆菌中发现了DNA聚合酶I,并在体外实验中证明了它需要dNTP作为底物、需要模板和引物才能合成DNA。这项开创性工作获得了1959年诺贝尔生理学或医学奖。
证据三:脉冲标记与电子显微镜观察。通过短时间脉冲标记(如用^3H-胸腺嘧啶),科学家发现前导链的标记是连续的,而后随链的标记出现在不连续的片段中(冈崎片段)。电子显微镜下也可以直接观察到复制叉附近的不连续片段。
证据四:温度敏感突变体实验。利用DNA连接酶的温度敏感突变体,科学家发现,在非允许温度下,冈崎片段无法被连接成完整的长链,直接证明了后随链的不连续合成机制。
五、常见误区辨析
误区一:DNA聚合酶能从头合成DNA。
错误。DNA聚合酶只能将核苷酸加到已有的3'-OH末端上,不能从头合成,所以需要RNA引物。
误区二:前导链和后随链的合成方向不同。
错误。两条新链的合成方向都是5'→3'。不同之处在于,前导链的合成方向与复制叉移动方向一致,后随链的合成方向与复制叉移动方向相反。
误区三:冈崎片段是RNA片段。
不准确。冈崎片段是由RNA引物和随后的DNA片段组成的。引物被切除后,留下的才是纯粹的DNA片段。
误区四:DNA连接酶连接氢键。
错误。DNA连接酶催化的是磷酸二酯键的形成,连接冈崎片段之间的缺口。氢键是碱基对之间的相互作用,由碱基互补配对自发形成,不需要连接酶。
六、总结
同学们,今天这节课的核心内容可以概括为以下几点:
5'端带有游离磷酸基团,3'端带有游离羟基。两条DNA链反向平行,一条是5'→3',另一条是3'→5'。
解旋酶通过ATP水解提供机械力,将双链“拉开”,断裂碱基对之间的氢键。
DNA聚合酶只能从5'→3'方向合成DNA。这是因为dNTP的α-磷酸基团受到3'-OH的亲核攻击,释放焦磷酸提供能量。3'→5'合成在能量学和校对机制上都不可行。
半不连续复制是反向平行双链在5'→3'法则下的必然结果。前导链连续合成,后随链不连续合成,形成冈崎片段,最后由DNA连接酶缝合。
原料是dNTP(脱氧核苷三磷酸),因为需要高能磷酸键提供能量。同位素标记、Kornberg实验、脉冲标记和电子显微镜观察共同证明了这一机制。
两条新链的合成方向都是5'→3',这是生命在能量效率和复制保真度之间找到的最优解。
希望今天的讲解能帮助大家彻底搞清楚DNA复制的方向之谜。如果还有疑问,欢迎随时提问。
参考文献
[1]NelsonDL,CoxMM.LehningerPrinciplesofBiochemistry(7thed.)[M].NewYork:W.H.FreemanandCompany,2017.
[2]王镜岩,朱圣庚,徐长法.生物化学(第3版)[M].北京:高等教育出版社,2002.
[3]LewinB.GenesIX[M].Sudbury:JonesandBartlettPublishers,2008.
[4]KornbergA,BakerTA.DNAReplication(2nded.)[M].NewYork:W.H.FreemanandCompany,1992.
[5]GriffithsAJF,WesslerSR,CarrollSB,etal.IntroductiontoGeneticAnalysis(11thed.)[M].NewYork:W.H.FreemanandCompany,2015.