ARTICLE · 1386169
智鼠课堂| APP/PS1小鼠的雌雄差异——做AD研究,背景和性别到底怎么选?
【导语】如果你正在用或准备用APP/PS1小鼠做阿尔茨海默病(AD)研究,有一个问题几乎绕不开:我该选雄性还是雌性?选哪个背景?用几个月龄? 这三个变量如果没在设计阶段想清楚,后面的数据很可能既解释不了,也重复不出来。这篇就从背景品系讲到雌雄差异,把APP/PS1小鼠的选鼠逻辑一次说清。
本文由南京智鼠研途生物科技有限公司技术团队整理。智鼠研途专注啮齿类疾病模型构建与实验技术服务,为科研客户提供从模型到数据的一站式服务。
01
认识APP/PS1小鼠
Understanding APP/PS1 mice
APP/PS1双转基因小鼠共表达人源APP瑞典突变(KM670/671NL)以及人PS1的deltaE9突变,由PrP启动子驱动,主要在中枢神经元高表达转基因蛋白MMRRC。核心病理特征为随年龄进展的脑内Aβ淀粉样斑块沉积、斑块周围胶质增生,伴随逐步出现的突触损伤、行为认知缺陷。
模型重要局限:该模型主要模拟淀粉样蛋白级联上游病理,Tau蛋白病理极弱,几乎不产生神经原纤维缠结。
适合方向:Aβ沉积机制研究、斑块相关胶质免疫反应、早期突触功能、抗Aβ药物药效评价。
不适合:以Tau缠结、Tau驱动神经退行为核心科学问题的首选动物模型。
文献统计,在全部AD转基因小鼠模型中,APP/PS1的发文使用量位居第一,但大量论文存在背景混杂、性别选择描述模糊、月龄设置照搬文献,导致实验结果重复性差的问题。
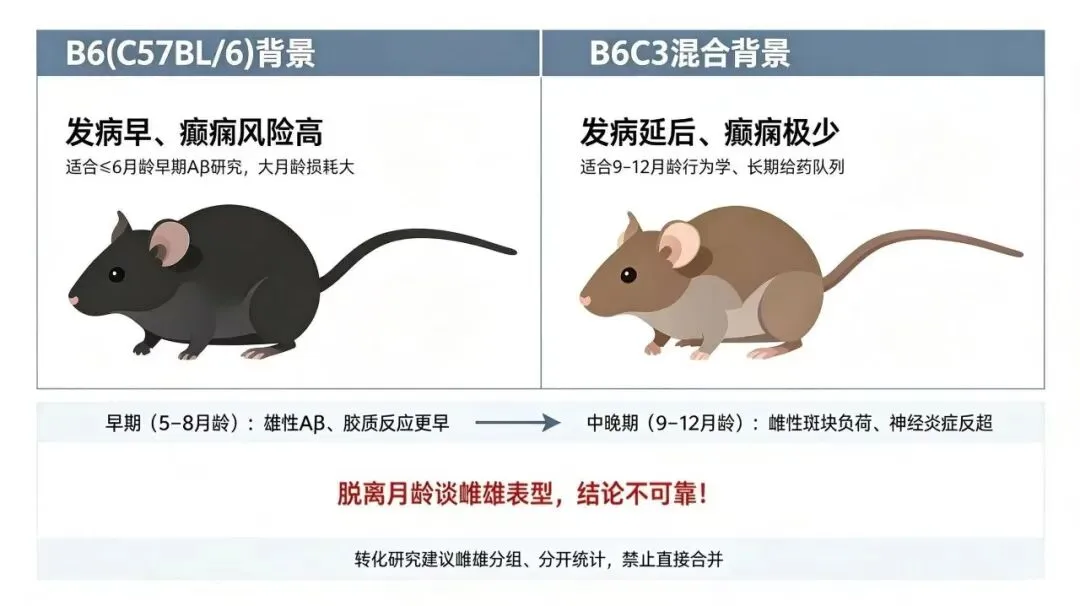
划重点:脱离遗传背景、月龄去谈雌雄表型,很容易得出片面甚至错误的结论。APP/PS1存在两大主流遗传背景:B6(C57BL/6回交纯合背景)、B6C3(C57BL/6×C3H混合背景),二者表型差异巨大,不能混用参考。
智鼠课堂往期整理相关资料:
智鼠课堂 | APP/PS1小鼠品系解析+月龄选型指南,暑期特惠火热进行中!
02
遗传背景B6与B6C3差异
Differences in genetic background between B6 and B6C3
APP/PS1最初的转基因构建在B6C3HF2胚胎上,随后才有一部分品系回交至纯B6背景。B6背景是近交系,遗传均一性高,毛色为黑色;B6C3是C57BL/6与C3H的混合背景,同窝小鼠可能同时出现黑色和棕色两种毛色,在实验中可以直观区分。两者是“同源但背景构成不同”的关系。
1.最核心的差异:自发性癫痫与猝死风险
这是两种背景之间被反复验证、对实验可行性影响最大的区别。
• 纯B6背景:高癫痫风险与高死亡率
半合子B6‑APP/PS1小鼠,视频脑电图监测显示,3‑3.5月龄约25%小鼠至少发生1次癫痫;4.5月龄癫痫发作比例升高至55%;癫痫发作个体死亡率可达10‑15%,猝死高峰集中在3‑4月龄,各个月龄均偶发猝死案例。
回交至N13代B6背景小鼠,17‑18周龄死亡率最高可达38%;另有文献提示,B6背景雌性APP/PS1在8周龄前就会出现不明死亡,对早期实验队列损耗同样不可忽视。
• B6C3混合背景:几乎无癫痫,老龄饲养稳定性强
相比之下,B6C3背景的APPPS1小鼠不表现出任何癫痫发作表型,或“很少出现癫痫”。直接的结果是,B6C3背景大大减少了因癫痫引起的高死亡率。对于需要将小鼠饲养至9-12月龄甚至更老以观察行为学、晚期病理、长期药物干预的实验,这一生存优势至关重要。
2.病理时间线:B6发病更早,B6C3整体时间窗口后移
在AD核心病理方面,两者的基础进程是相似的(通常在6-7月龄左右开始形成明显的Aβ沉积),但观察窗口和实验可行性差异巨大:
斑块与表型差异:B6背景起病更早,6月龄多动已明显,Morris水迷宫缺陷在6–10月龄显现;而B6C3背景的观察窗口整体后移,其特征性行为表型(空间/上下文记忆缺陷、筑巢/挖洞异常)和明显的水迷宫缺陷通常要到9–12月龄才比较明确。
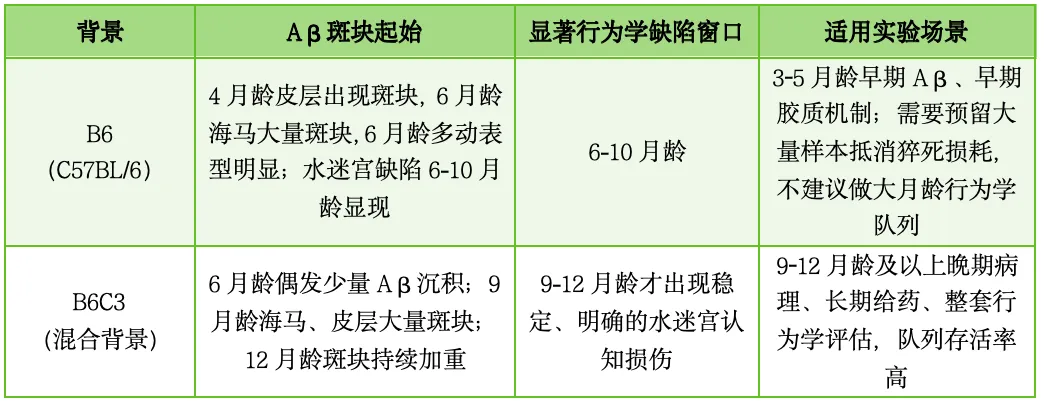
表1 APP/PS小鼠B6和B6C3背景病理时间差异
B6C3背景完整病理阶梯(参考JAX/Alzforum权威品系数据):
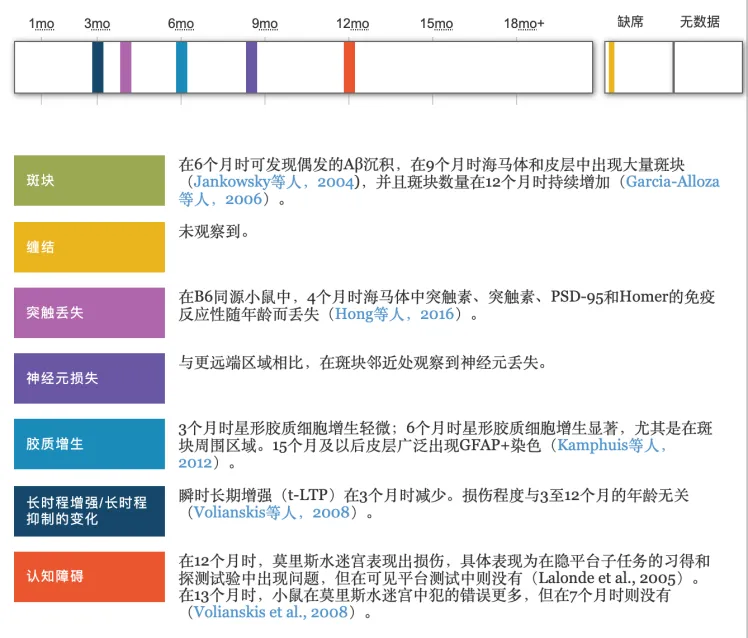
6月龄:开始出现Aβ沉积,同时严重的星形胶质细胞增生同步启动;
9月龄:海马和皮层斑块变得丰富;
12月龄:斑块沉积持续加重,伴随明确的水迷宫空间学习缺陷;
15月龄:GFAP阳性细胞数量随年龄进行性增加,皮层出现广泛染色。
一句话总结:
若你的实验终点≤6月龄,聚焦早期斑块、早期胶质反应,可以选用B6背景,但必须预估样本大量损耗;
若终点≥9月龄,需要做行为学、长期药物干预,优先B6C3,用病理时间后移换取队列稳定,月龄向后调整即可弥补时间差。
03
雌雄差异:存在年龄动态翻转效应
Sexual differences: existence of age-dynamic reversal effect
很多人固有印象:APP/PS1雌性小鼠病理一定比雄性重。但大量研究证实:病理强弱的性别方向,会随着月龄发生翻转,脱离月龄谈性别差异会造成严重误判,下面主要以科研最常用B6C3背景展开说明。
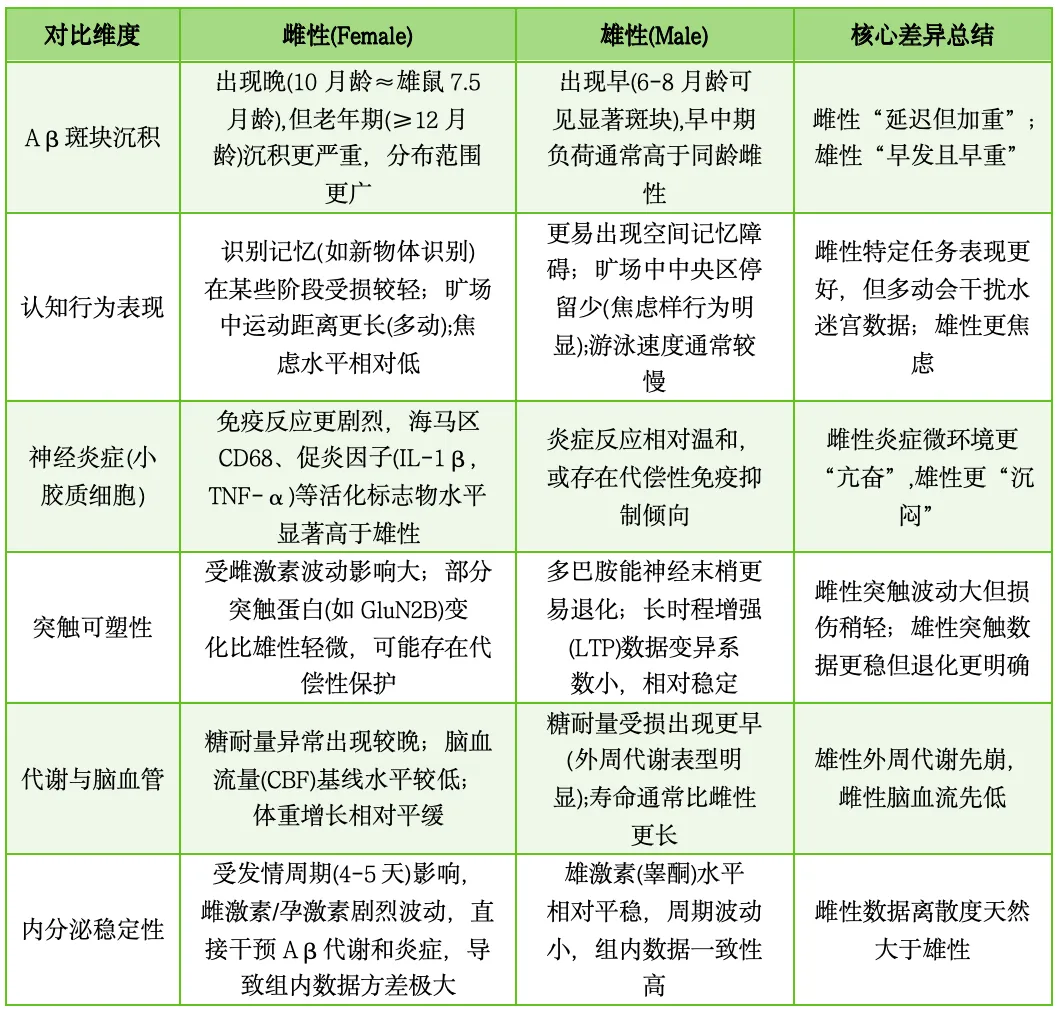
表2 APP/PS小鼠B6C3背景雌雄核心表型对比表
三大关键性别分化规律(文献核心结论)
1.时间动态翻转:早期看雄,中晚期看雌
抛开月龄谈性别差异都是耍流氓。APP/PS1小鼠的病理轨迹在雌雄之间存在明显的“错位”:
• 早期(5‑6月龄,症状前期):雄性病理先启动
雄性竟然率先“发难”。一项2025年发表于《Glia》的研究发现,在症状前期,雄性海马的小胶质细胞数量和Iba1⁺覆盖率整体高于雌性,斑块覆盖率也更高。此时雄性的胶质反应呈弥漫性;而雌性虽然斑块覆盖率低,但募集到斑块周围的小胶质细胞比例却是雄性的2倍(更集中)。甚至,此时雌雄海马CA1神经元的基底谷氨酸能传递改变方向已经完全相反。到了6-8月龄,雄性Aβ斑块已显著出现,属于典型的早发病阶段。
需要区分“神经元活动”与“突触可塑性”:5–6月龄的性别差异主要体现在CA1神经元的基底兴奋性输入和胶质-斑块互作上,而LTP的性别二态性在该年龄点尚未明确建立——突触可塑性层面的雌雄分化,要到中晚期才伴随斑块负荷的拉开而充分显现。
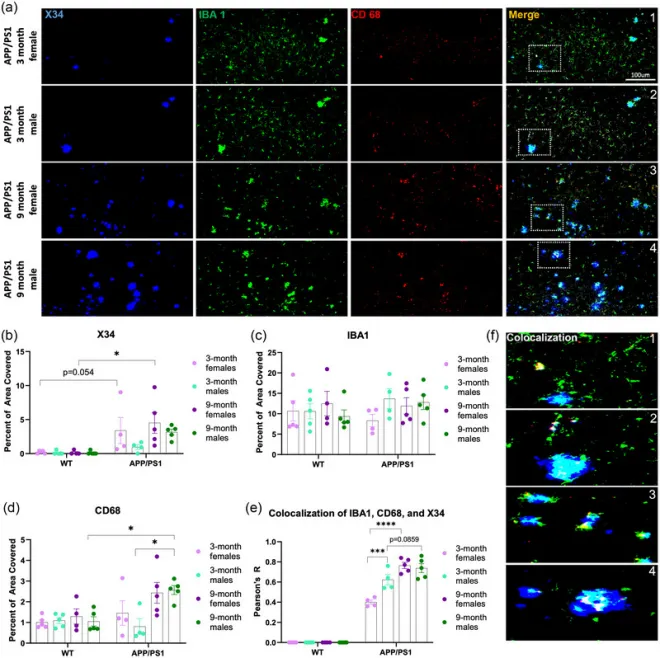
图1 小胶质细胞与斑块共定位——早期雄性的胶质-斑块互作更强
Figure a(代表性免疫荧光图)、b(斑块覆盖率定量)、e(小胶质细胞-斑块共定位定量)。
斑块覆盖率:9月龄雌性APP/PS1显著高于WT(p = 0.0313),3月龄有类似趋势。
小胶质细胞-斑块共定位:3月龄雄性APP/PS1的共定位率显著高于雌性(p = 0.0002);此后随年龄和斑块病理进展,雌性的共定位率增加(p < 0.0001)。
• 中晚期(9-12月龄):雌性开始全面反超
进入9‑12月龄后,雌性B6C3‑APP/PS1的海马、皮层Aβ40、Aβ42不溶性斑块负荷显著超过雄性,LTP衰减、关联记忆衰退更严重,小胶质细胞活化、促炎通路上调更显著,DAM小胶质相关基因表达改变更明显。很多模拟女性AD易感、绝经后损伤加重的课题,均选用这个时间窗口的雌性小鼠。
多项研究一致显示,12月龄时雌性APP/PS1小鼠的脑实质Aβ负荷显著大于雄性。这种“延迟但加重”的特性不仅体现在斑块沉积量和分布范围远超雄性,在功能后果上也更为惨烈——雌性的LTP衰减更快,关联记忆衰退更迅速,并伴随更明显的神经炎症标记上调和突触相关转录本下调。
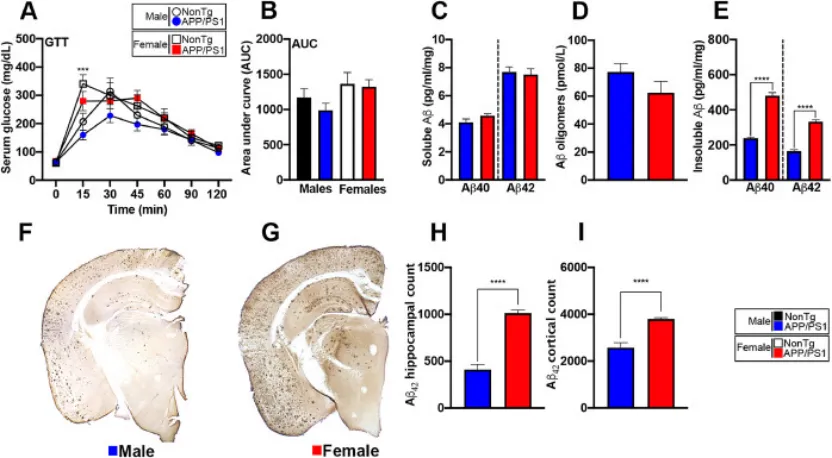
图2斑块负荷柱状图——雌性中晚期Aβ负荷显著更高
Fig. E、F、H(Elisa定量与海马Aβ42斑块负荷定量)
斑块覆盖率:9月龄雌性APP/PS1显著高于WT(p = 0.0313),3月龄有类似趋势。
雌性APP/PS1海马内Aβ42斑块数量显著高于雄性(t = 9.823,p < 0.0001),皮层同样显著(t = 6.902,p < 0.0001);不溶性Aβ40(t = 9.177,p < 0.0001)和Aβ42(t = 9.276,p < 0.0001)在雌性中也显著更高。该结果与Wang et al. (2003) 在12月和17月龄的发现一致:雌性淀粉样负荷和斑块数量均高于同龄雄性。
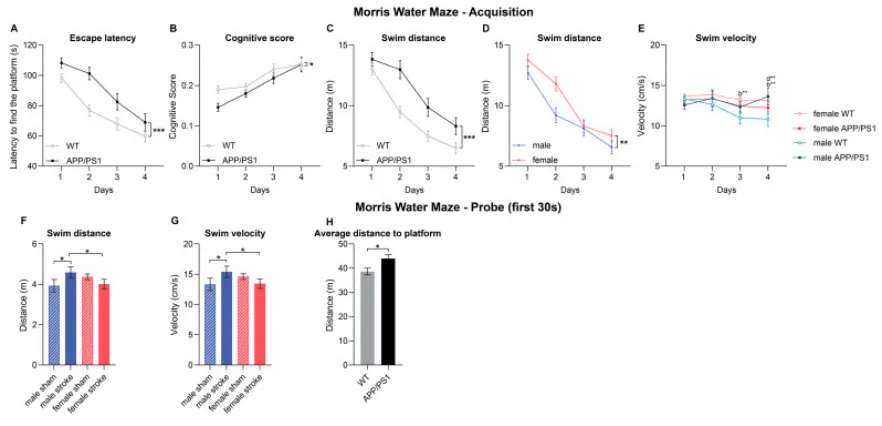
图3 水迷宫逃避潜伏期与游泳速度——行为学的性别分化,必须校正速度
Figure A(逃避潜伏期)、D(游泳距离)、E(游泳速度)
雌性APP/PS1海马与皮层Aβ42斑块负荷显著高于雄性(p < 0.0001)
逃避潜伏期:APP/PS1小鼠显著长于WT(WT n = 55,APP/PS1 n = 25),表明AD相关空间学习下降。
游泳距离:雌性小鼠整体游得更远(male n = 38, female n = 42)。
游泳速度:第3、4天雌性WT游速高于雄性WT;第4天雄性APP/PS1游速高于雄性WT。
2.机制上的极性分化:中枢炎症看雌,外周代谢看雄
雌雄小鼠在疾病系统的崩溃上,呈现出有趣的“错位”:
• 中枢免疫系统:雌性处于“亢奋”状态。在海马区,雌性的小胶质细胞活化标志物(如CD68)和促炎因子(IL-1β,TNF-α)显著高于雄性。如果想找抗炎靶点或研究免疫微环境,雌性在中晚期是极好的窗口。这种性别差异不止停留在标志物层面:雌性APP/PS1小胶质细胞在转录组水平上表现出更显著的DAM相关基因表达改变和铁代谢相关通路的重塑,提示雌性的炎症亢奋具有分子层面的“结构性”基础,而非单纯的活化程度差异。
• 外周代谢与血管:雄性却“先衰”。雄性糖耐量受损出现更早,体重增加更明显;更关键的是,在脑血流量(CBF)下降幅度上,雄性比雌性更为剧烈。若研究血管/代谢共病,雄性可能更敏感。
3.数据质量的天然鸿沟:雄性稳定,雌性波动
雌性小鼠4‑5天一个发情周期,雌激素、孕激素会直接调控Aβ清除、小胶质细胞活化、突触可塑性。如果取材不控制动情周期,组内数据离散度会极大,真实干预效应会被噪声掩盖。
✅ 实操技巧:小鼠动情周期约4–5天,分为动情前期、动情期、动情后期、间情期。用湿润棉签轻拭阴道口取材、涂片镜检,以白细胞为主的间情期作为统一取材窗口,可将雌激素波动对炎症读数的干扰压到最低。如果课题组没有常规做涂片的经验,至少应在取材前连续监测2–3个周期,确认间情期的细胞学特征后再进入正式实验。
04
实战选鼠指南
Practical Guide for Selecting Mice
场景1:药物初筛、电生理LTP/LTD、早期胶质反应
推荐:雄性,6-8月龄B6C3
为什么:雄性6-8月龄斑块已显著,且激素水平稳定、组内方差小。
避坑:雌性在初筛阶段由于发情周期干扰,极易把药效“平均化”,甚至误判剂量。做电生理(LTP/LTD)首选雄性,数据更稳。
场景2:神经炎症、小胶质免疫微环境、模拟女性AD易感性、绝经相关机制
推荐:雌性,9-12月龄B6C3;做绝经课题建议搭配OVX卵巢切除模型
为什么:雌性在这个阶段斑块负荷全面超越雄性,且炎症表型极其突出(小胶质细胞亢奋),容易捕捉干预效果。
避坑:必须做阴道涂片!选在间情期取材,最大程度减少波动。没有条件管控动情周期,不建议单用雌性开展药效筛选。
场景3:认知行为学(看具体任务)
• 新物体识别:雌性在某些任务受损较轻,选雄性更容易看到下降。
• Morris水迷宫:12月龄雌性表现显著更差,是更可靠的窗口。12月龄雌性认知缺损更显著,是优选窗口;⚠️必须校正游泳速度!雌性天生多动游速快,切勿把游得快误判成学习记忆能力更好;
• 推荐一套经过多篇文献验证的标准化行为测试序列:7.5–10月龄的B6C3背景APP/PS1小鼠可采用旷场(自发活动/焦虑)+新物体识别(识别记忆)+Y迷宫(空间工作记忆)+Barnes迷宫(空间参考记忆)的测试序列,该组合在近年文献中已被用于系统评估该模型的性别依赖性行为表型。
场景4:代谢、脑血管与血脑屏障相关研究
建议:雌雄同时设置,分开统计。
• 代谢(糖耐量、体重):雄性受损更早,6-8月龄就很明显。
• 脑血管(CBF):雌性基础血流量更低,雄性10月龄时下降最大。建议两性都选并分开统计。
场景5:新药研发,目标未来临床转化兼顾男女患者
建议:雌雄各半,统计时性别作为独立因素,采用双因素方差Two‑way ANOVA,严禁雌雄数据混合后做统计分析,只做单一性别会降低临床转化价值。
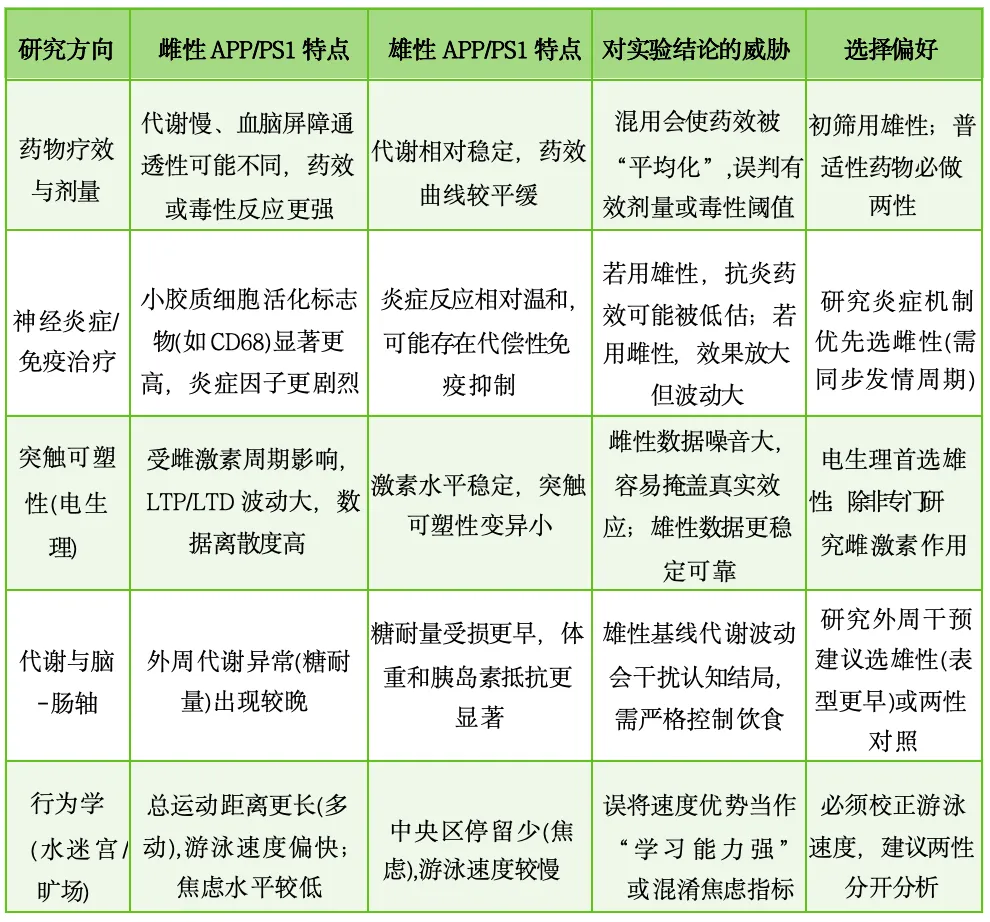
表3 APP/PS1雌雄差异对主要研究领域的具体影响
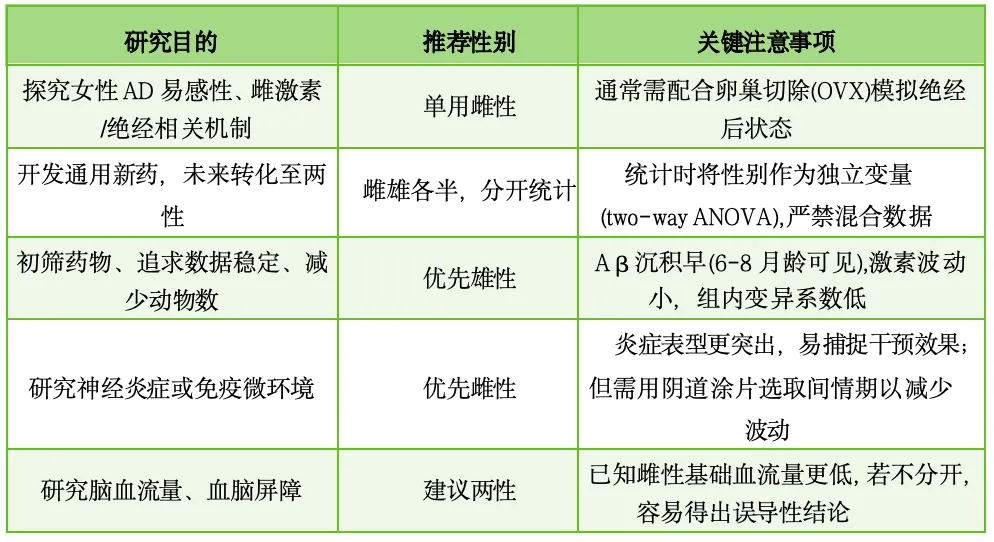
表4 根据实验目的选择性别的“决策树”
05
实验设计建议与总结
Experimental design suggestions and summary
01
❌误判:水迷宫中雌性游速更快,就判定雌性学习记忆更好
纠正:雌性多动是固有表型,一定要校正游泳速度指标,消除运动能力混杂效应。
02
❌误判:5‑6月龄做LTP,雌雄对比没有差异,直接得出APP/PS1不存在性别差异。
纠正:5‑6月龄突触可塑性的性别二态性还未建立;阴性结果不能代表疾病全病程。
03
❌误判:雌性小鼠不做阴道涂片,直接混合取材统计。
纠正:发情周期带来的激素波动会极大放大组内方差,很可能直接掩盖药物/模型真实效应。
04
❌误判:直接把B6背景文献的月龄照搬给B6C3小鼠。
纠正:B6C3整套病理、行为窗口整体延后3‑5个月,月龄不能直接套用。
05
误判:B6背景小鼠直接设计9‑12月龄大月龄队列,不预留样本损耗。
纠正:B6背景存在高癫痫猝死风险,大月龄会出现大量样本丢失,幸存者偏差会扭曲全部实验结果。
06
总结:选APP/PS1小鼠,先回答这3个问题
Summary
1.你的观测终点,是早期胶质、电生理,还是中晚期斑块、认知行为?
2.你选用小鼠遗传背景,是B6(C57BL/6)还是B6C3混合背景?
3.你的研究结论,计划外推到雄性、雌性,还是男女两性?
B6背景斑块发病更早,但伴随高癫痫、高猝死风险,适合早期短期实验;B6C3牺牲发病时间,换来老龄队列高存活率,是9月龄以上晚期病理、行为、长期给药的优选。
B6C3背景:6‑8月龄是雄性病理主场;9‑12月龄雌性斑块、炎症全面反超。只要经费、动物条件允许,优先两性同时纳入,分开统计,能够大大提高结果可靠性,从容应对审稿人质疑。
07
关于智鼠研途
About Zhishu Yantu
智鼠研途生物科技有限公司是专业从事实验动物模型及实验技术服务的生物科技型企业,以国内知名的科学家团队为基础,打造高精尖实验动物学、药物药理学、细胞生物学、分子生物学等共性研究技术平台,构建以动物实验为特色的药物临床前评价、特色动物模型研发与供应、生物医学科研等服务体系。公司具有大小鼠现货库,核心供应APP/PS1(B6C3/B6背景)、3xTg、5xFAD阿尔茨海默病模型小鼠,支持基因型鉴定、月龄筛选,可配合课题方案提供选鼠、繁育、动物实验相关技术咨询,助力AD动物实验少走弯路。同时提供造模服务、实验技术服务和表型分析服务。从模型构建到数据交付,智鼠研途生物为你的研究提速。欢迎科研合作与咨询。
●●●结语●●●
【结语】APP/PS1小鼠的雌雄差异不能用一句“雌性更严重”概括。中晚期斑块负荷和记忆衰退以雌性更重为主,但早期(5–6月龄)小胶质细胞增生和部分神经元电生理改变在雄性中反而更突出;B6C3背景比C57BL/6背景的斑块时间线整体后移约3–5个月,行为学窗口也随之平移。选择性别和月龄时,先问三个问题:你的终点是斑块还是早期胶质/电生理?你的背景是C57BL/6还是B6C3?你打算把结论外推到哪个性别?把这三个问题答清楚,比套用任何“推荐月龄”都更可靠。
参考文献.
[1] Jankowsky J L, Fadale D J, Anderson J, et al. Mutant presenilins specifically elevate the levels of the 42 residue β-amyloid peptide in vivo: evidence for augmentation of a 42-specific γ secretase[J]. Neurobiology of Aging, 2004, 25(3): 323–335. DOI: 10.1016/j.neurobiolaging.2003.09.008.
[2] Garcia-Alloza M, Robbins E M, Zhang-Nunes S X, et al. Characterization of amyloid deposition in the APPswe/PS1dE9 mouse model of Alzheimer disease[J]. Neurobiology of Disease, 2006, 24(3): 516–524. DOI: 10.1016/j.nbd.2006.08.017.
[3] Hong S, Beja-Glasser V F, Nfonoyim B M, et al. Complement and microglia mediate early synapse loss in Alzheimer mouse models[J]. Science, 2016, 352(6286): 712–716. DOI: 10.1126/science.aad8373.
[4] Kamphuis W, Orre M, Kooijman L, et al. Differential cell proliferation in the cortex of the APPswePS1dE9 Alzheimer’s disease mouse model[J]. Glia, 2012, 60(4): 615–629. DOI: 10.1002/glia.22295.
[5] Volianskis A, Køstner R, Mølgaard M, et al. Episodic memory deficits are not related to altered glutamatergic synaptic transmission and plasticity in the CA1 hippocampus of the APPswe/PS1ΔE9-deleted transgenic mice model of β-amyloidosis[J]. Neurobiology of Aging, 2010, 31(7): 1177–1187. DOI: 10.1016/j.neurobiolaging.2008.08.005.
[6] Lalonde R, Kim H D, Maxwell J A, et al. Exploratory activity and spatial learning in 12-month-old APP695SWE/co + PS1/ΔE9 mice with amyloid plaques[J]. Neuroscience Letters, 2005, 390(2): 87–92. DOI: 10.1016/j.neulet.2005.08.002.
[7] Wang J, Tanila H, Puoliväli J, et al. Gender differences in the amount and deposition of amyloidβ in APPswe and PS1 double transgenic mice[J]. Neurobiology of Disease, 2003, 14(3): 318–327. DOI: 10.1016/j.nbd.2003.08.009.
[8] Chaigneau T, Sha S, Roux C M, et al. Subtle alterations in hippocampal neuronal activity coincide with early sex-specific differences in amyloidosis and microglia in a pre-symptomatic mouse model of Alzheimer-like pathology[J]. Glia, 2025, 73(8): 1727–1745. DOI: 10.1002/glia.70029.
[9] Lohkamp K J, Dederen P J, et al. Sex-specific adaptations in Alzheimer’s disease and ischemic stroke: a longitudinal study in male and female APPswe/PS1dE9 mice[J]. Life (Basel), 2025, 15(3): 333. DOI: 10.3390/life15030333.
[10] The Jackson Laboratory. B6;C3-Tg(APPswe,PSEN1dE9)85Dbo/Mmjax (MMRRC Strain #034829-JAX; RRID:MMRRC_034829-JAX)[DB/OL]. https://www.jax.org/strain/004462.
[11] Alzforum. APPswe/PSEN1dE9 (line 85)[DB/OL]. https://www.alzforum.org/research-models/appswepsen1de9-line-85.
订
购
方
式
点赞
收藏
分享
点击阅读原文
跳转官网