ARTICLE · 1127005
溶酶体——细胞的“消化车间”与“自杀袋”高中生物疑难问题深度讲稿
溶酶体——细胞的“消化车间”与“自杀袋”
高中生物疑难问题深度讲稿
一、开篇:一个被“偶然发现”的细胞器
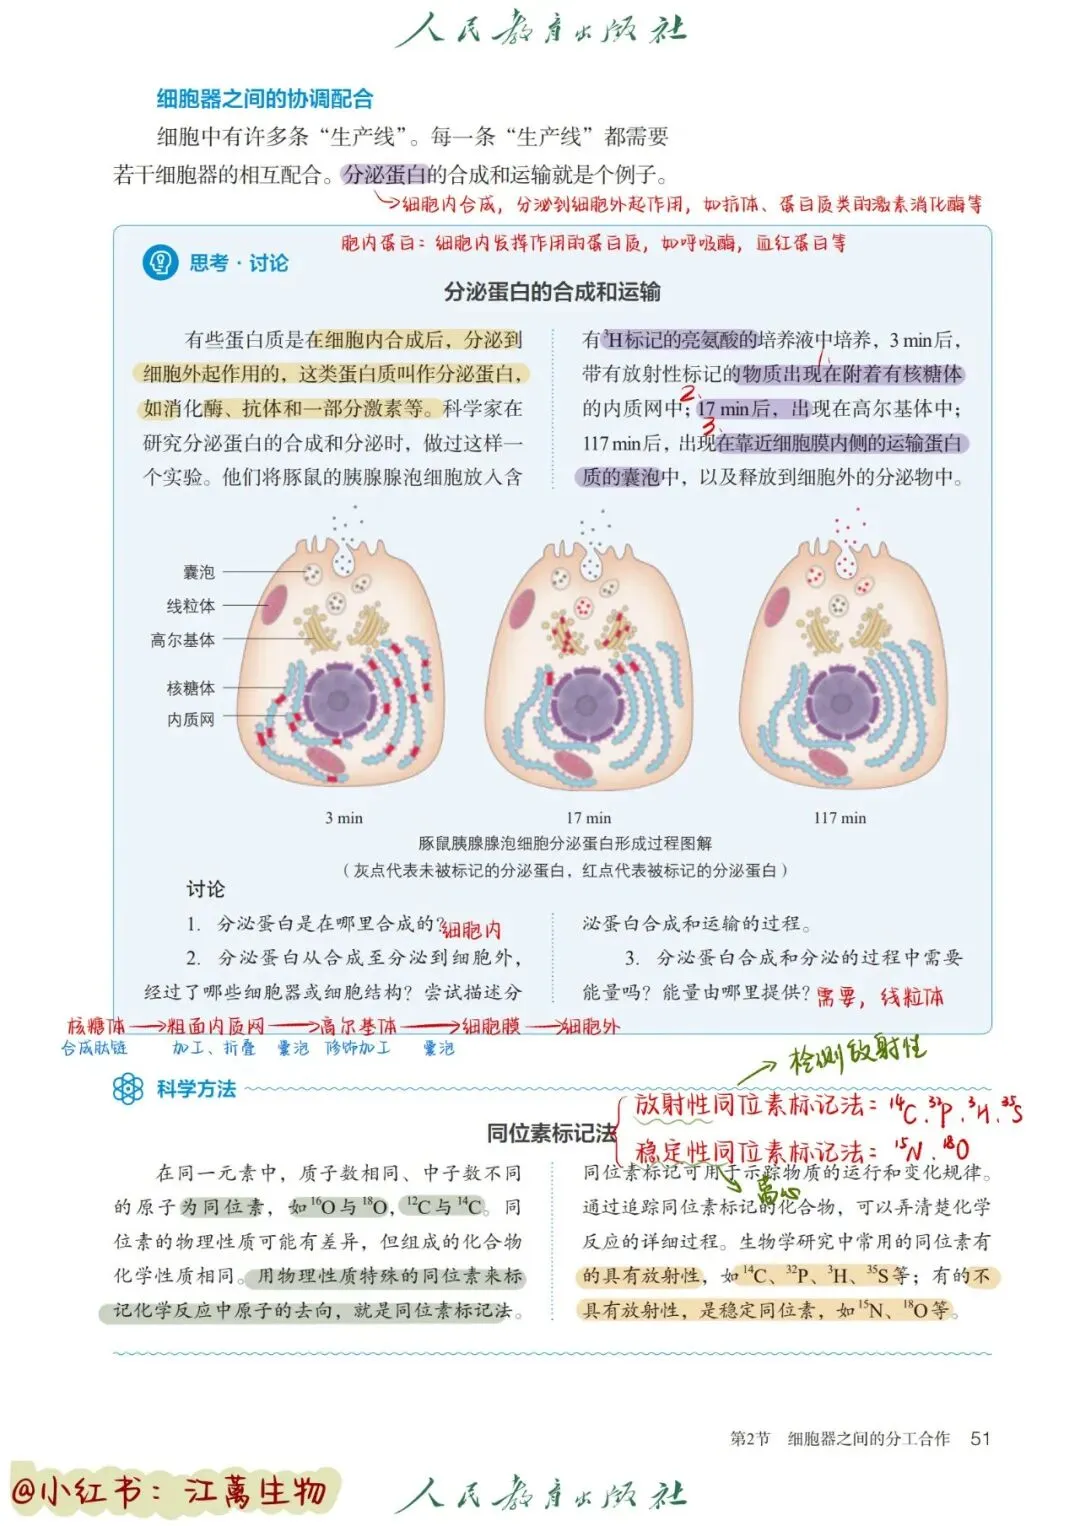
同学们,我们前面讲过了分泌蛋白的合成与运输,今天要讲的溶酶体,和分泌蛋白走的是同一条“高速公路”,但它的目的地完全不同——它不是被运出细胞,而是留在细胞内,成为细胞的“消化车间”。
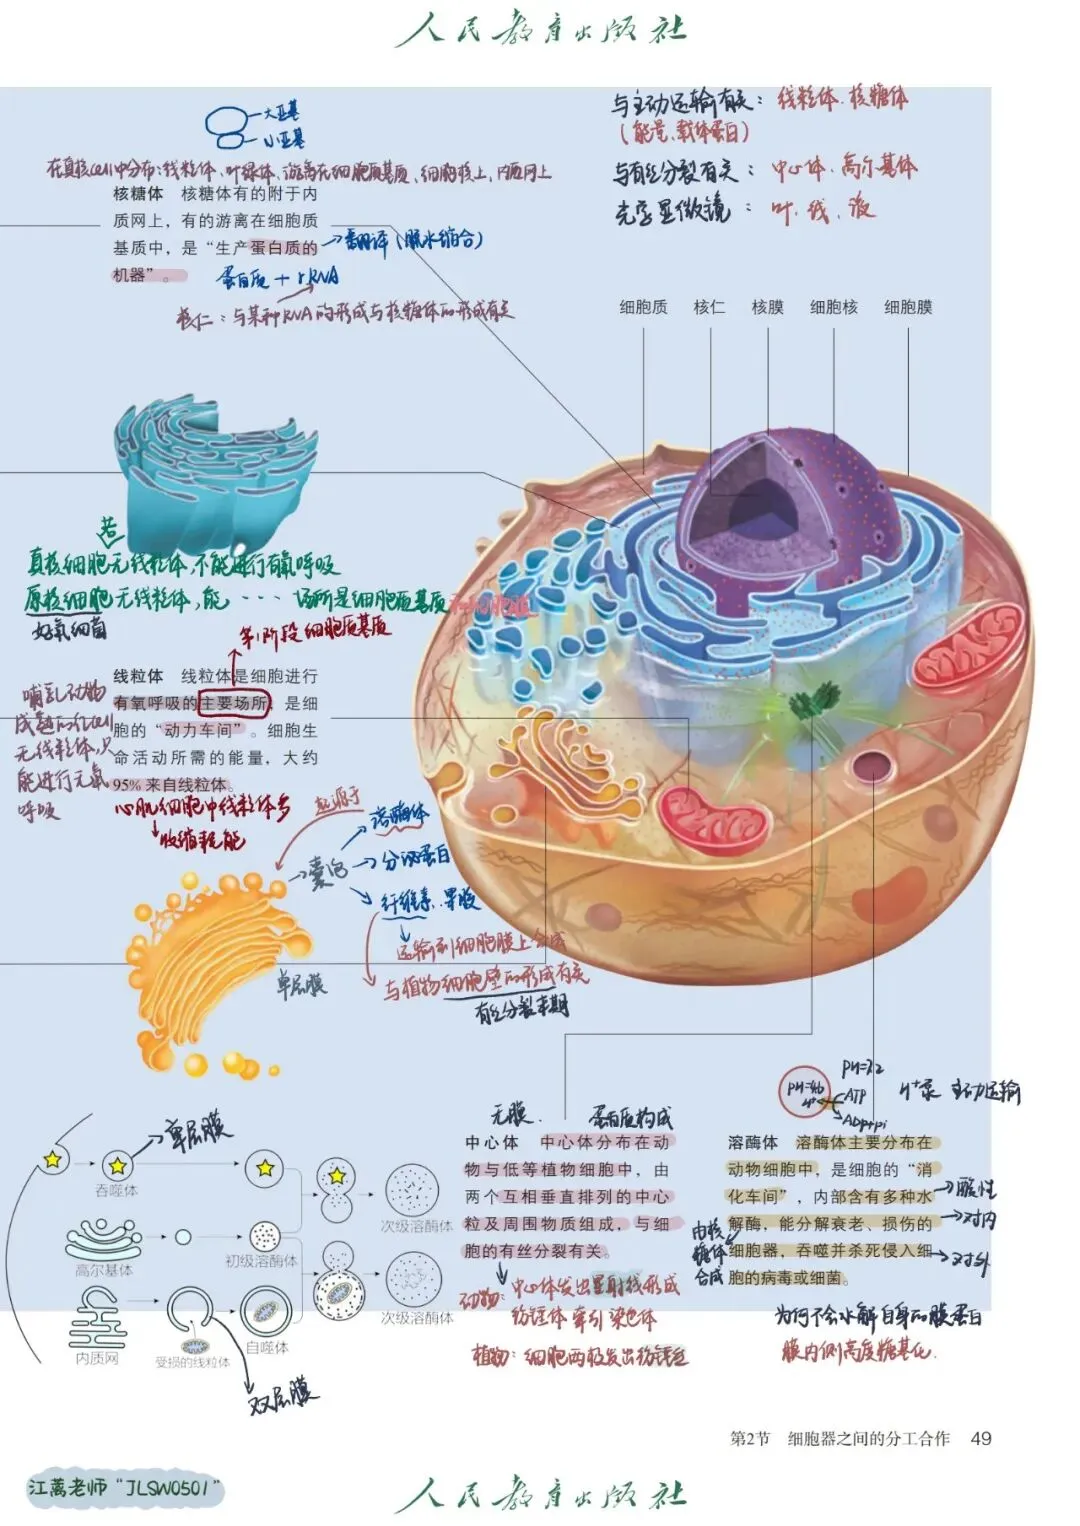
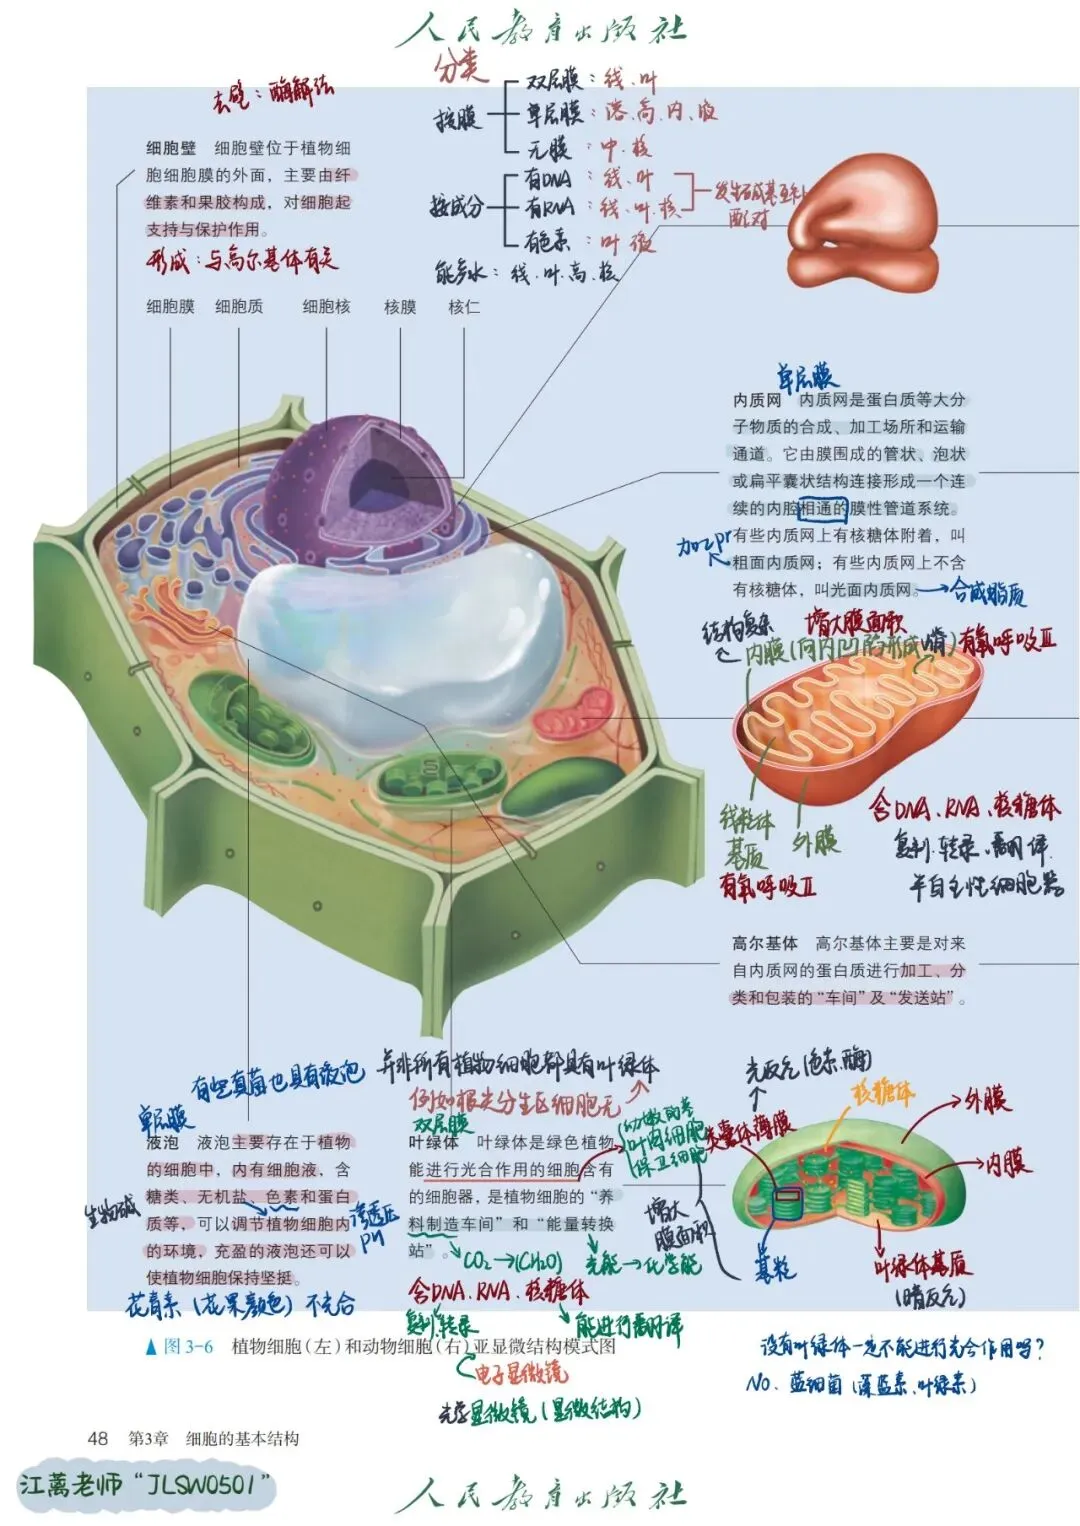
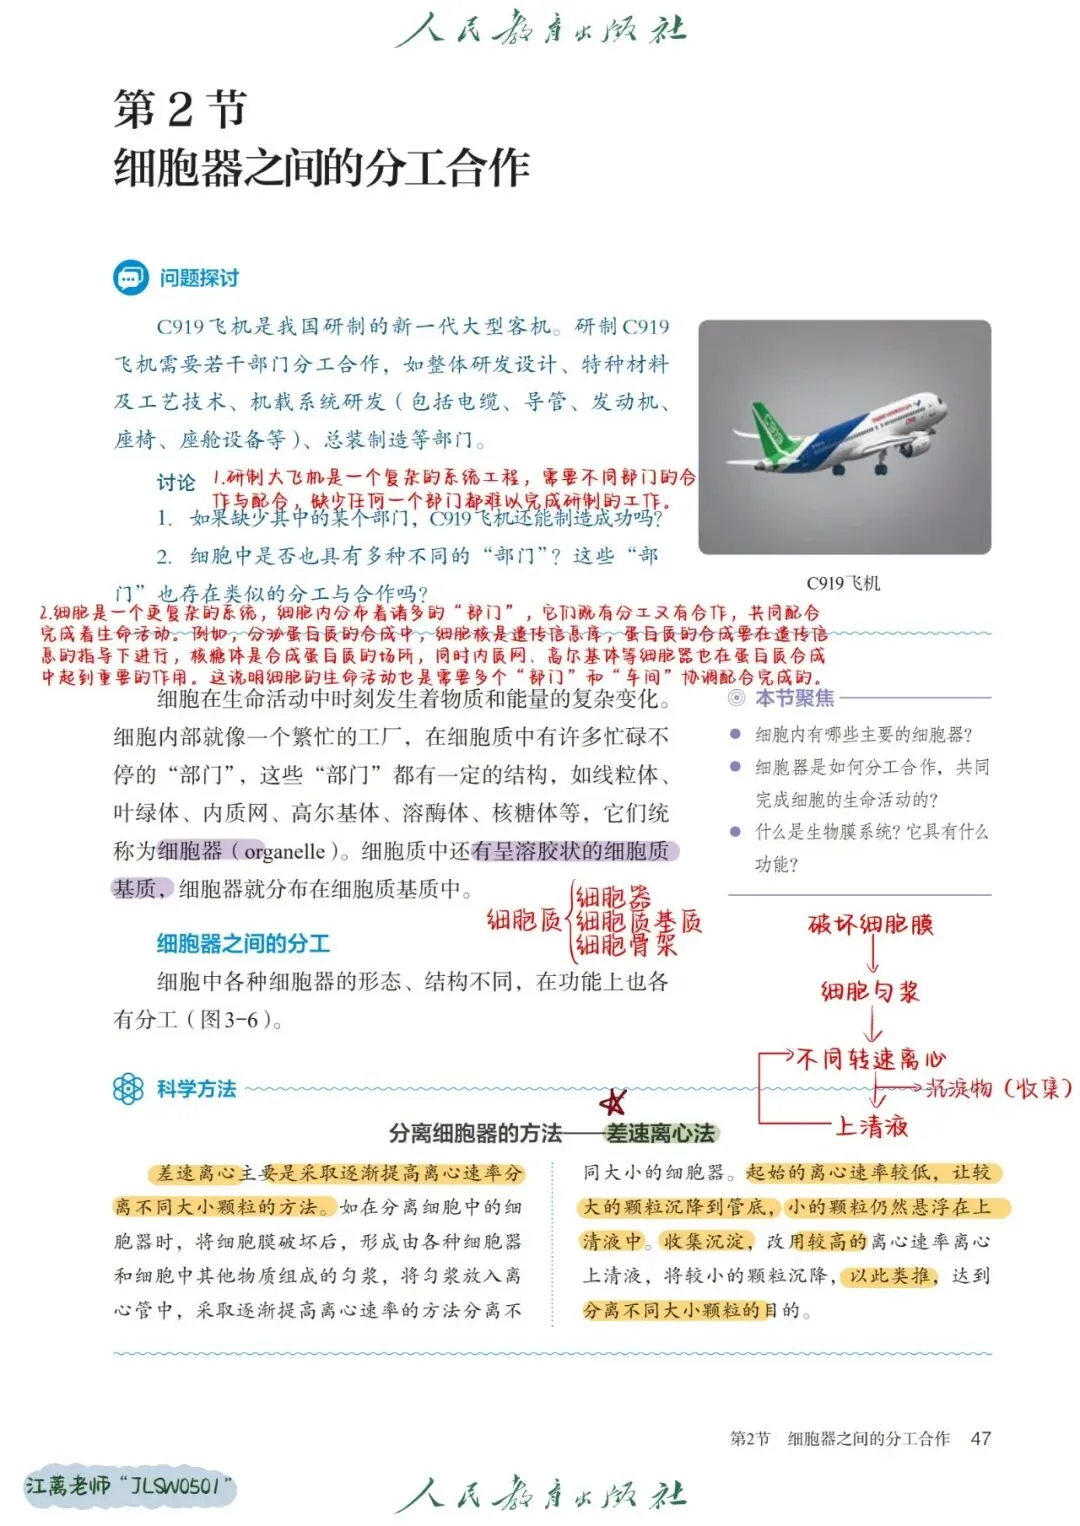
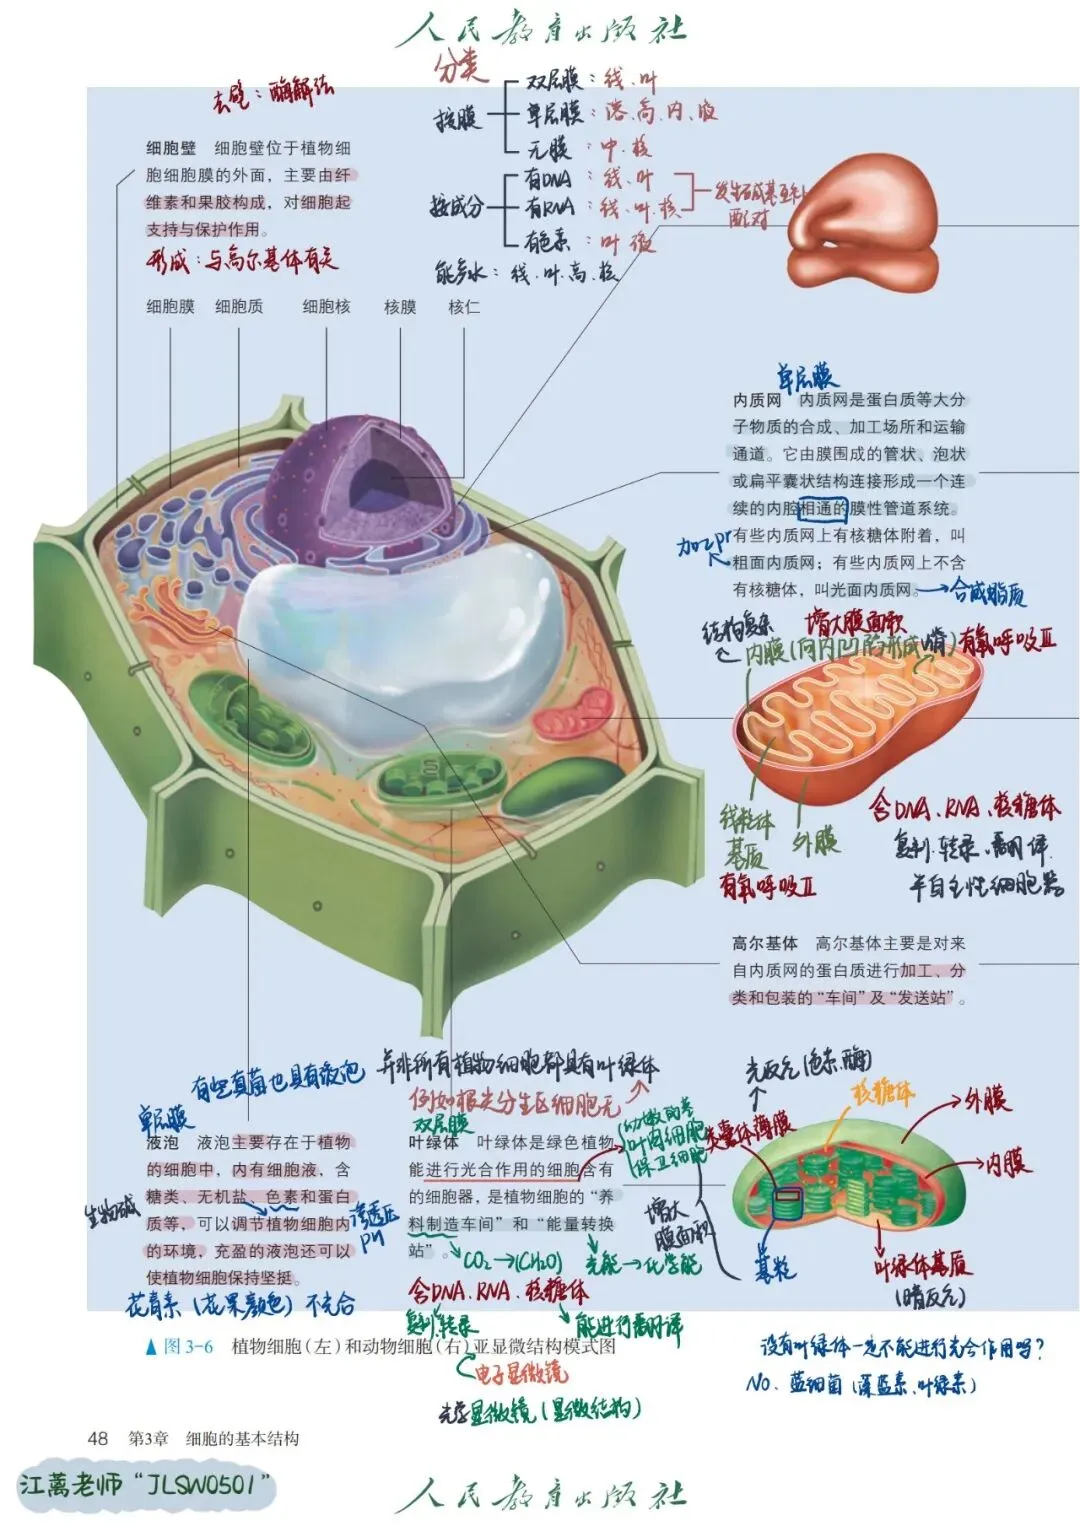
溶酶体(lysosome)是真核细胞中单层膜包被的囊泡状细胞器,内含60余种酸性水解酶,专司分解各种外源和内源的大分子物质。它被形象地称为“细胞内的胃”,也被称为“自杀袋”——因为一旦溶酶体膜破裂,水解酶逸出,细胞就会自我消化。
我们先从一个故事讲起。这个故事的主人公叫克里斯蒂安·德迪夫,比利时人。1955年,德迪夫在研究大鼠肝细胞时,用离心机把细胞匀浆分成不同组分,检测各组分中酸性磷酸酶的活性。他发现了一个奇怪的现象:新鲜制备的匀浆中,酸性磷酸酶活性很低;但如果把匀浆反复冻融或用搅拌器剧烈处理,酶活性会突然大幅升高。德迪夫敏锐地意识到:这些酶一定被一层膜包裹着。膜完整时,酶被“关”在里面,底物进不去;膜被破坏后,酶被释放出来,活性才显现。他由此推断细胞内存在一种含酸性水解酶的膜包被细胞器,并将其命名为“溶酶体”。1956年,德迪夫与亚历克斯·诺维科夫合作,首次在电子显微镜下拍摄到了溶酶体的图像。德迪夫因这一发现获得了1974年诺贝尔生理学或医学奖。
二、溶酶体的基本结构
溶酶体的结构可以用三个关键词概括:单层膜、酸性腔、水解酶。
溶酶体是一层单位膜包裹的囊泡,直径差异很大,一般0.2~0.8微米,不同细胞类型甚至同一细胞的不同功能状态下,溶酶体的形态和大小都有明显差异。在电子显微镜下,典型的溶酶体呈圆形或椭圆形,内部基质均一或含有不同致密程度的物质。
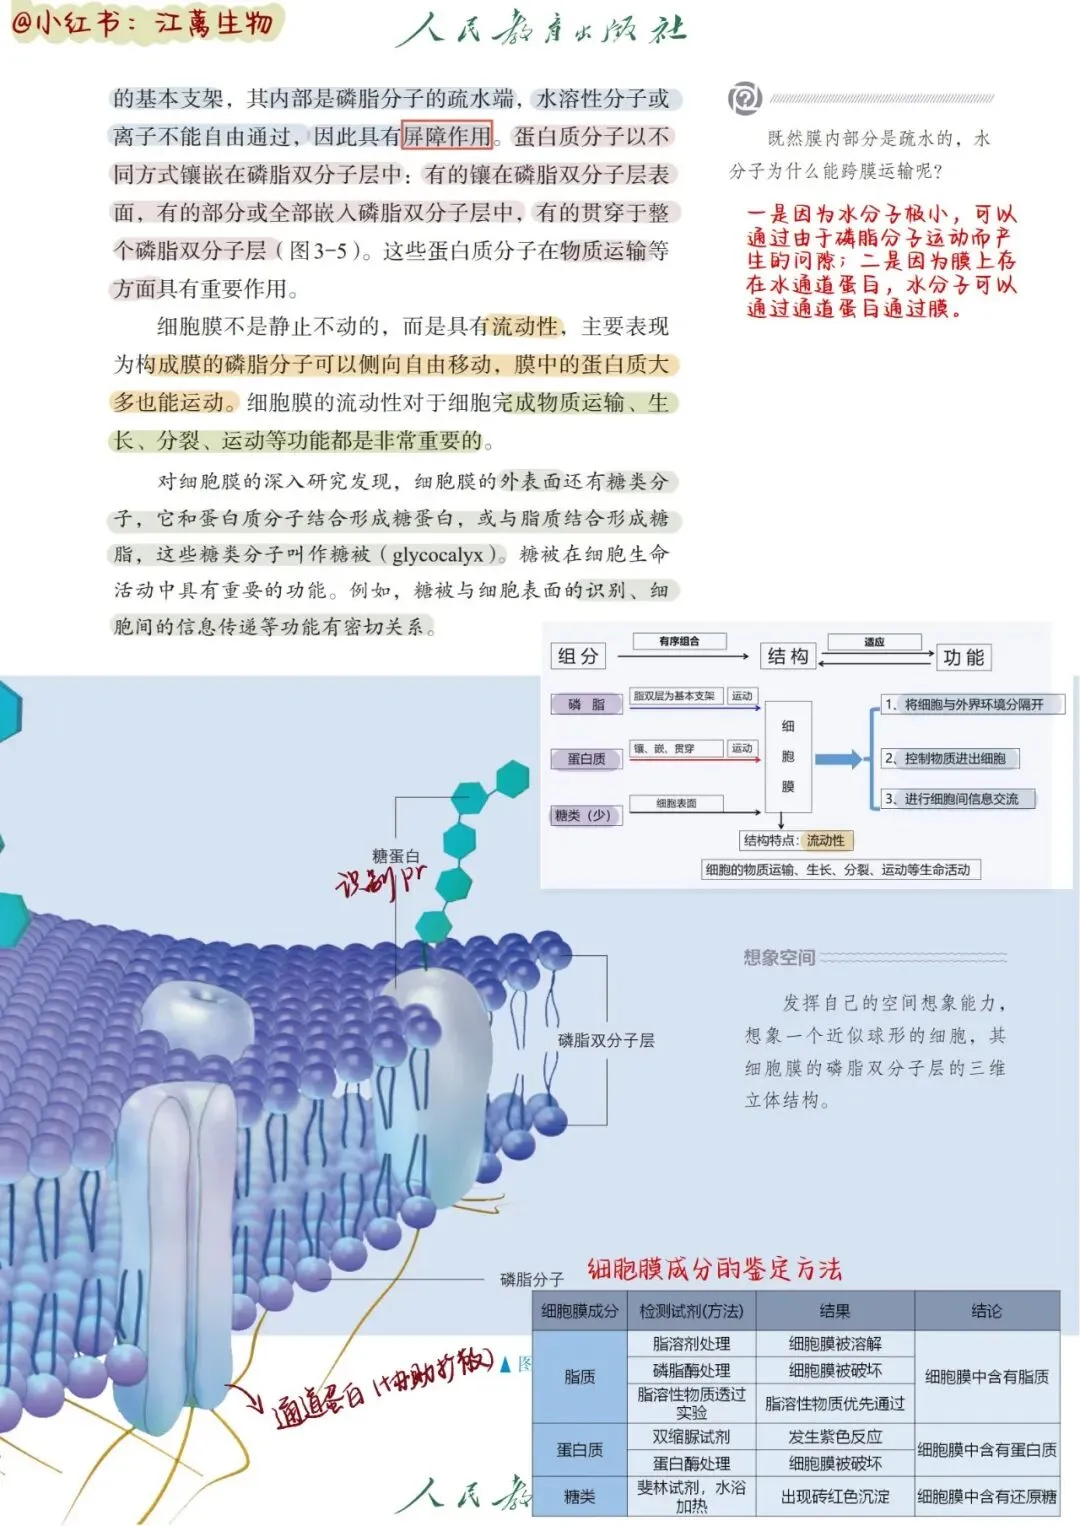
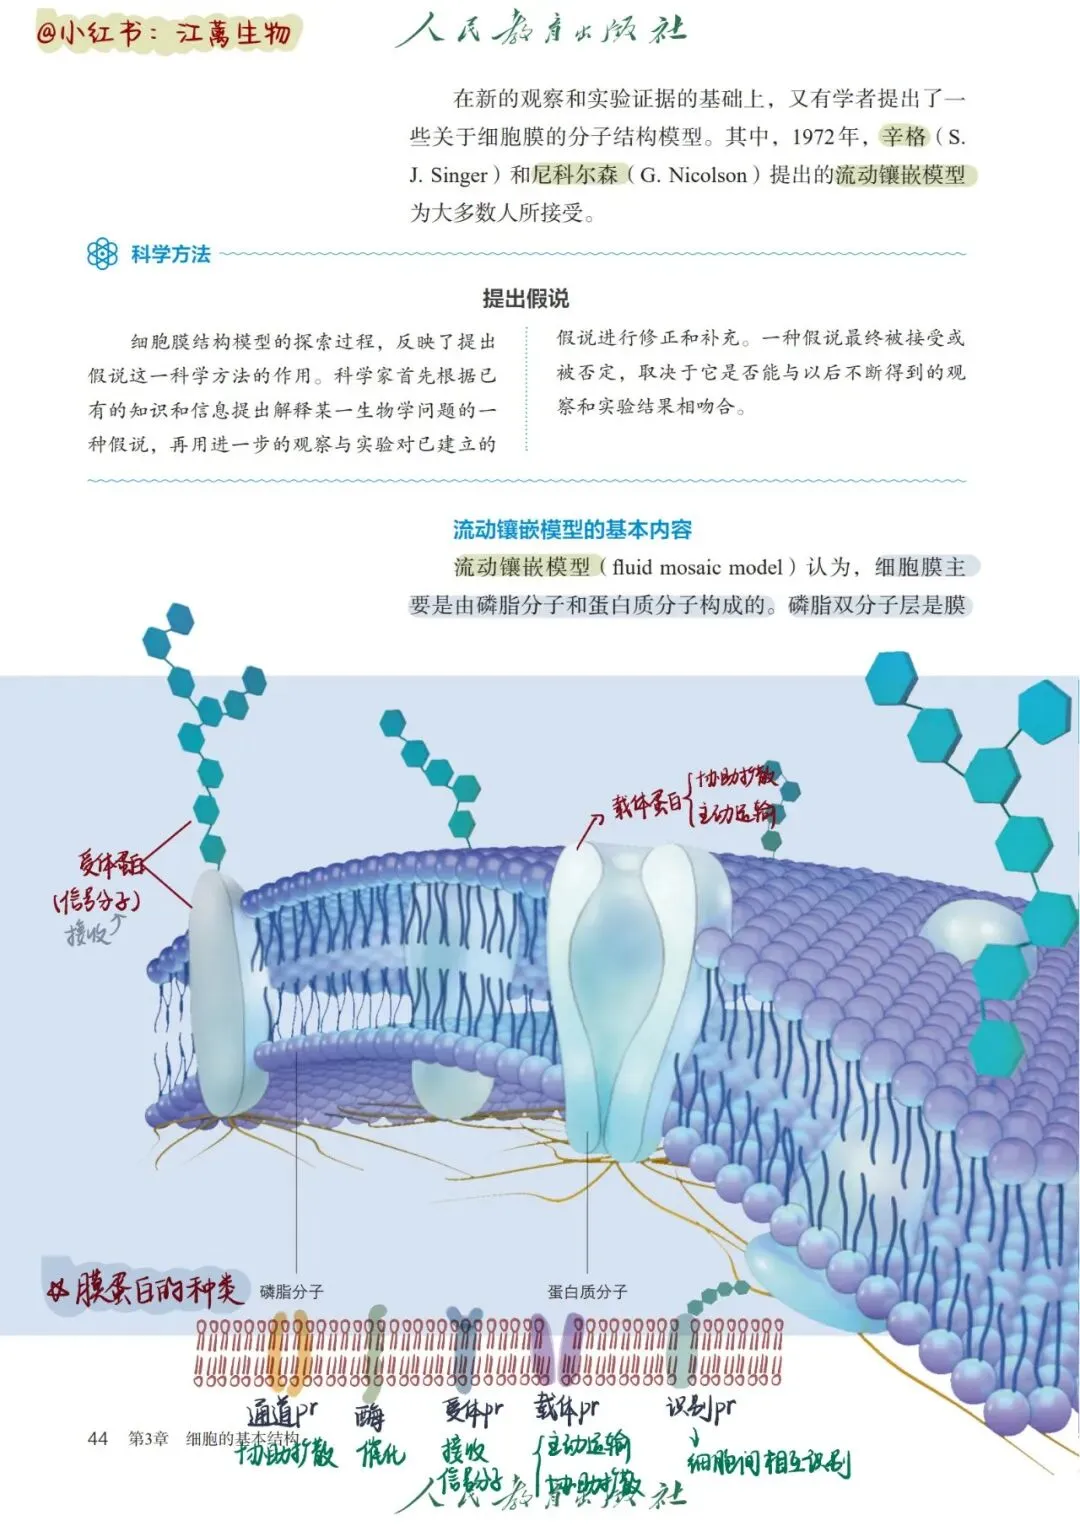
溶酶体膜有一个非常精妙的设计:膜蛋白高度糖基化。膜内表面的糖链就像一层“糖衣”,保护膜蛋白不被腔内的水解酶降解。同时,膜上嵌有质子泵(V-ATPase),利用ATP水解的能量将细胞质基质中的H⁺泵入溶酶体腔,维持腔内酸性环境。膜上还有多种载体蛋白,负责将水解产物运出溶酶体,供细胞再利用。
三、溶酶体酶:一套精密的“消化工具箱”
3.1酶的种类
溶酶体内已知含有60余种酸性水解酶,包括蛋白酶、核酸酶、磷酸酶、糖苷酶、脂肪酶、磷脂酶和硫酸酯酶等。这些酶几乎能分解所有类型的生物大分子——蛋白质、核酸、多糖、脂质,以及糖蛋白、糖脂等复合分子。溶酶体的标志酶是酸性磷酸酶,实验中鉴定溶酶体时常用它作为检测指标。
3.2为什么溶酶体酶的最适pH是5?胞质pH是7.2,这个差异意味着什么?
这是同学们最容易困惑的问题之一。
溶酶体腔内pH约为5,呈酸性;而细胞质基质pH约为7.2,呈中性偏碱。溶酶体内水解酶的最适pH在3.5~5.5之间,在pH5左右活性最佳。
这个pH差异有双重意义。第一,它是酶活性调控的开关。水解酶在合成和运输过程中,经过的是内质网腔(pH约7.2)和高尔基体腔(pH逐渐降低),在这些偏中性的环境中,酶的前体形式活性很低或不具活性。只有当酶被运送到溶酶体腔内,处于酸性环境中时,酶前体才被切割激活,获得完全的水解活性。第二,它是细胞的安全保障。万一溶酶体膜破损,少量水解酶泄漏到细胞质中,胞质的中性pH会大大抑制这些酶的活性,从而减轻对细胞的损伤。
那么,这个pH梯度是如何维持的?溶酶体膜上的V-ATPase质子泵持续将H⁺泵入腔内,对抗H⁺的泄漏,使腔内pH稳定在5左右。近年来的研究进一步揭示,V-ATPase不仅是简单的质子泵,还是溶酶体应激响应的传感器——当溶酶体受损导致酸化不足时,V-ATPase会发生构象变化,招募下游信号蛋白启动修复反应。
四、溶酶体酶从哪里来?——内质网、高尔基体与M6P分选
这是一个高频考点,也是理解溶酶体生物发生的关键。
溶酶体水解酶的本质是蛋白质,因此它们的合成路线与分泌蛋白高度相似但终点不同。具体步骤如下:
第一步:在粗面内质网上合成。溶酶体水解酶的mRNA在附着于粗面内质网的核糖体上翻译,新生肽链N端带有信号肽,通过共翻译转运进入内质网腔。在内质网腔中,酶蛋白进行N-连接糖基化修饰,带上含有甘露糖残基的寡糖链。
第二步:进入高尔基体,打上“邮政编码”。酶蛋白从内质网转运到高尔基体。在高尔基体的顺面膜囊中,N-乙酰葡糖胺磷酸转移酶识别溶酶体水解酶特有的“信号斑”(三维结构特征),将N-乙酰葡糖胺磷酸转移到甘露糖残基上。随后在中间膜囊中,N-乙酰葡萄糖苷酶切去N-乙酰葡糖胺,暴露出甘露糖-6-磷酸(M6P)标签。
第三步:在反面高尔基网络被分选包装。M6P标签被反面高尔基网络上的M6P受体识别并结合,携带水解酶的囊泡从反面高尔基网络出芽,运送到内体,最终形成溶酶体。到达酸性环境后,酶与受体解离,受体回收返回高尔基体循环使用。
总结一句话:内质网负责“合成和初步糖基化”,高尔基体负责“打标签和分选发货”,M6P就是溶酶体酶的“邮政编码”。
五、溶酶体的分类
根据功能状态和形成阶段,溶酶体可以分为三种基本类型:
初级溶酶体,又称前溶酶体,是刚从反面高尔基网络出芽形成的囊泡,仅含水解酶,尚无作用底物,酶处于非活性状态。
次级溶酶体,又称消化泡,是初级溶酶体与吞噬体或自噬体融合后形成的,含有水解酶、作用底物及消化产物,酶处于活跃的消化状态。
残体,又称三级溶酶体,是次级溶酶体完成消化后残留的未消化物质。在变形虫等细胞中,残体可被排出细胞外;在其他细胞中则长期留存,与细胞衰老相关。
六、溶酶体的功能
6.1细胞内消化
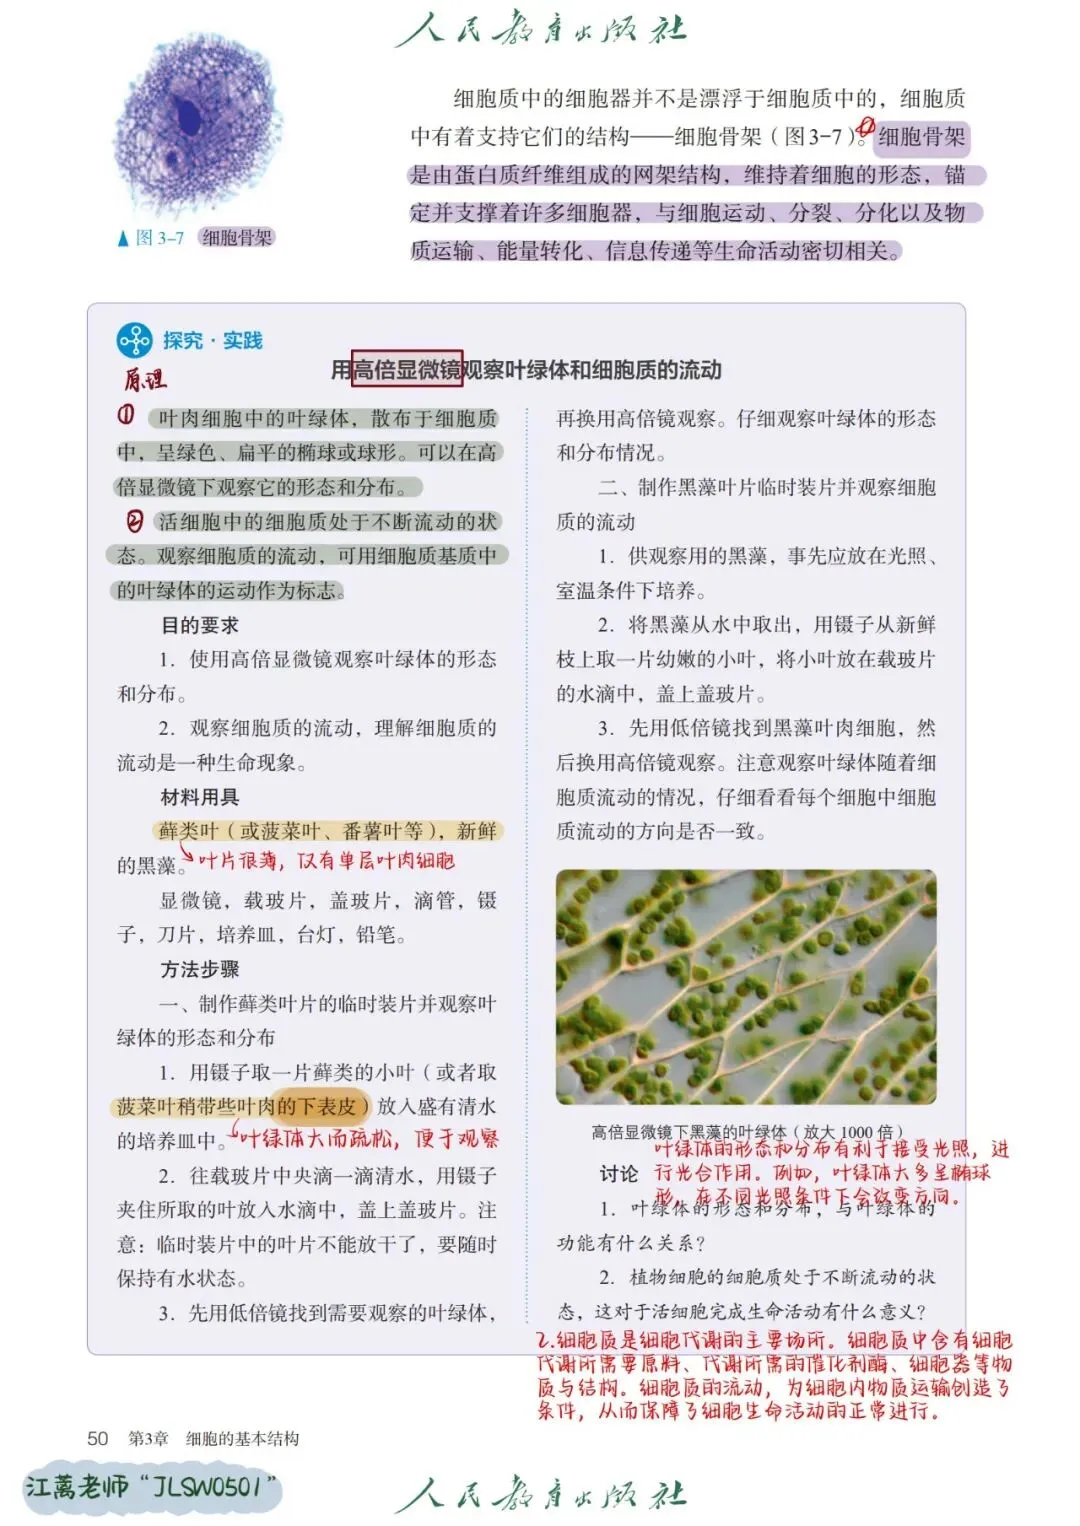
这是溶酶体最基本的功能。溶酶体通过异噬作用消化细胞从外界吞入的物质(如细菌、病毒、食物颗粒),通过自噬作用消化细胞自身衰老的细胞器和生物大分子。
6.2自噬与细胞凋亡
自噬是细胞在饥饿、应激等条件下,将自身细胞质成分包裹进双层膜的自噬体中,与溶酶体融合后进行降解的过程。溶酶体是自噬途径的“终点站”。近年来的研究揭示了溶酶体损伤响应机制——当溶酶体膜受损时,细胞启动溶酶体自噬,用自噬机制选择性地清除破损的溶酶体,维持溶酶体质量。
溶酶体也参与细胞凋亡。在凋亡过程中,溶酶体膜通透性增加,组织蛋白酶等水解酶泄漏到细胞质中,可以触发或放大凋亡信号。
6.3防御作用
溶酶体是细胞防御的重要武器。巨噬细胞吞噬细菌后,吞噬体与溶酶体融合,水解酶将细菌杀灭并降解。溶酶体功能障碍会显著削弱机体的免疫防御能力。
6.4参与分泌调节与顶体形成
溶酶体还参与某些分泌过程的调节。最典型的例子是精子顶体——顶体本质上是一个特化的溶酶体。精子顶体中含有大量水解酶,受精时释放这些酶,溶解卵细胞外围的放射冠和透明带,使精子得以与卵细胞膜融合,完成受精。
七、溶酶体酶异常与疾病
7.1矽肺
矽肺是溶酶体功能障碍导致疾病的经典案例。二氧化硅尘粒被肺泡巨噬细胞吞噬后,形成吞噬体并与溶酶体融合成为次级溶酶体。但二氧化硅无法被水解酶降解,且其表面羟基能与溶酶体膜的磷脂或蛋白形成氢键,破坏膜的稳定性,导致溶酶体膜破裂。水解酶和二氧化硅同时泄漏到细胞质中,一方面消化细胞自身,另一方面刺激成纤维细胞增殖,导致胶原纤维大量沉积,肺组织纤维化。近年来的分子研究进一步揭示,二氧化硅引起的溶酶体膜通透性增加还激活了NLRP3炎症小体,释放炎症细胞因子,加重肺组织损伤。
7.2肺结核
结核分枝杆菌是一种典型的胞内寄生菌。它被巨噬细胞吞噬后,能够阻止吞噬体与溶酶体的融合,从而避免被溶酶体中的水解酶降解。结核杆菌在吞噬体中长期存活并繁殖,导致结核病的发生和迁延不愈。研究还发现,结核杆菌能够操控宿主内体-溶酶体酶的活性,改变溶酶体系统的组织与功能,为自身存活创造有利条件。
7.3溶酶体贮积症
溶酶体贮积症是一大类遗传性疾病,其根本原因是溶酶体水解酶基因突变导致某种酶活性缺失或不足,使得对应的底物无法被降解,在溶酶体中大量堆积,最终导致细胞功能障碍。这类疾病已知有60多种,总体发病率约为1/5000~1/2000。最经典的是庞贝病——溶酶体α-葡萄糖苷酶缺陷导致糖原在溶酶体中堆积,引起心肌和骨骼肌损伤。其他还包括戈谢病、泰-萨克斯病、尼曼-匹克病等。
八、常见误区澄清
误区一:“溶酶体酶在溶酶体内合成。”错误。溶酶体酶在粗面内质网上的核糖体合成,经高尔基体加工分选后运入溶酶体。
误区二:“溶酶体酶在合成时就有活性。”错误。酶在合成和运输过程中处于前体状态,只有在溶酶体酸性环境中才被激活。
误区三:“溶酶体只是细胞的‘垃圾桶’。”不准确。溶酶体不仅是降解中心,还是细胞信号转导的平台、代谢调控的枢纽,参与自噬、凋亡、免疫防御等多种生理过程。
误区四:“pH5只是偶然的。”不。pH5是溶酶体功能的必要条件:既保证了水解酶的最佳活性,又构成了细胞的安全保障机制。
九、附录:参考文献
1.deDuve,C.,Pressman,B.C.,Gianetto,R.,Wattiaux,R.,&Appelmans,F.(1955).Tissuefractionationstudies.6.Intracellulardistributionpatternsofenzymesinrat-livertissue.BiochemicalJournal,60(4),604-617.
2.Novikoff,A.B.,Beaufay,H.,&deDuve,C.(1956).Electronmicroscopyoflysosome-richfractionsfromratliver.JournalofBiophysicalandBiochemicalCytology,2(4),179-184.
3.deDuve,C.,&Wattiaux,R.(1966).Functionsoflysosomes.AnnualReviewofPhysiology,28,435-492.
4.Alberts,B.,etal.(2022).MolecularBiologyoftheCell(7thed.).W.W.Norton&Company.Chapter13:IntracellularMembraneTraffic.
5.Settembre,C.,&Perera,R.M.(2024).Lysosomesascoordinatorsofcellularcatabolism,metabolicsignallingandorganphysiology.NatureReviewsMolecularCellBiology,25(3),223-245.
6.Meyer,H.,&Kravic,B.(2024).TheEndo-LysosomalDamageResponse.AnnualReviewofBiochemistry,93(1),367-387.
7.Hornung,V.,etal.(2008).SilicacrystalsandaluminumsaltsmediateNALP-3inflammasomeactivationviaphagosomaldestabilization.NatureImmunology,9(8),847-856.
8.vanderWel,N.,etal.(2007).M.tuberculosisandM.lepraetranslocatefromthephagolysosometothecytosolinmyeloidcells.Cell,129(7),1287-1298.
9.Platt,F.M.,d‘Azzo,A.,Davidson,B.L.,Neufeld,E.F.,&Tifft,C.J.(2018).Lysosomalstoragediseases.NatureReviewsDiseasePrimers,4,27.
10.Saftig,P.,&Klumperman,J.(2009).Lysosomebiogenesisandlysosomalmembraneproteins:traffickingmeetsfunction.NatureReviewsMolecularCellBiology,10(9),623-635.