ARTICLE · 1126996
分泌蛋白的合成、加工与运输——高中生物疑难问题深度讲稿
分泌蛋白的合成、加工与运输——高中生物疑难问题深度讲稿
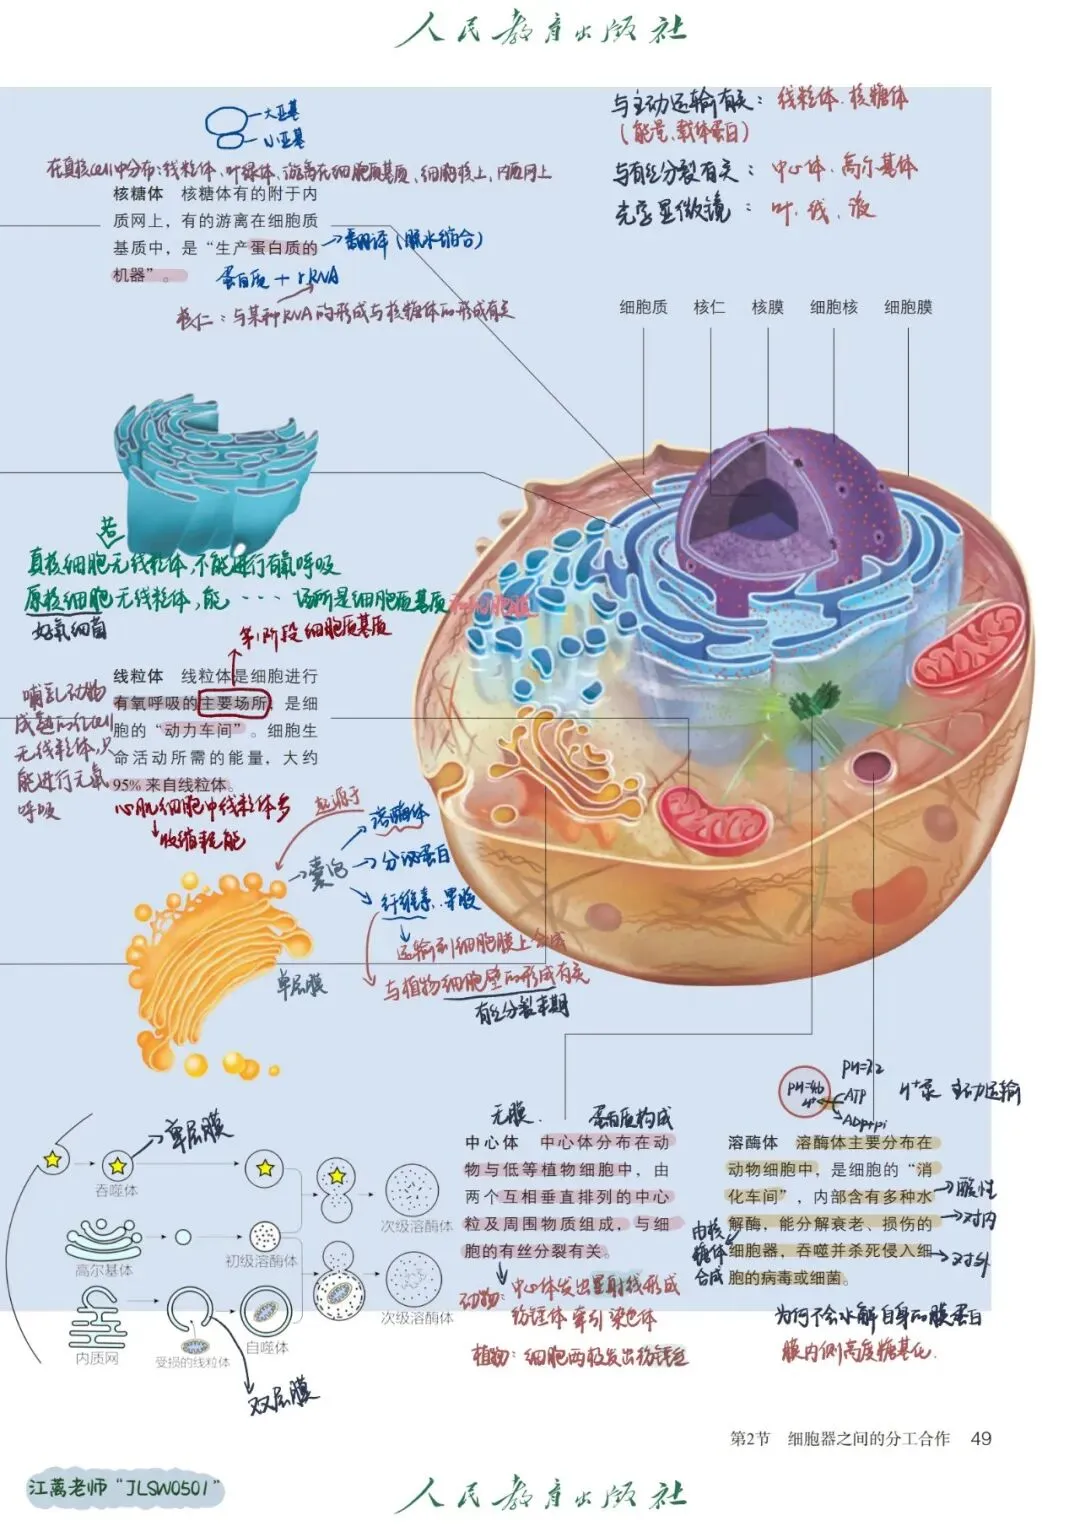
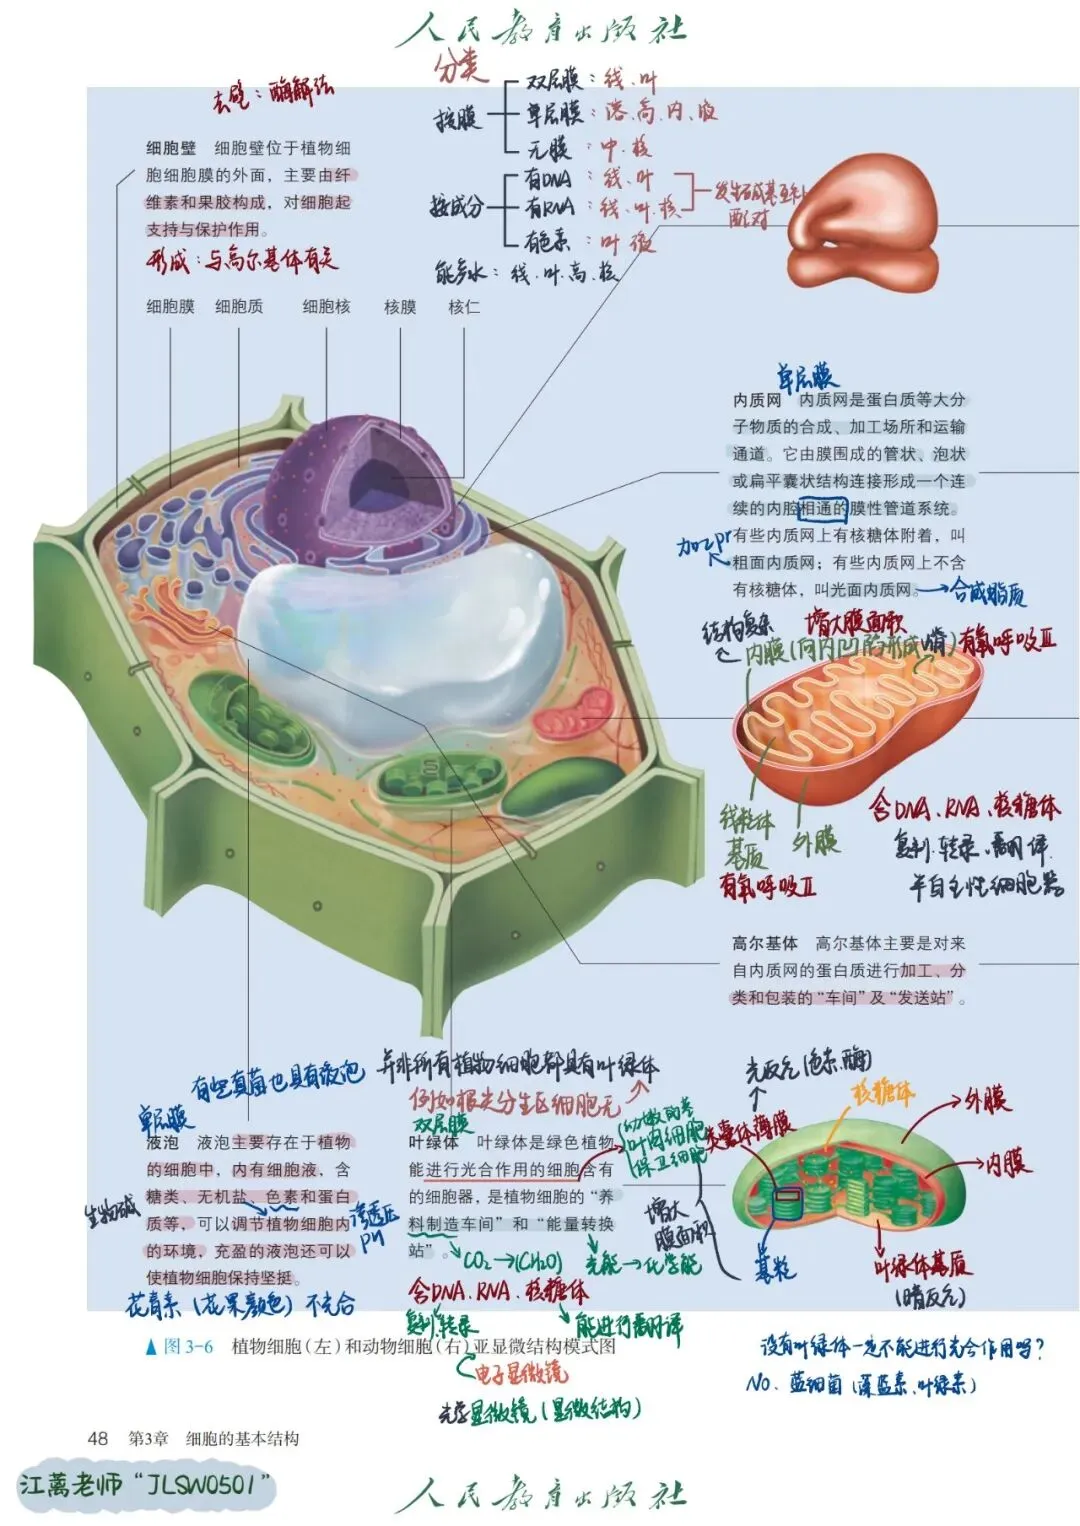
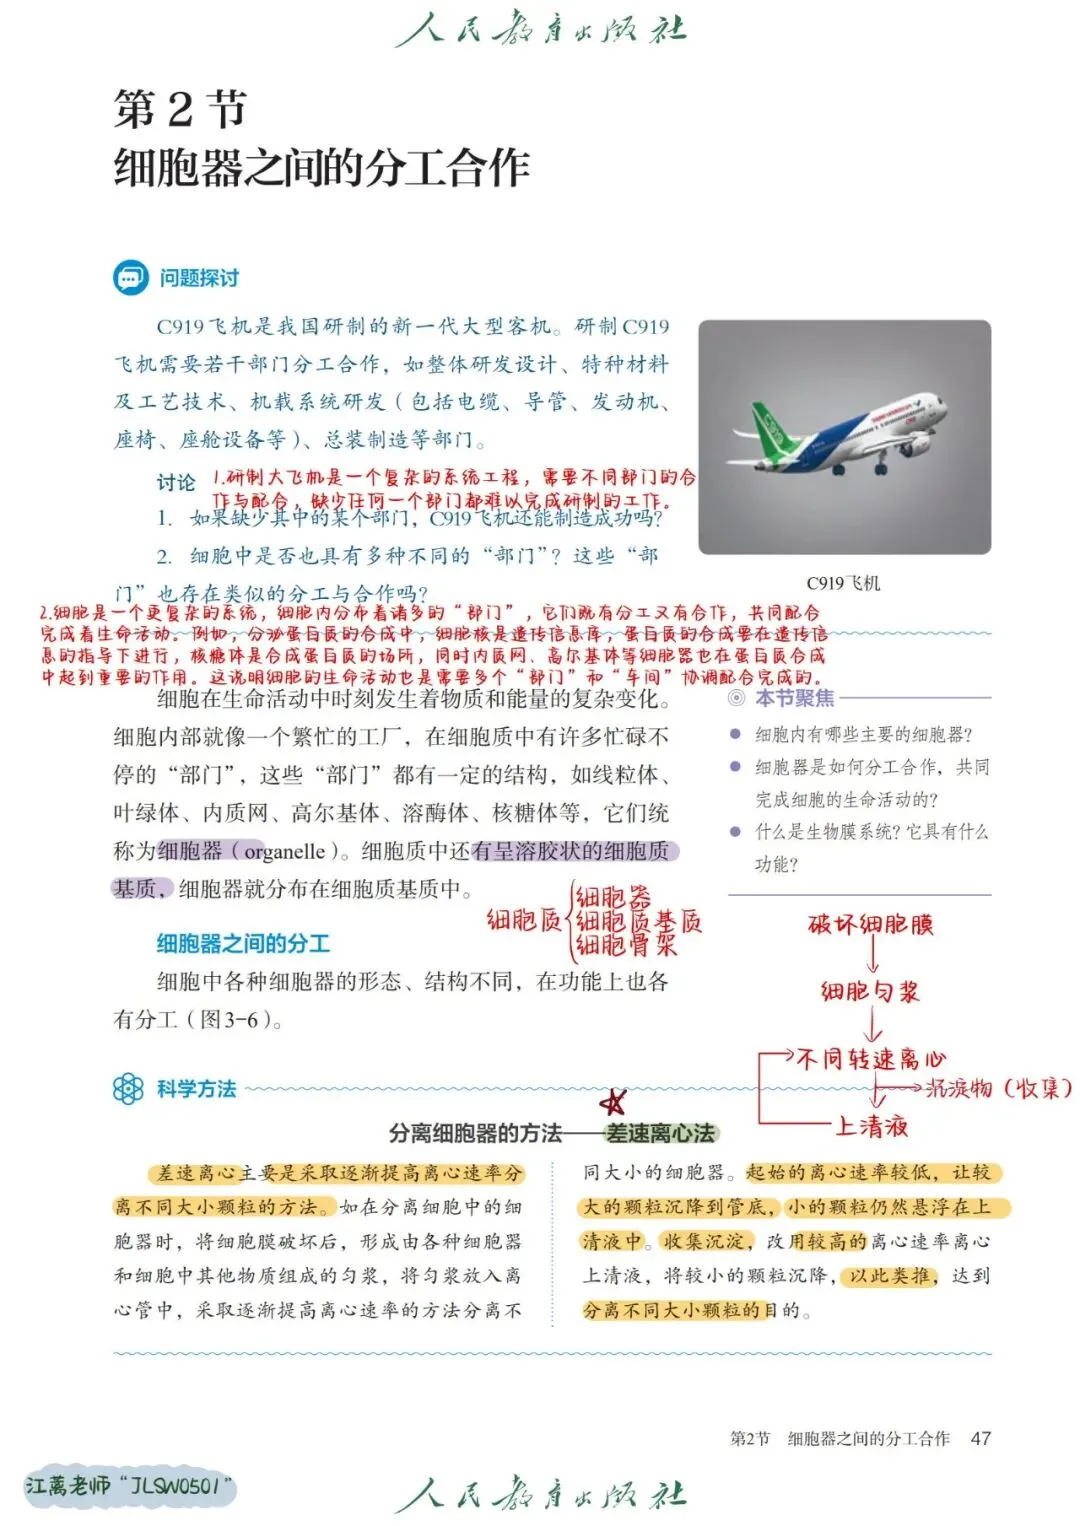
一、开篇:一个贯穿细胞生物学的核心问题
各位同学,在高中生物的学习中,“分泌蛋白的合成与运输”是一个反复出现、又容易出错的考点。很多同学会有这样的困惑:分泌蛋白到底是在游离核糖体上合成的,还是附着在内质网上的核糖体上合成的?信号肽是什么东西?粗面内质网和滑面内质网有什么区别?高尔基体又在里面扮演什么角色?
今天,我们把这些问题一个一个拆开,用分子细胞生物学的理论来重新审视这条经典的“分泌途径”。
二、什么是分泌蛋白?
分泌蛋白是指由细胞合成后,不留在细胞内部,而是通过胞吐作用分泌到细胞外行使功能的蛋白质。典型的例子包括:消化酶(如胃蛋白酶原、胰蛋白酶原)、激素(如胰岛素)、血浆蛋白(如白蛋白)、抗体(免疫球蛋白)等。这些蛋白质的共同特点是:合成后需要经过一系列膜性细胞器的加工和包装,最终以囊泡形式与细胞膜融合,释放到细胞外。
与分泌蛋白相对的,是留在细胞质基质中发挥功能的蛋白质(如葡萄糖激酶、各种代谢酶),以及定位到细胞核、线粒体等特定部位的蛋白质。它们走的是一条完全不同的“路线”。
三、分泌蛋白在什么核糖体上合成?——一个关键的概念辨析
这是最核心的疑难问题。
结论先行:分泌蛋白的合成起始于游离核糖体,随后在信号肽的引导下,核糖体附着到粗面内质网膜上继续合成。也就是说,两种核糖体都参与了,但分工不同。
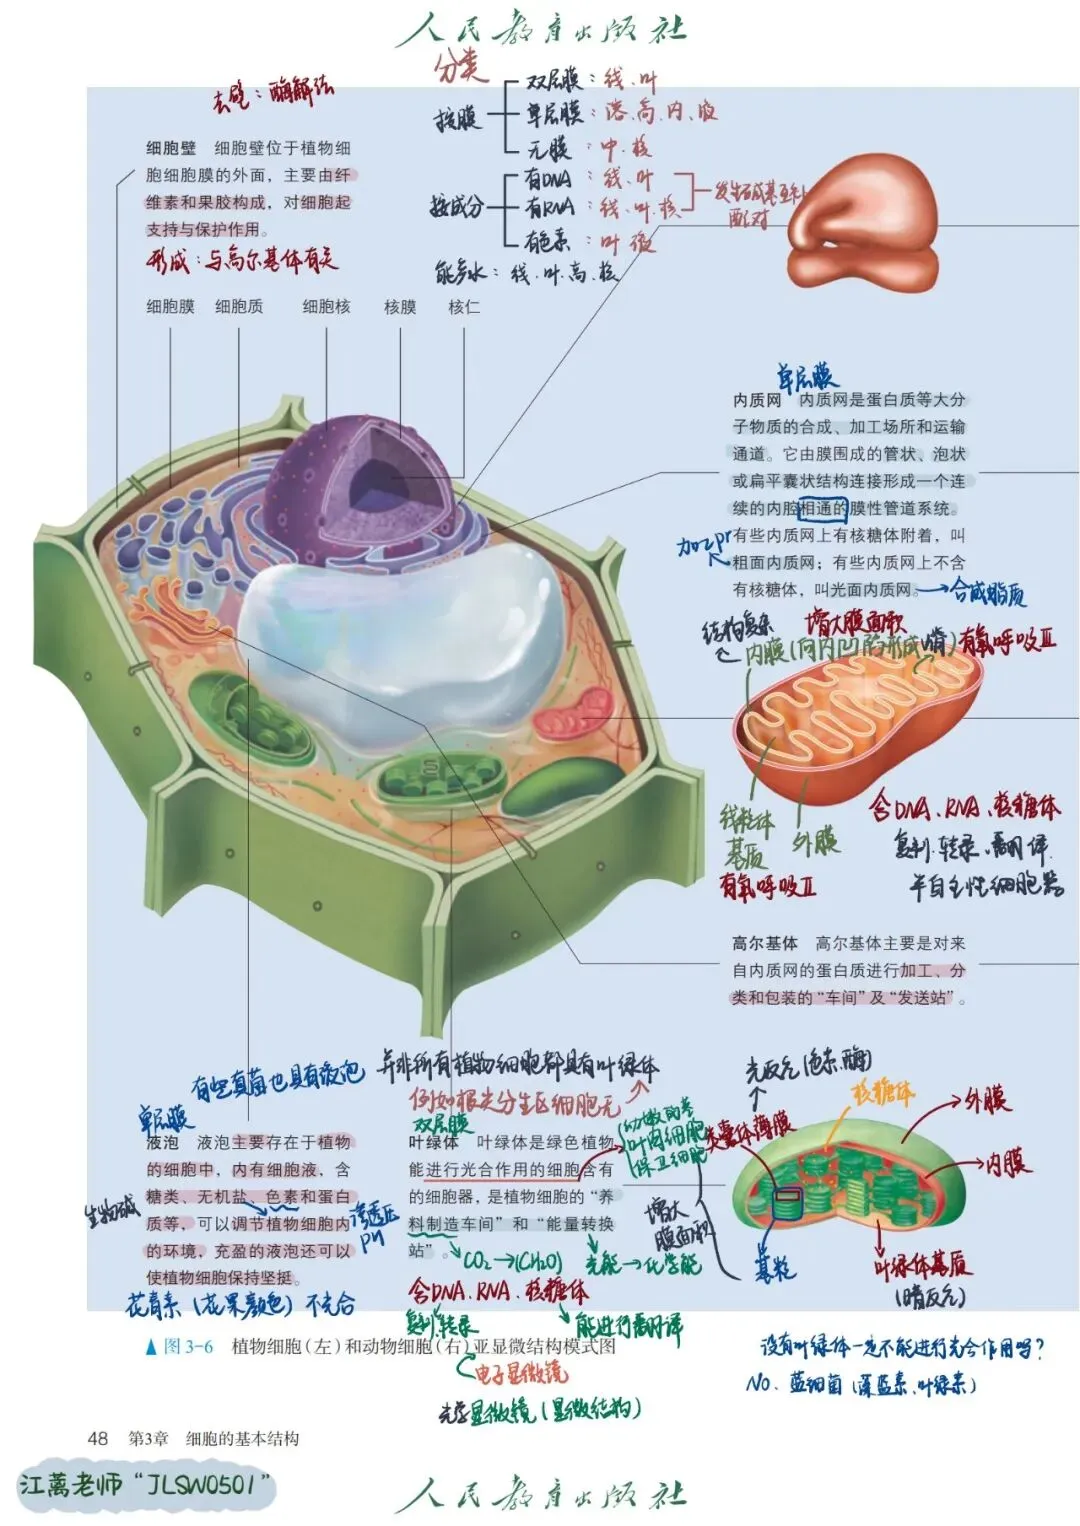
具体来说,细胞质中的核糖体有两种存在状态:一是游离在细胞质基质中的游离核糖体,二是附着在粗面内质网膜上的附着核糖体。但这两种核糖体在化学组成上并没有本质区别,它们是同一类核糖体,只是“在什么位置工作”不同。
实验证据表明,附着核糖体主要合成分泌蛋白和膜蛋白,而游离核糖体主要合成细胞质基质蛋白、核基因编码的线粒体蛋白等。但这并不意味着两类核糖体是“专款专用”的——核糖体本身对mRNA并没有选择性,关键在于mRNA所编码的蛋白质N端是否含有信号肽。如果游离核糖体上开始合成的肽链出现了信号肽,核糖体就会在信号识别颗粒的引导下附着到内质网上;如果合成的肽链没有信号肽,核糖体就留在细胞质基质中完成翻译。
所以,高中课本中“分泌蛋白在附着核糖体上合成”的说法,严格来说是不完整的。更准确的表述是:分泌蛋白的翻译起始于游离核糖体,在信号肽的引导下转移到粗面内质网上完成后续合成。
四、粗面内质网与滑面内质网的区别
内质网是细胞中最大的膜性细胞器,分为两个区域:
粗面内质网,因表面附着大量核糖体而呈现粗糙的外观。它的核心功能是分泌蛋白和膜蛋白的合成、折叠与初步修饰。新生肽链通过共翻译转运进入粗面内质网腔后,在这里完成折叠、二硫键形成、N-连接糖基化的起始步骤等一系列加工。
滑面内质网,表面没有核糖体附着,形态上更接近管状网络。它的功能包括脂质和类固醇的合成、肝细胞中的解毒反应、以及钙离子的储存(在肌细胞中特化为肌质网)。
值得注意的是,粗面内质网和滑面内质网在膜系统上是连续的,但在功能和结构上高度分化。不同类型细胞中两者的比例差异很大——例如,分泌功能旺盛的胰腺腺泡细胞中粗面内质网极为发达,而肝细胞中滑面内质网相对丰富。
五、信号肽与信号肽假说——分子层面的核心机制
5.1什么是信号肽?
信号肽是分泌蛋白mRNA翻译产物N端的一段短肽序列,通常由15~30个氨基酸组成,富含疏水性氨基酸残基。这段序列的功能就像一个“邮政编码”,指引核糖体-新生肽链复合体前往内质网膜。信号肽在蛋白质进入内质网腔后会被信号肽酶切除,因此成熟分泌蛋白中不含信号肽。
5.2共翻译转运的分子步骤
第一步:信号肽的暴露与SRP的识别。当游离核糖体开始翻译分泌蛋白mRNA时,信号肽序列首先从核糖体的大亚基出口通道中伸出。此时,细胞质中的信号识别颗粒(SRP)——一种由7SRNA和六种蛋白质组成的核糖核蛋白复合体——识别并结合到信号肽的疏水区域,同时与核糖体结合。
第二步:翻译暂停与靶向内质网。SRP与信号肽结合后,会引起肽链延伸的暂时停滞(这一暂停由SRP的Alu结构域介导),防止新生肽链在到达内质网之前就折叠成错误构象。随后,SRP-核糖体-新生肽链复合体通过SRP与内质网膜上的SRP受体结合,将整个复合体锚定到内质网膜上。
第三步:Sec61易位子的介导与翻译恢复。核糖体被转移到内质网膜上的蛋白质传导通道——Sec61复合体(又称易位子)上。信号肽插入易位子通道,新生肽链得以穿过内质网膜进入内质网腔。与此同时,SRP与SRP受体解离(依赖GTP水解),翻译恢复继续进行。
第四步:信号肽的切除与蛋白质释放。当新生肽链的N端进入内质网腔后,内质网腔面的信号肽酶将信号肽切除。此后,蛋白质在内质网腔中继续完成折叠和修饰。
这里有一个重要的教学辨析点:高中习题中经常出现这样的设问——“若SRP活性丧失,分泌蛋白能否分泌?”答案是不能。因为信号肽无法被识别,新生肽链不能进入内质网进行加工,也就无法被运输到高尔基体和细胞外。
5.3信号肽假说的实验验证
科学家曾构建体外反应体系来验证信号肽假说,实验设计如下:仅含核糖体时,合成的肽链比正常肽链多一段(信号肽未被切除);核糖体加SRP但不加内质网时,合成的肽链比正常肽链少一段(SRP的结合导致延伸暂停);核糖体加SRP再加内质网时,合成的肽链与正常肽链一致(信号肽被正确切除)。这个实验优雅地证明了SRP、内质网和信号肽三者之间的功能关系。
六、内质网与高尔基体对蛋白质加工的差异
这是另一个高频疑难问题。很多同学以为“内质网加工”和“高尔基体加工”是一回事,其实两者在加工内容上有本质区别。
6.1内质网中的加工
内质网腔内完成的加工主要包括:
·蛋白质折叠:新生肽链在内质网腔中,在分子伴侣(如BiP、钙联蛋白、钙网蛋白)的协助下折叠成正确的空间构象。
·二硫键的形成:内质网腔是一个氧化性环境,蛋白质二硫键异构酶(PDI)催化半胱氨酸残基之间形成二硫键,这是维持蛋白质三级和四级结构的关键。
·N-连接糖基化的起始:一个由14个糖残基组成的核心寡糖(Glc₃Man₉GlcNAc₂)被整体转移到新生肽链的天冬酰胺残基上,这一步骤在内质网腔中完成。
·信号肽切除:如前所述。
6.2高尔基体中的加工
高尔基体由一系列扁平的膜囊(称为高尔基堆)组成,从顺面到反面分为顺面高尔基网络、中间高尔基堆和反面高尔基网络。蛋白质在高尔基体中的加工主要包括:
·N-连接糖链的进一步修剪与延伸:内质网中形成的糖蛋白进入高尔基体后,大部分甘露糖残基被切除,随后由多种糖基转移酶依次添加N-乙酰葡萄糖胺、半乳糖、唾液酸等,形成结构各异的复杂型寡糖链。
·O-连接糖基化:在高尔基体中,N-乙酰半乳糖胺被连接到蛋白质的丝氨酸或苏氨酸残基的羟基上,随后逐次延长形成O-连接寡糖链。
·蛋白质的分选与包装:反面高尔基网络是蛋白质分选的主要站点,分泌蛋白在这里被包装进分泌囊泡,运往细胞膜。
总结一句:内质网负责“折叠和初步修饰”,高尔基体负责“精加工和分选发货”。内质网是中央厨房,高尔基体是包装车间和物流中心。
七、什么是糖基化?糖蛋白在哪里合成?
7.1糖基化的定义
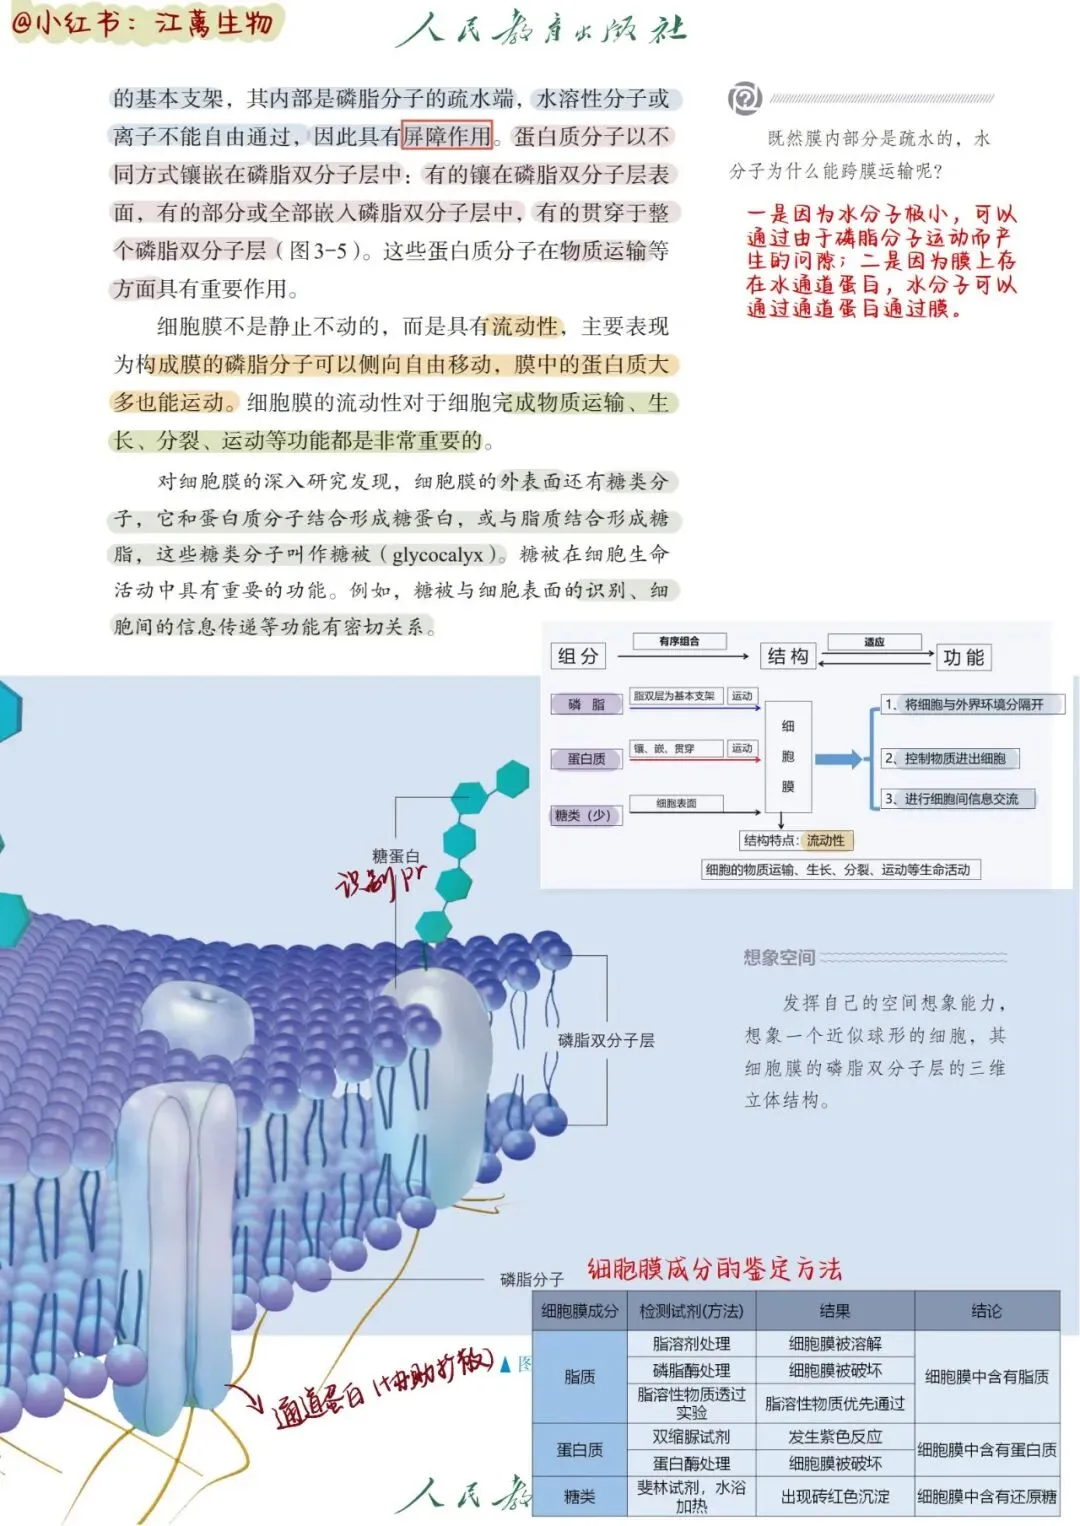
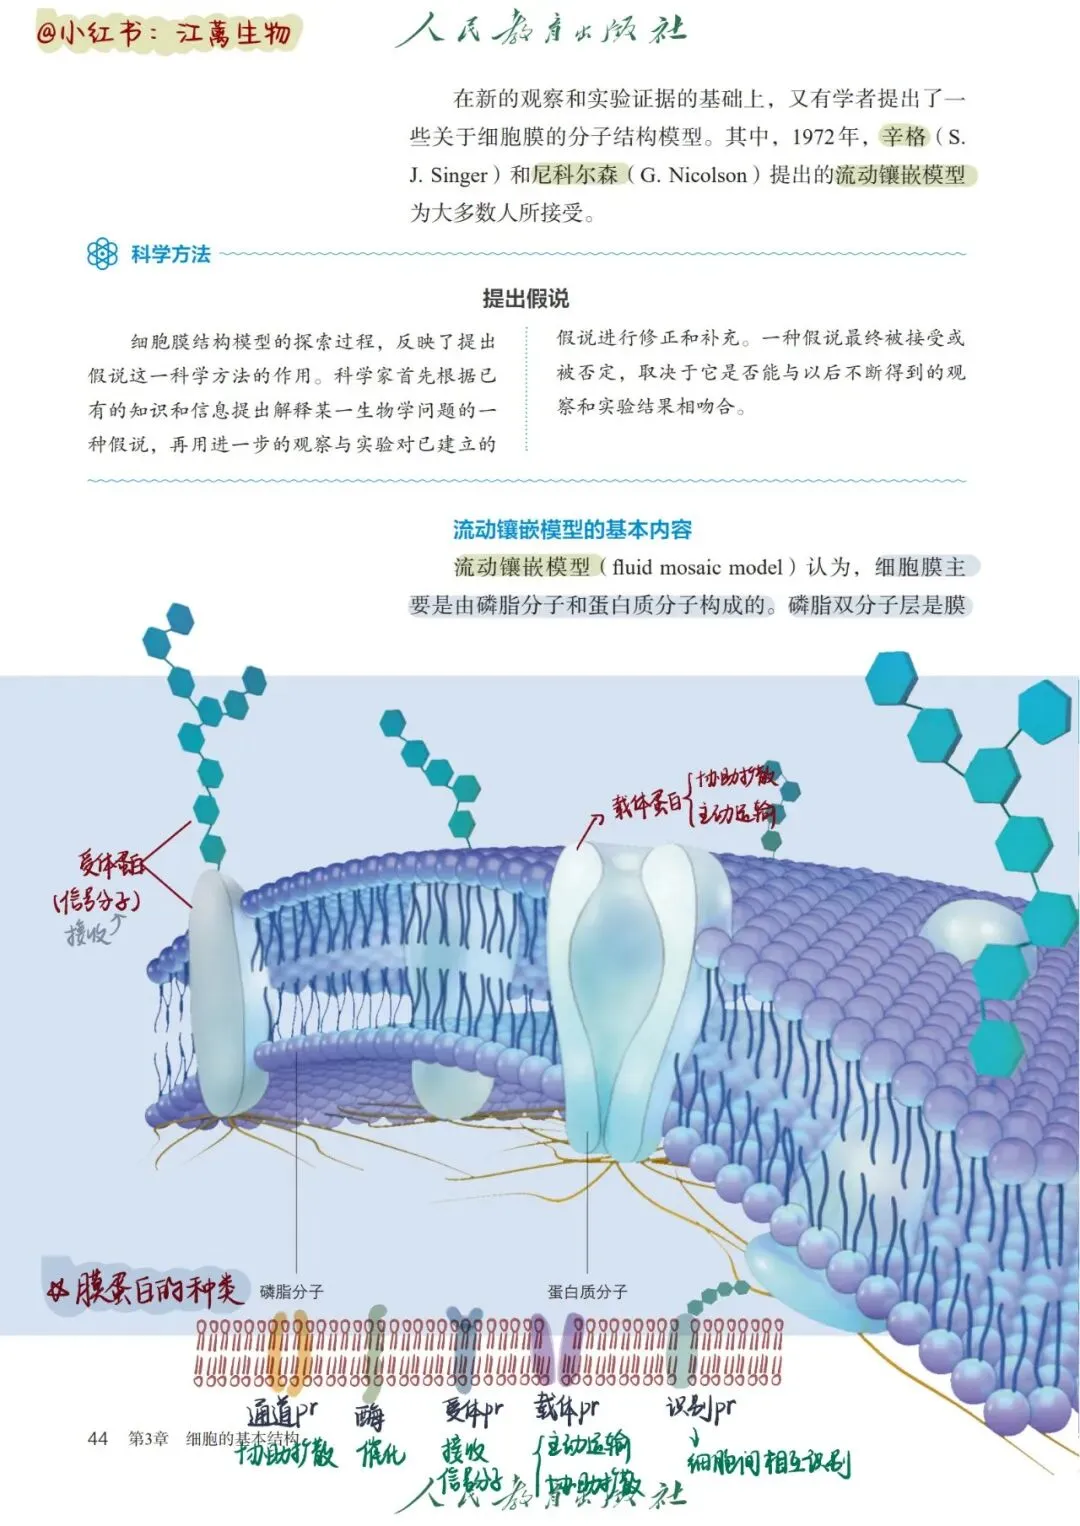
糖基化是指在糖基转移酶的作用下,将糖链共价连接到蛋白质特定氨基酸残基上的过程。它是蛋白质翻译后修饰中最常见、最重要的一种,约70%的人类蛋白质都含有糖链。
7.2两种主要的糖基化类型
N-连接糖基化:糖链连接到天冬酰胺(Asn)残基的酰胺氮原子上。起始于内质网(核心寡糖的添加),完成于高尔基体(糖链的修剪和延伸)。识别序列通常为Asn-X-Ser/Thr。
O-连接糖基化:糖链连接到丝氨酸(Ser)或苏氨酸(Thr)残基的羟基氧原子上。完全在高尔基体中进行,没有保守的识别序列。
7.3糖蛋白的合成场所
糖蛋白的合成是一个跨细胞器的协同过程:蛋白质部分在核糖体上合成,糖链部分在内质网和高尔基体中逐步添加和修饰。因此,糖蛋白的“合成”涉及核糖体、内质网和高尔基体三个主要的细胞器。
八、用分子细胞生物学理论综合分析
从分子细胞生物学的视角来看,分泌蛋白的合成与运输体现了真核细胞“区室化”的核心策略。
第一,信号肽系统实现了蛋白质的定向运输。信号肽与SRP的相互作用,本质上是一种“分子邮政编码”机制。SRP的Alu结构域暂停翻译,S结构域识别信号肽并介导与SRP受体的对接,这种双功能设计确保了只有携带正确信号序列的蛋白质才能被运送到内质网。近年来的结构生物学研究已经解析了SRP在多个功能状态下的三维结构,为这一过程提供了精确的分子图像。
第二,囊泡运输实现了区室间的物质传递。从内质网到高尔基体,分泌蛋白通过COPII包被囊泡进行顺向运输;而从高尔基体返回内质网的逃逸蛋白则通过COPI包被囊泡进行逆向运输。内质网腔中的驻留蛋白(如BiP)携带KDEL四肽信号,在高尔基体中被KDEL受体识别并回收,这保证了各区室的蛋白质组成稳定。
第三,质量控制贯穿始终。内质网通过未折叠蛋白反应和内质网相关降解机制,监测蛋白质的折叠状态。未正确折叠的蛋白质被逆向转运到细胞质中,经泛素-蛋白酶体途径降解。这种质量控制体系保证了只有正确折叠的蛋白质才能进入后续的运输途径。
九、常见误区澄清
误区一:“分泌蛋白在附着核糖体上合成。”正确表述:分泌蛋白的翻译起始于游离核糖体,在信号肽引导下转移到粗面内质网上完成合成。
误区二:“信号肽是蛋白质的一部分。”信号肽在蛋白质进入内质网腔后被切除,成熟分泌蛋白不含信号肽。
误区三:“高尔基体只是‘加工’蛋白质。”高尔基体不仅是加工场所,还是蛋白质分选和包装的中心。不同蛋白质在高尔基体中被分选到不同的目的地。
误区四:“糖基化只发生在高尔基体。”N-连接糖基化起始于内质网,完成于高尔基体;O-连接糖基化在高尔基体中进行。
十、附录:参考文献
1.Walter,P.,&Blobel,G.(1981).TranslocationofproteinsacrosstheendoplasmicreticulumIII.Signalrecognitionprotein(SRP)causessignalsequence-dependentandsite-specificarrestofchainelongationthatisreleasedbymicrosomalmembranes.JournalofCellBiology,91(2),557-561.
2.Halic,M.,&Beckmann,R.(2005).Thesignalrecognitionparticleanditsinteractionsduringproteintargeting.CurrentOpinioninStructuralBiology,15(1),116-125.
3.Nyathi,Y.,Wilkinson,B.M.,&Pool,M.R.(2013).Co-translationaltargetingandtranslocationofproteinstotheendoplasmicreticulum.BiochimicaetBiophysicaActa,1833(11),2392-2402.
4.Blobel,G.,&Dobberstein,B.(1975).Transferofproteinsacrossmembranes.I.Presenceofproteolyticallyprocessedandunprocessednascentimmunoglobulinlightchainsonmembrane-boundribosomesofmurinemyeloma.JournalofCellBiology,67(3),835-851.
5.Pelham,H.R.(1992).TheFloreyLecture,1992.Thesecretionofproteinsbycells.ProceedingsoftheRoyalSocietyB,250(1327),1-10.
6.Braakman,I.,&Hebert,D.N.(2013).Proteinfoldingintheendoplasmicreticulum.ColdSpringHarborPerspectivesinBiology,5(5),a013201.
7.Stanley,P.(2011).Golgiglycosylation.ColdSpringHarborPerspectivesinBiology,3(4),a005199.
8.Barlowe,C.,&Miller,E.A.(2013).Secretoryproteinbiogenesisandtrafficintheearlysecretorypathway.Genetics,193(2),383-410.