ARTICLE · 1151750
高中生物疑难问题讲稿:基因的复制与表达——能量来源、酶学机制与过程对比
高中生物疑难问题讲稿:基因的复制与表达——能量来源、酶学机制与过程对比
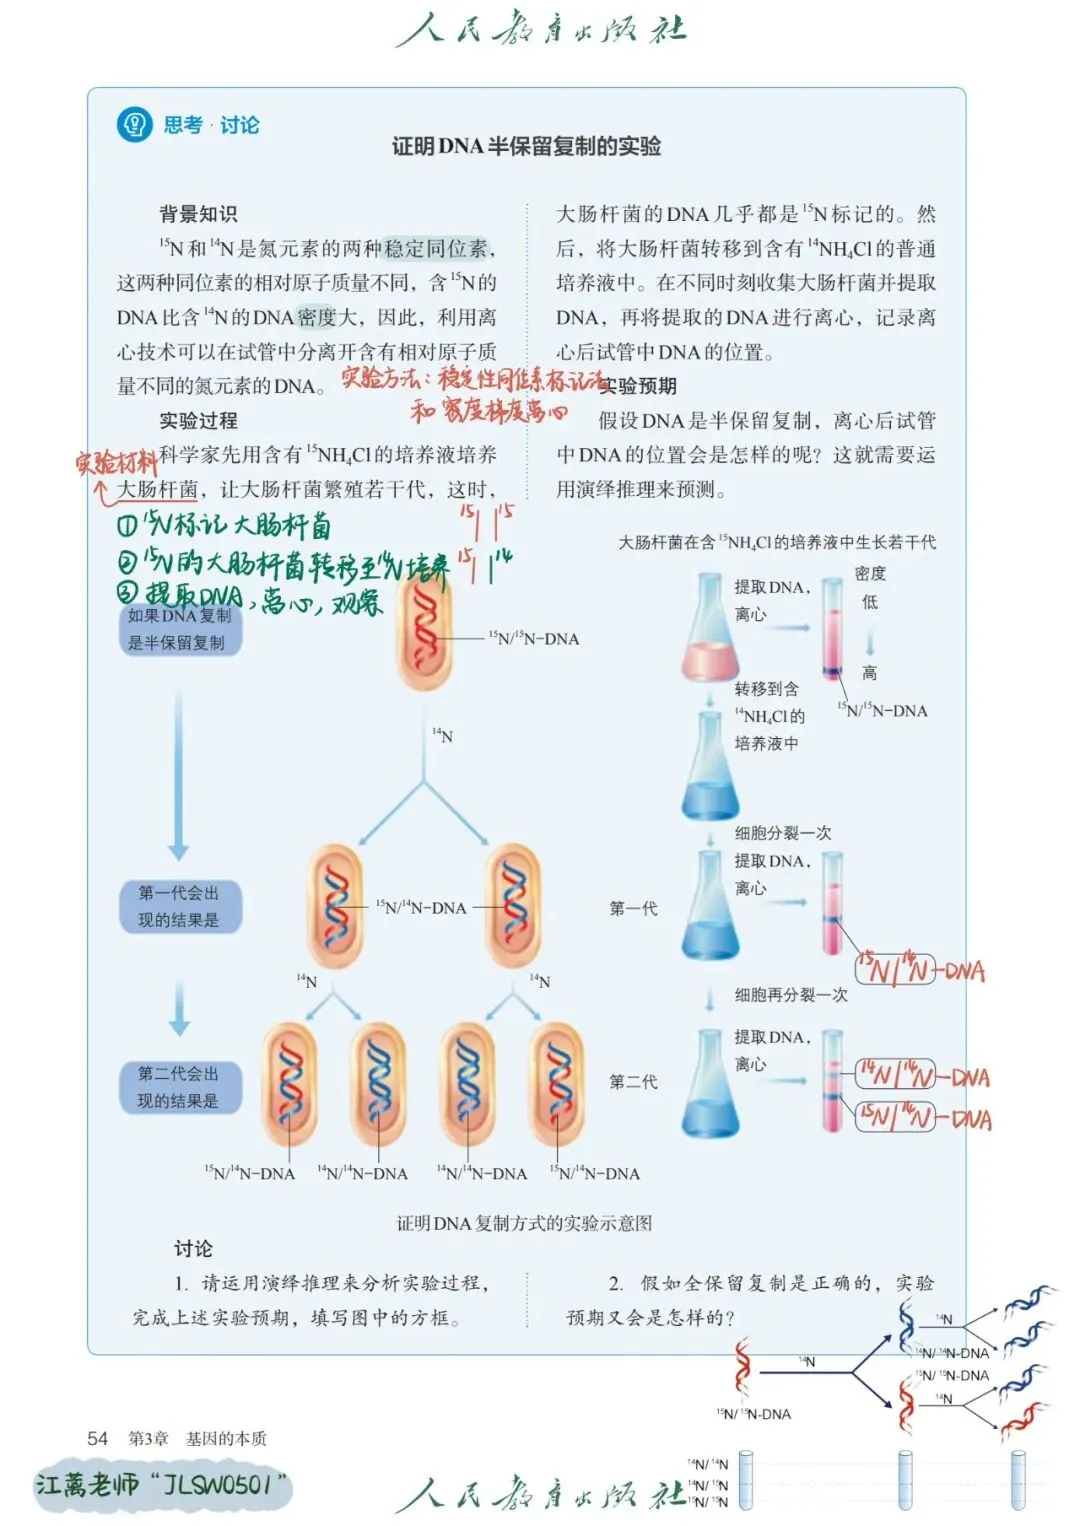
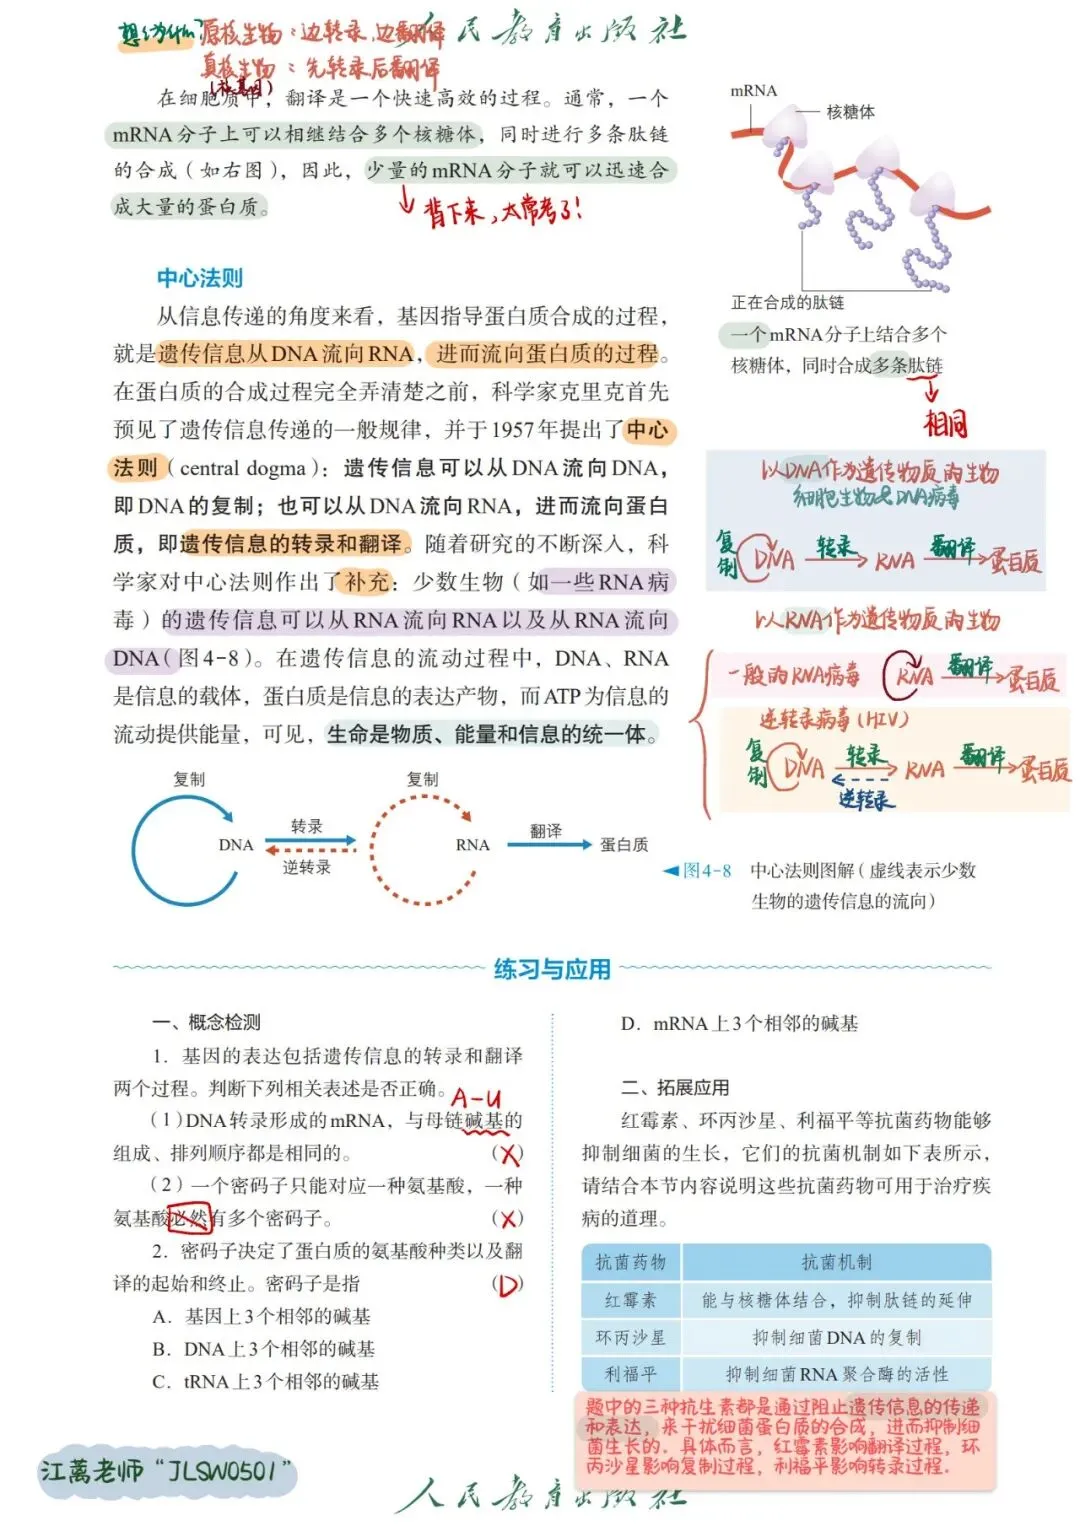
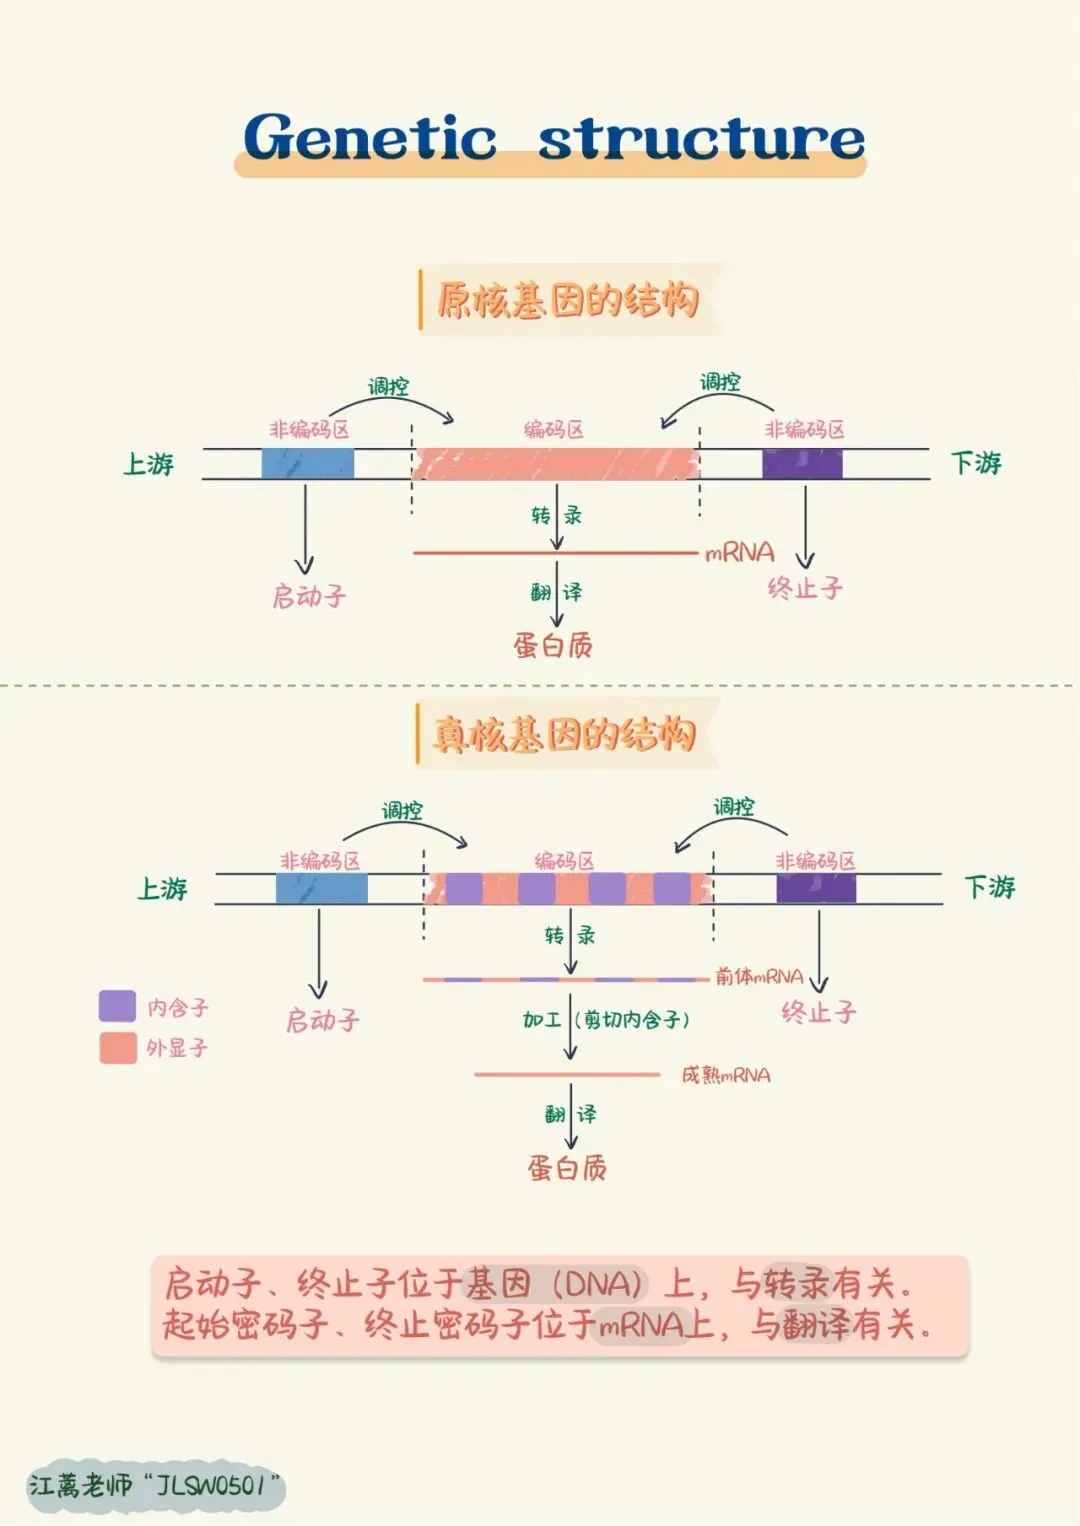
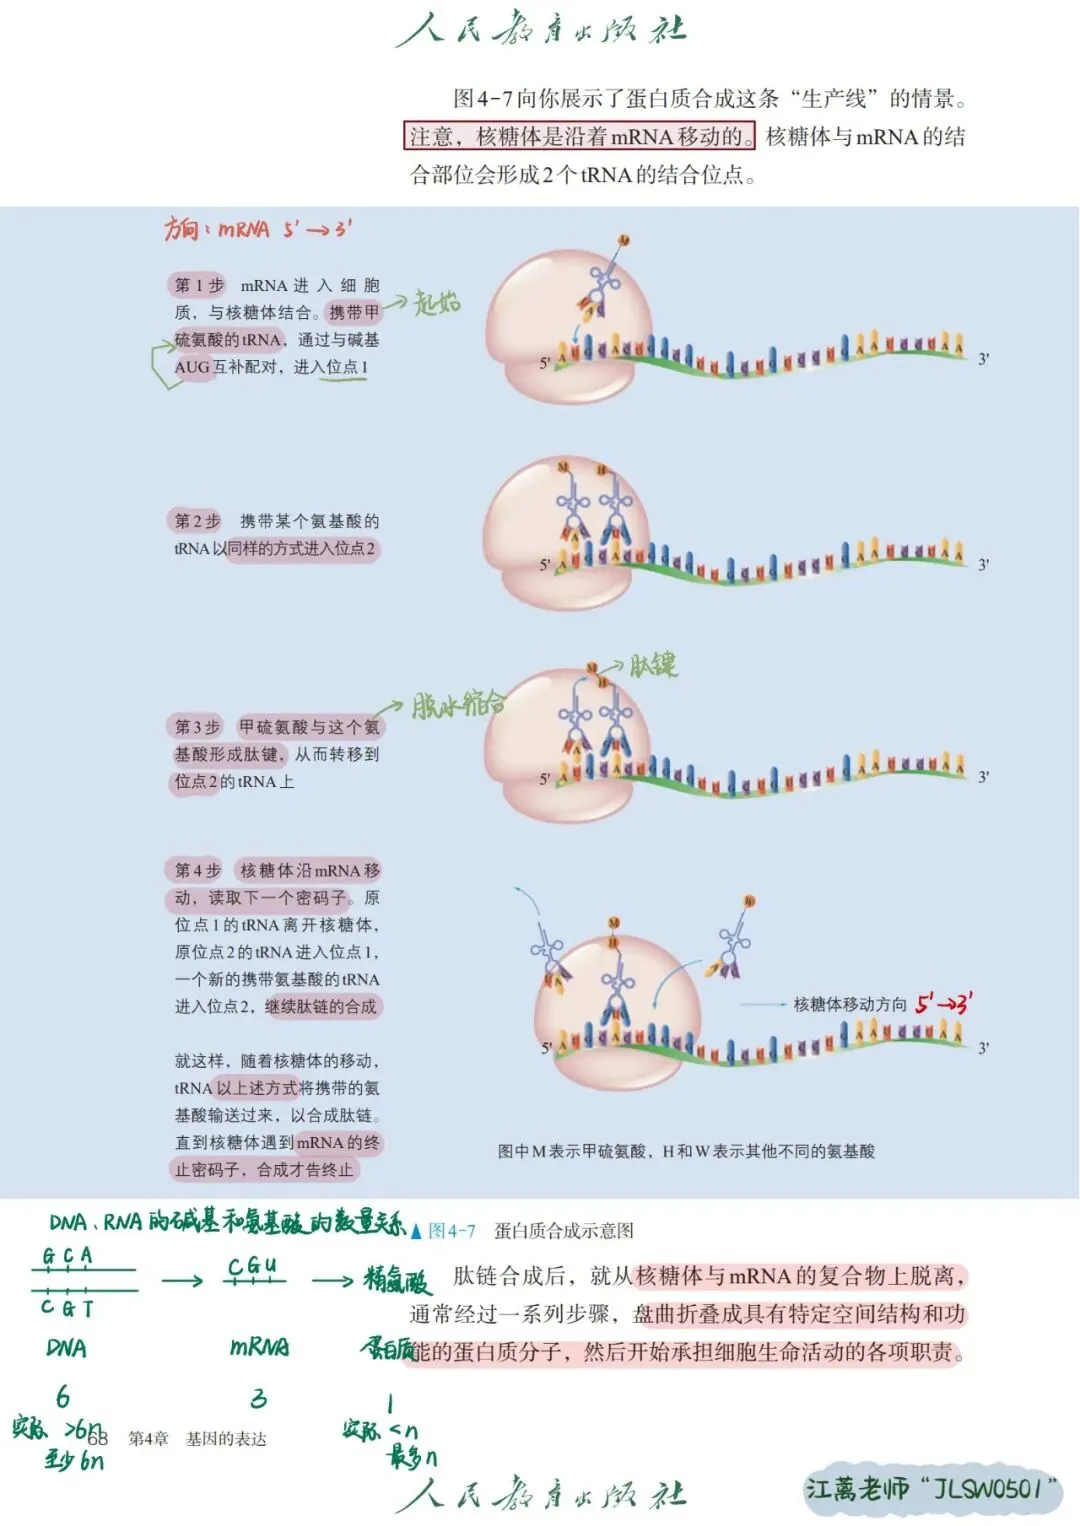
开场导入
同学们,今天这节课我们要把“基因的复制与表达”这个大板块中那些让人头疼的疑难问题一次性打包解决。
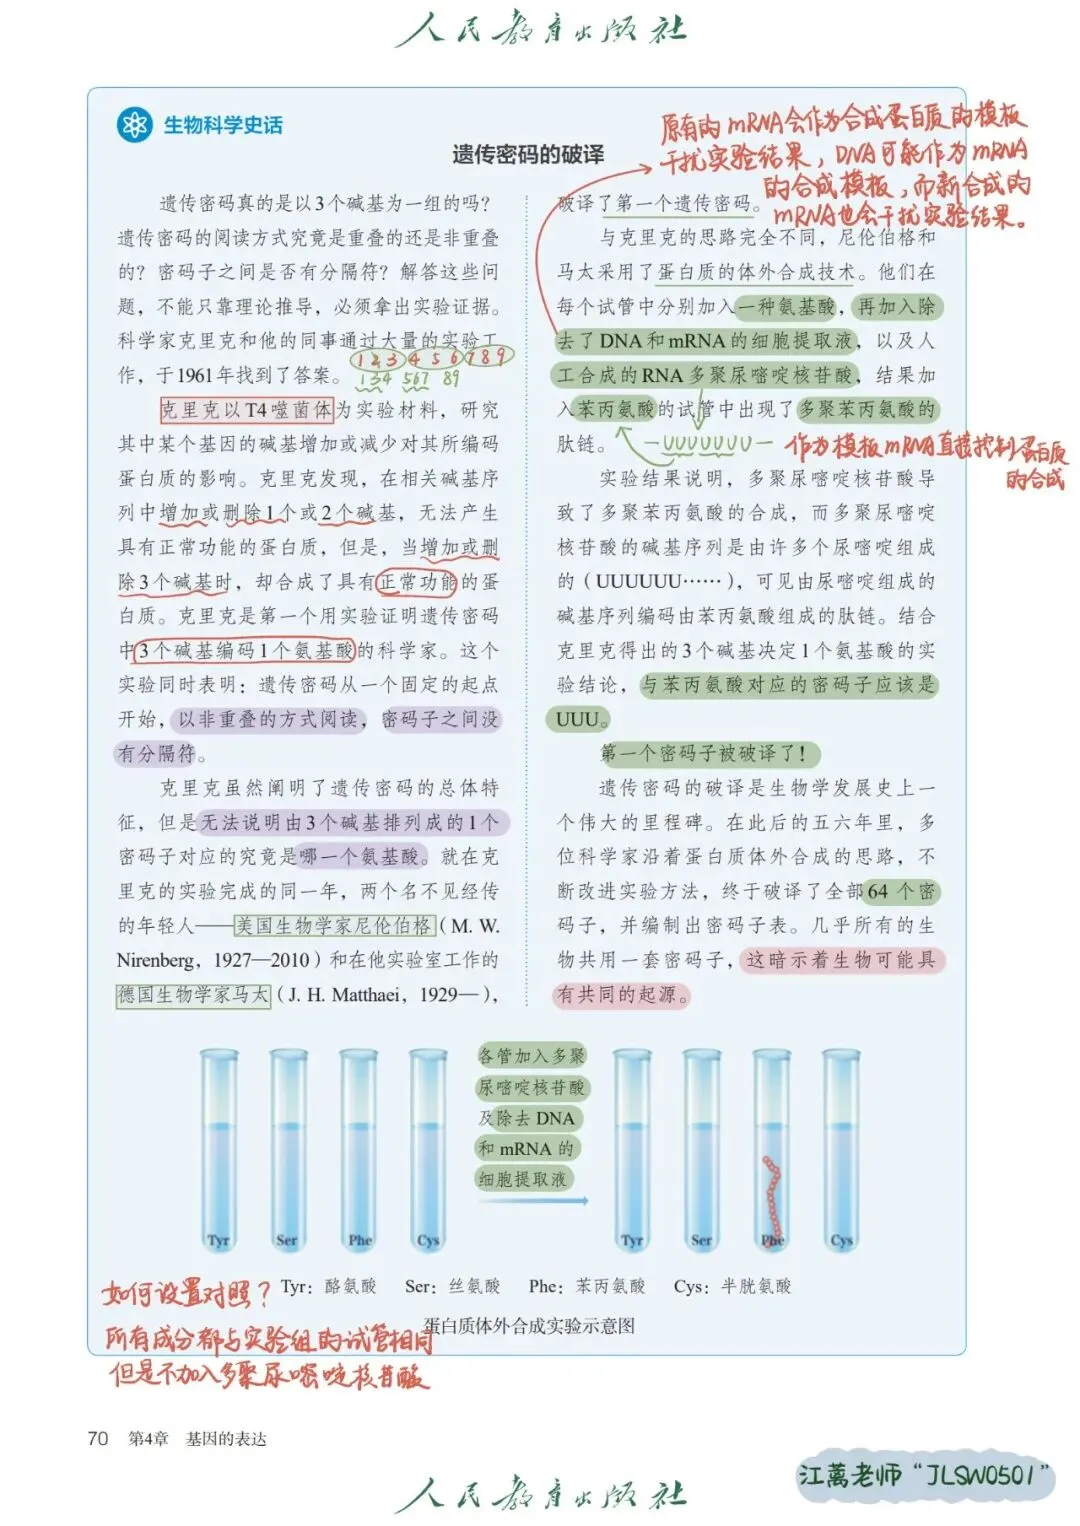
我在答疑的时候经常遇到这样的连环问:“老师,DNA复制需要能量,那能量都来自ATP吗?”“PCR为什么要加热?加热的能量来自哪里?”“为什么DNA复制需要RNA引物,而PCR用的却是DNA引物?”“DNA连接酶连接冈崎片段的时候,能量从哪来?”这些问题问得非常好,说明大家已经开始思考生命现象的底层逻辑了。今天,我们就从大学分子生物学和生物化学的视角,把DNA复制、转录和翻译所需的能量来源、关键酶的作用机制,以及三大过程的系统对比,一个一个彻底讲清楚。
一、DNA复制所需的能量:都来自ATP吗?
1.1一个反直觉的事实
我们先回答一个核心问题:DNA复制所需的能量,是否都来自ATP?
很多同学在高中阶段形成了这样一个观念:ATP是细胞的“能量货币”,所以DNA复制当然也是靠ATP水解来驱动的。这个观念并不完全准确。
根据2026年发表在《NatureCommunications》上的一项突破性研究,DNA复制延伸阶段的主要能量来源并非ATP水解,而是dTTP(脱氧胸苷三磷酸)的水解。这项研究通过单分子可视化技术发现,即使存在生理浓度的ATP,大肠杆菌的DnaB解旋酶在复制体延伸过程中也优先水解dTTP来驱动DNA的解旋。
这意味着,我们对“ATP是DNA复制唯一能量来源”的传统认知需要更新了。复制解旋酶实际上是一种“灵活燃料”解旋酶——它可以使用多种核苷三磷酸来驱动DNA的解旋,dTTP在其中扮演了主力角色。
1.2dNTP自身携带的能量
那么,DNA合成过程中到底哪里需要能量?答案就在dNTP(脱氧核苷三磷酸)本身。
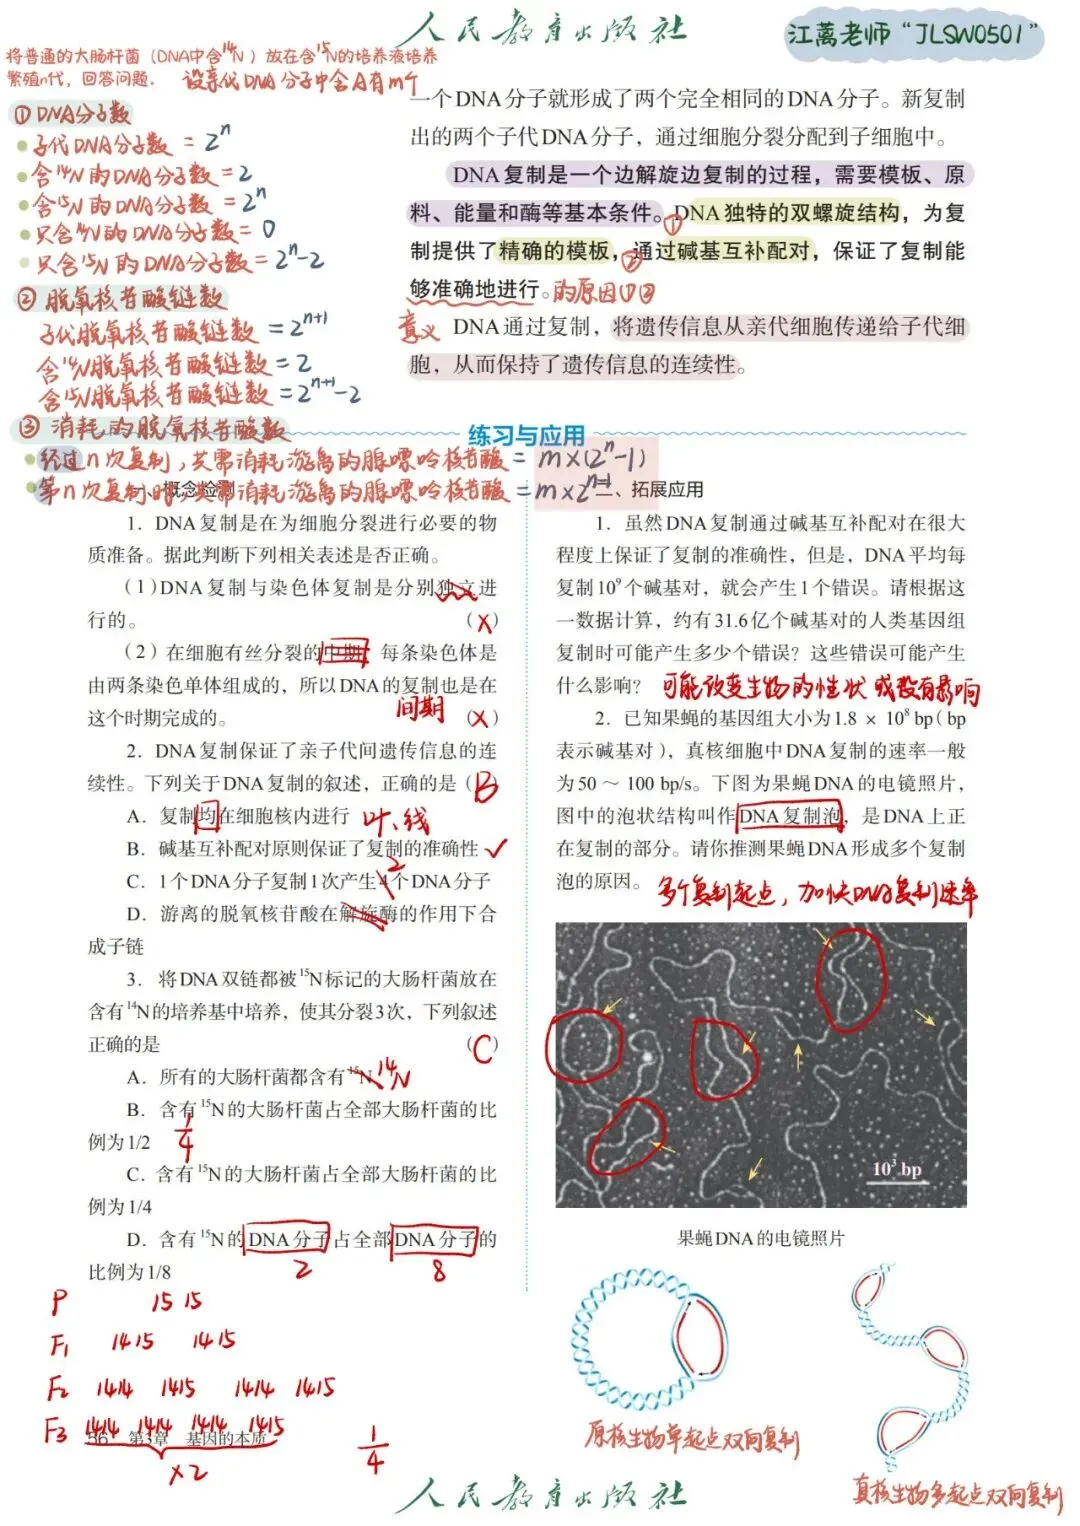
dNTP是一种高能化合物,它的结构中包含三个磷酸基团。当DNA聚合酶将一个dNTP加到正在延伸的DNA链的3'-OH末端时,dNTP的α-磷酸基团与3'-OH形成磷酸二酯键,同时释放出焦磷酸(PPi)。焦磷酸随后被焦磷酸酶水解为两分子无机磷酸,释放大量自由能。这个反应的能量实际上来自dNTP自身携带的高能磷酸酐键。正如OpenStax教材所解释的:“核苷酸的添加需要能量;这个能量来自带有三个磷酸基团的核苷酸,类似于带有三个磷酸基团的ATP”。
1.3三步反应的完整能量账单
让我们来梳理DNA复制中的完整能量消耗:
第一步:解旋酶驱动DNA解链。如前面所述,复制解旋酶优先使用dTTP水解供能。水解产生的能量驱动DnaB沿DNA移动,将双螺旋解开。
第二步:dNTP水解驱动链的延伸。dNTP自身携带的高能磷酸键在掺入DNA链时断裂,释放焦磷酸,提供磷酸二酯键形成所需的能量。
第三步:焦磷酸水解推动反应不可逆。焦磷酸被细胞内的焦磷酸酶迅速水解为两分子无机磷酸,释放大量自由能,使整个聚合反应在生理条件下不可逆地进行。
此外,在复制起始阶段,DnaA蛋白和DnaC加载因子也需要ATP水解来驱动构象变化;在复制延伸中,滑动夹加载器复合体利用ATP水解将β₂滑动夹加载到DNA上。
二、PCR中的加热与能量来源
2.1为什么PCR需要加热?
PCR(聚合酶链式反应)是在体外扩增DNA的技术,它的原理基于DNA复制的三大步骤,但实现方式完全不同。PCR的一个核心步骤是热变性——将双链DNA加热到95°C,使两条链之间的氢键断裂,DNA解旋成单链。
为什么PCR要用加热而不是解旋酶来打开DNA?原因在于:PCR是一个在体外无细胞环境中进行的反应,没有细胞内的各种辅助蛋白(如解旋酶、拓扑异构酶等)。加热提供了一种简便高效的替代方案——通过热运动破坏氢键,使DNA双链分离。
2.2PCR三步循环的能量来源
PCR的每个循环包括三个阶段:
变性阶段(95°C):加热使DNA双链分离,能量来自PCR仪提供的热能。
退火阶段(50-65°C):温度降低,引物与单链模板通过碱基互补配对结合,形成氢键。
延伸阶段(68-72°C):TaqDNA聚合酶(来自嗜热细菌Thermusaquaticus)催化dNTP掺入,合成新的DNA链。这个阶段的能量来源与体内DNA复制相同——来自dNTP自身携带的高能磷酸键。
2.3PCR引物为什么是DNA而不是RNA?
这是一个非常经典的疑难问题。体内DNA复制使用RNA引物,但PCR使用DNA引物。原因如下:
第一,耐高温。PCR需要进行95°C的热变性步骤。RNA在高温下容易降解,而DNA引物热稳定性好得多。TaqDNA聚合酶之所以能耐受高温,就是因为它来自嗜热菌,而DNA引物同样能在高温下保持稳定。
第二,简化操作。PCR是体外反应,如果使用RNA引物,就必须在反应体系中加入RNA引物酶来合成引物,而且还要加入RNA酶来切除引物、再用DNA连接酶填补缺口,操作极其繁琐。使用DNA引物可以绕过这些步骤——DNA聚合酶直接延伸DNA引物的3'-OH末端即可。
第三,引物设计可控。PCR引物是人工设计并合成的,长度通常为17-30个核苷酸,特异性高。引物的序列决定了扩增产物的起始和终止位置。使用DNA引物可以精确控制扩增片段的大小和边界,这是PCR技术的关键优势。
三、DNA复制中的解旋、延伸与终止
3.1如何解旋?
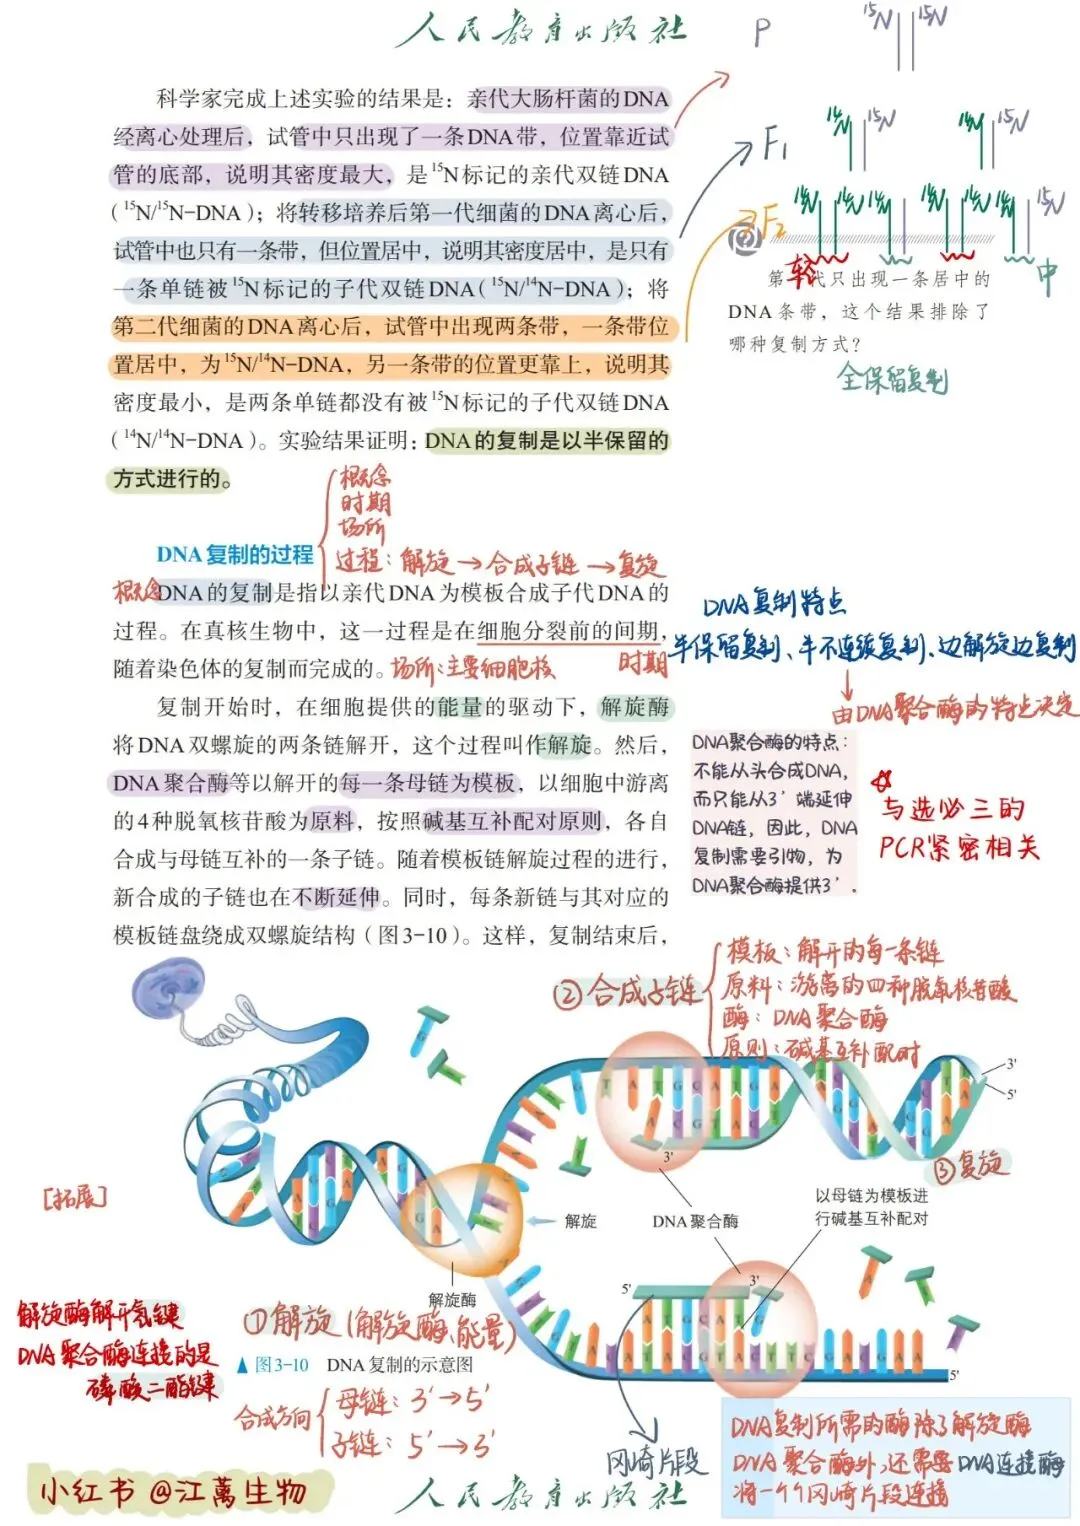
DNA复制的第一步是解旋。在原核生物中,DnaA蛋白首先在复制起点oriC处识别并结合特定的DNA序列,引起局部解链。然后,DnaB解旋酶被加载到单链区域,利用核苷三磷酸(主要是dTTP)水解的能量沿DNA移动,将双螺旋“拉开”。
单链结合蛋白(SSB)结合在已解开的单链上,防止它们重新退火或形成二级结构。DNA拓扑异构酶(如DNA回旋酶)负责释放解旋过程中产生的超螺旋张力,使解旋酶能够继续前进。
3.2链如何延伸?
延伸阶段的核心是DNA聚合酶III全酶。但DNA聚合酶III有一个根本性的限制:它不能从头合成新链——它只能将核苷酸加到已有的3'-OH末端上。这就是为什么需要RNA引物的原因。
引物酶(DnaG)在模板单链上合成一段约10-60个核苷酸的RNA引物,提供3'-OH末端。DNA聚合酶III随后从这个3'-OH末端开始,沿5'→3'方向延伸DNA链。
由于DNA双链是反向平行的,而DNA聚合酶只能沿5'→3'方向合成,两条链的合成方式截然不同。前导链的合成方向与复制叉移动方向一致,可以连续合成。后随链的合成方向与复制叉移动方向相反,只能以冈崎片段的形式不连续合成。
3.3复制如何终止?
在原核生物中,复制终止的机制相对简单。大肠杆菌环状染色体的终止区含有特定的Ter位点,这些Ter序列与Tus蛋白结合,形成一个极性复制屏障,阻止复制叉继续前进。
Tus蛋白的作用机制非常精妙:它并不直接“杀死”复制叉,而是作为反解旋酶,通过与DnaB解旋酶发生蛋白-蛋白相互作用来阻挡其解旋活性。当DnaB解旋酶遇到Tus-Ter复合物时,它的解旋作用被抑制,复制叉停止前进。两个复制叉在终止区相遇后,DNA拓扑异构酶将两个相互缠绕的子代环状DNA分子分开,复制完成。
值得注意的是,Tus蛋白的阻断作用具有方向特异性——它只阻断从一个方向来的复制叉,而对反方向的复制叉则无效。这确保了复制叉能够正确地在终止区相遇,而不会在到达终止区之前就被阻挡。
四、DNA连接酶与冈崎片段的连接
4.1DNA连接酶连接什么键?
DNA连接酶的功能是催化磷酸二酯键的形成,具体来说是在双链DNA的单链缺口处,将一个DNA片段的3'-OH与相邻DNA片段的5'-磷酸基团之间形成磷酸二酯键。
4.2如何连接冈崎片段?
后随链的合成涉及多个冈崎片段,每个片段都以RNA引物开头。当DNA聚合酶III完成一个冈崎片段的合成后,需要经历以下步骤:
第一步:切除RNA引物。DNA聚合酶I具有5'→3'外切核酸酶活性,从5'端切除RNA引物,同时用DNA填补留下的缺口。
第二步:产生可连接的缺口。当DNA聚合酶I填补完最后一个核苷酸后,相邻片段之间仍缺少一个磷酸二酯键,形成一个“缺口”。
第三步:DNA连接酶封口。DNA连接酶催化缺口处3'-OH和5'-磷酸之间形成磷酸二酯键,将两个片段连接成一条完整的DNA链。
4.3连接的能量来自哪里?
DNA连接酶催化的反应是一个ATP(或NAD⁺)驱动的三步反应:
第一步:连接酶的赖氨酸残基与ATP(或NAD⁺)的一个AMP分子形成磷酸酰胺键,产生连接酶-腺苷酸中间体,同时释放焦磷酸(若使用ATP)。
第二步:AMP被转移到DNA缺口的5'-磷酸末端,形成DNA-腺苷酸中间体。
第三步:缺口处的3'-OH对DNA-腺苷酸发起亲核攻击,导致两个多核苷酸连接,释放AMP。
所以,DNA连接酶并不直接利用ATP水解产生的能量来形成磷酸二酯键,而是通过形成和断裂磷酸酰胺键来实现能量的传递和利用。细菌DNA连接酶使用NAD⁺作为辅因子,而真核生物、病毒和噬菌体的DNA连接酶使用ATP。
五、转录的过程
5.1转录的模板、原料和酶
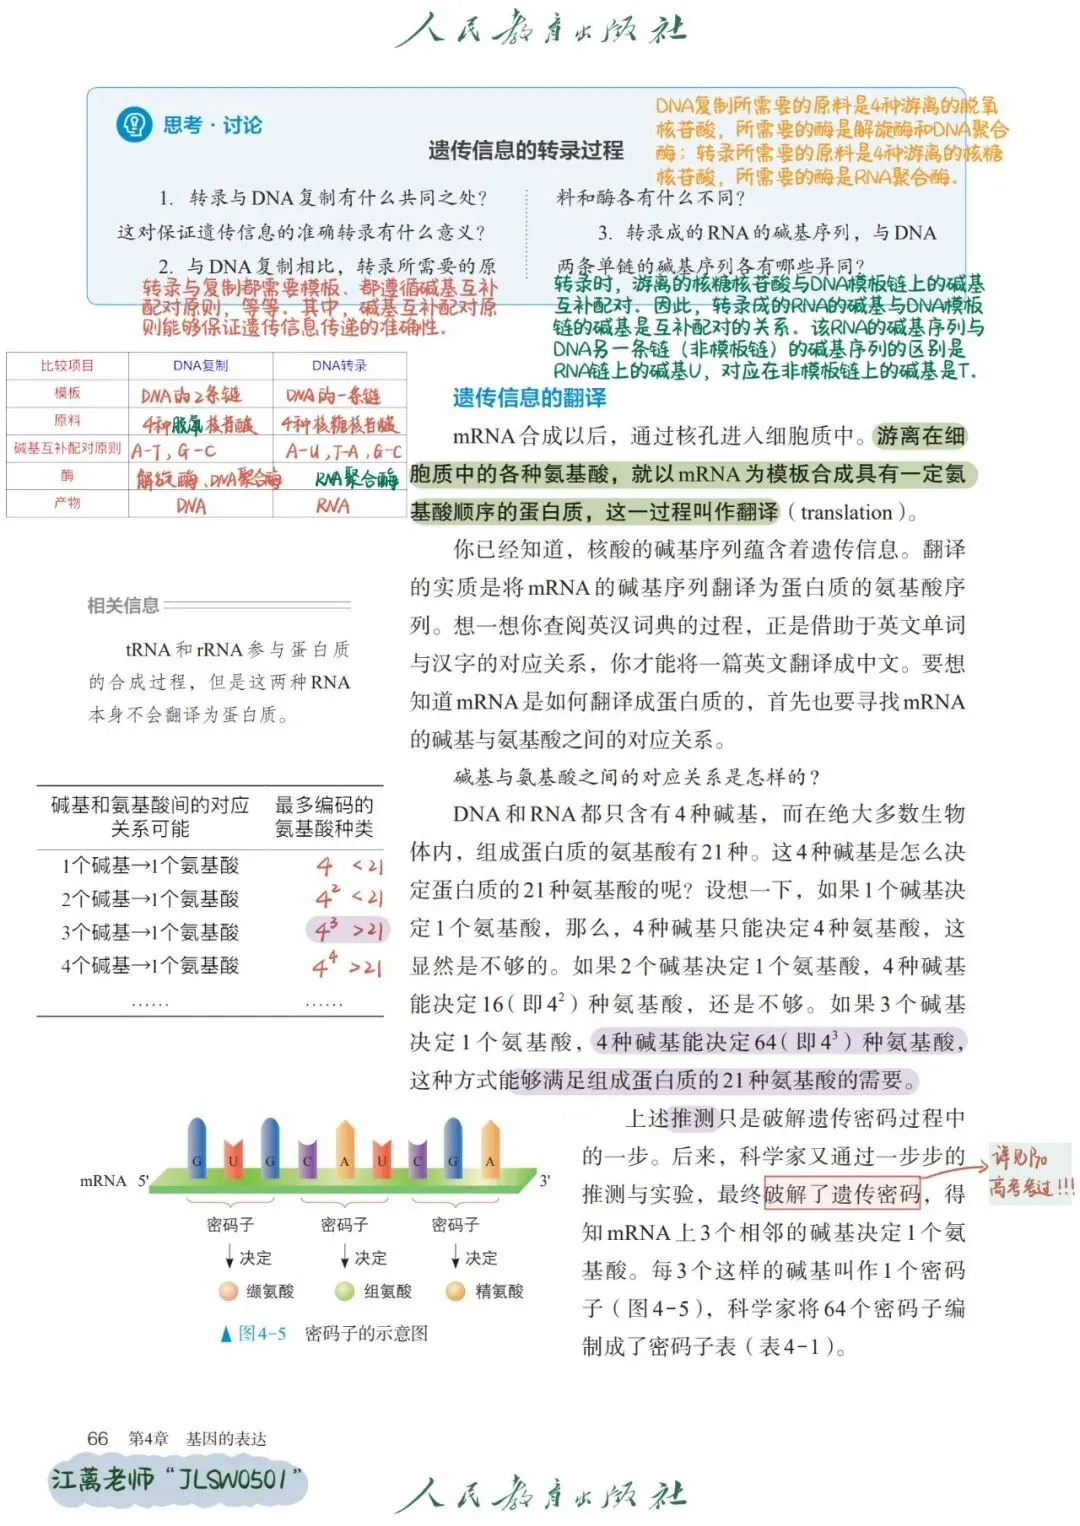
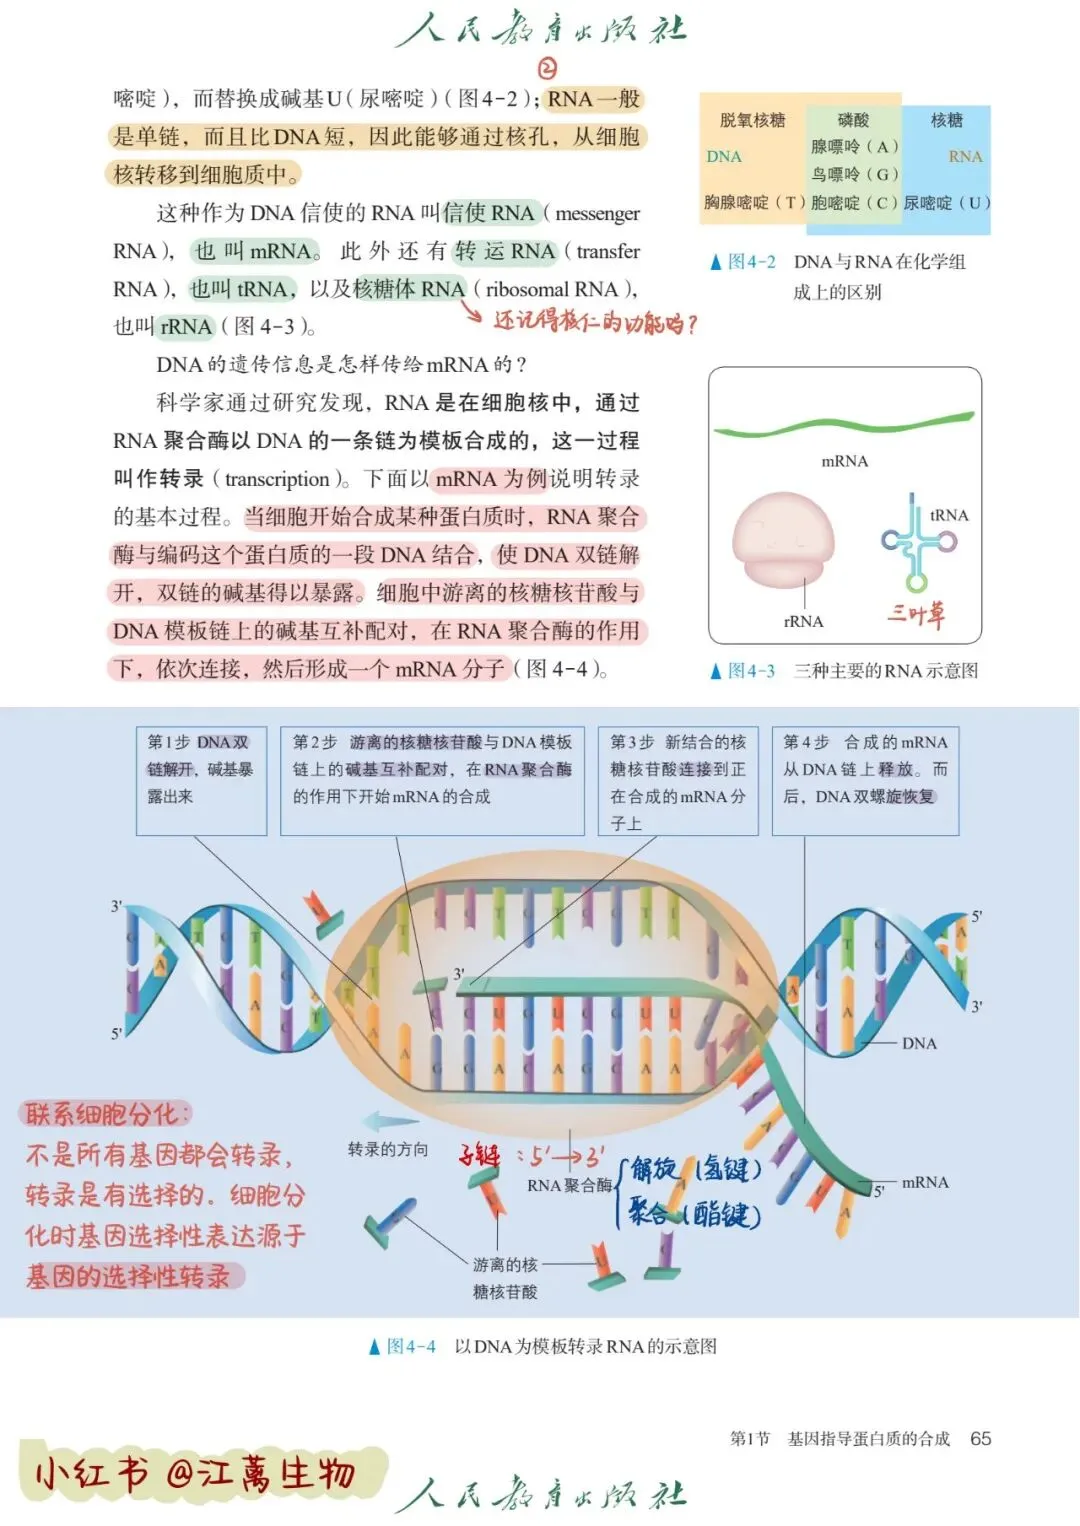
转录是以DNA的一条链为模板,按照碱基互补配对原则合成RNA的过程。
模板:DNA的模板链(反义链)。注意,转录只以DNA双链中的一条链为模板,另一条链(编码链)不参与转录。
原料:4种核糖核苷三磷酸(NTP):ATP、GTP、CTP、UTP。注意,这里的ATP既是能量货币,也是合成RNA的直接原料。
酶:RNA聚合酶。它以DNA为模板,以NTP为底物,通过磷酸二酯键聚合合成RNA。RNA聚合酶需要Mg²⁺或Mn²⁺作为必需的辅因子。
5.2RNA聚合酶的特点
RNA聚合酶有几个与DNA聚合酶截然不同的特点:
第一,不需要引物。RNA聚合酶能够从头合成RNA链,不需要引物来提供3'-OH末端。这是它与DNA聚合酶最本质的区别之一。
第二,局部解链。RNA聚合酶能够局部解开DNA的两条链,转录时无须将DNA双链完全解开。
第三,无校对功能。RNA聚合酶没有3'→5'外切核酸酶活性,因此不具备校对功能,转录的错误率比DNA复制高得多。但这是可以接受的——RNA是消耗品,错误不会遗传给下一代。
第四,催化机制。RNA聚合酶催化的反应为:(NMP)n+NTP→(NMP)n+1+PPi。每加入一个核苷酸,脱去一个焦磷酸,形成磷酸二酯键,焦磷酸迅速水解的能量驱动聚合反应。
5.3转录的终止
原核生物的转录终止有两种机制:
不依赖Rho因子的终止(内在终止):新生RNA在3'端形成发夹结构(茎环结构),这种二级结构会导致RNA聚合酶构象变化,使其从DNA模板上脱落,终止转录。
依赖Rho因子的终止:Rho因子是一种ATP依赖的RNA解旋酶,它识别并结合到新生RNA上富含胞苷的rut位点,利用ATP水解的能量沿RNA移动,追赶上RNA聚合酶后促使转录复合物解离。
六、翻译的过程
6.1翻译的核心元件
翻译是以mRNA为模板合成蛋白质的过程,涉及以下核心元件:
mRNA(信使RNA):携带遗传信息,作为翻译的模板。
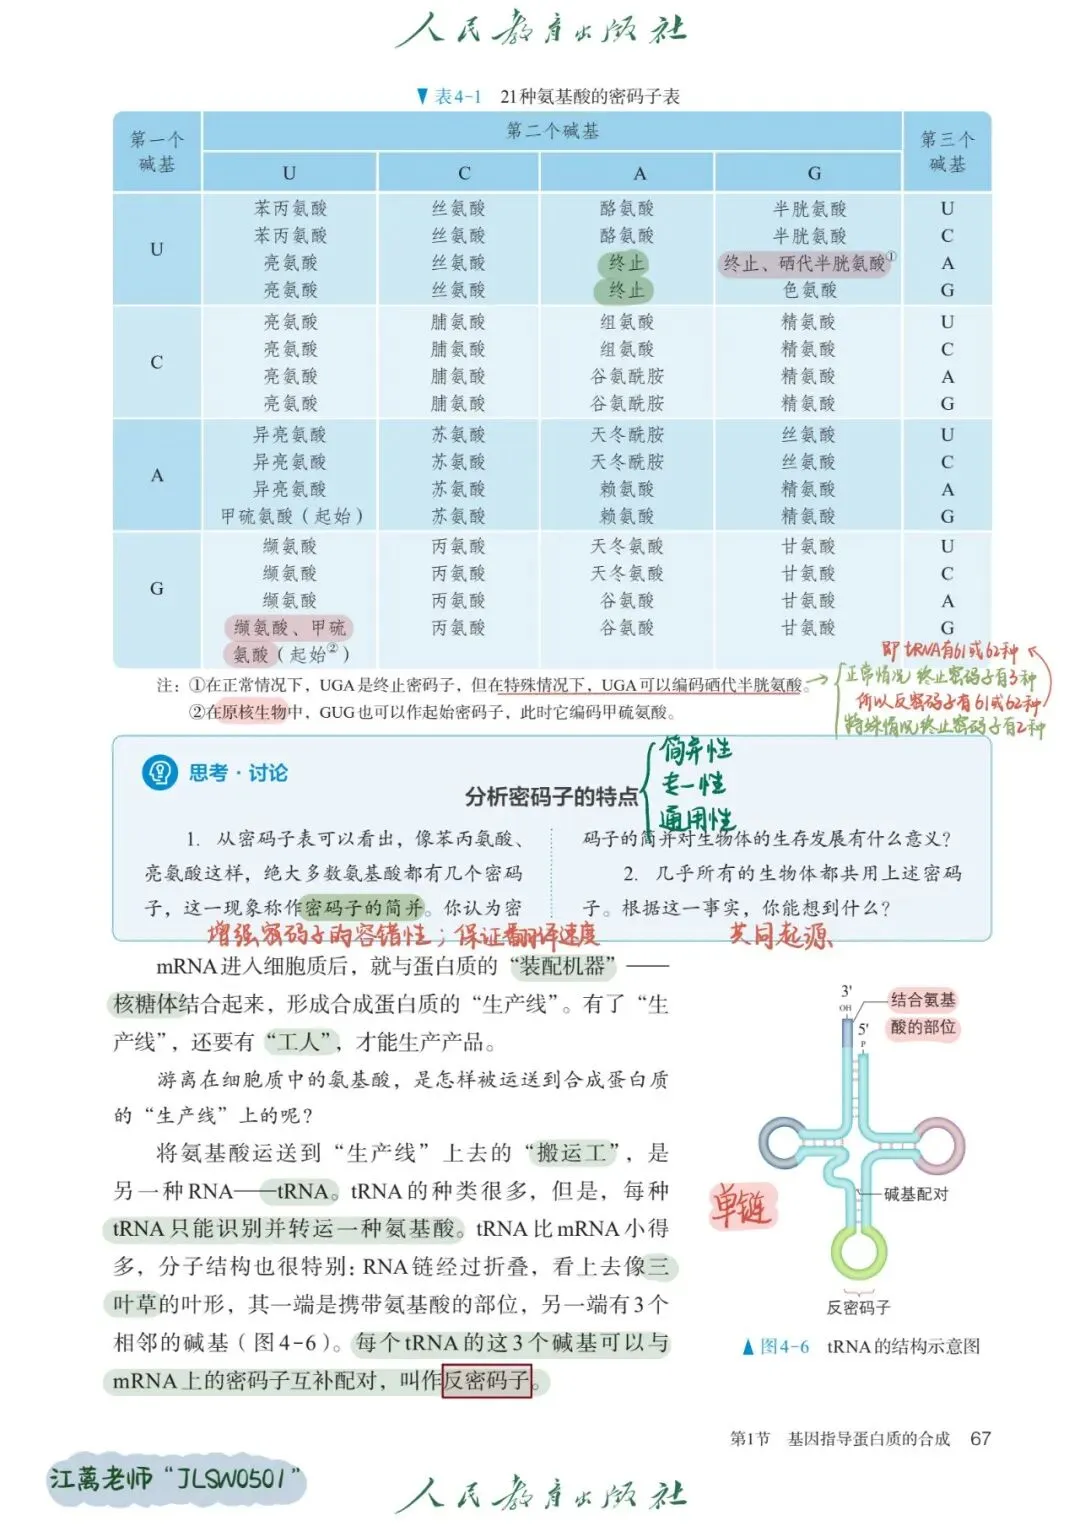
密码子:mRNA上3个相邻的碱基决定1个氨基酸。4种碱基的排列组合共形成64个密码子,其中AUG是起始密码子(同时编码甲硫氨酸),UAA、UAG、UGA是终止密码子。
tRNA(转运RNA):是连接密码子和氨基酸的适配器分子。tRNA的一端携带特定的氨基酸,另一端有一个反密码子(3个碱基),能够与mRNA上的密码子通过碱基互补配对结合。
核糖体:是蛋白质合成的“工厂”,由大亚基和小亚基组成。核糖体沿mRNA移动,催化氨基酸之间形成肽键。
6.2翻译的能量来源
翻译是一个极其耗能的过程,每掺入一个氨基酸,消耗2个GTP(延伸阶段)加上氨基酸活化消耗的2个ATP,总共4个高能磷酸键。GTP用于驱动核糖体的构象变化和移位,ATP用于氨基酰-tRNA的合成。
七、复制、转录、翻译的系统对比
对比项目 | DNA复制 | 转录 | 翻译 |
模板 | DNA的两条链 | DNA的一条链(模板链) | mRNA |
原料 | 4种dNTP(dATP,dTTP,dCTP,dGTP) | 4种NTP(ATP,GTP,CTP,UTP) | 20种氨基酸 |
主要酶 | DNA聚合酶III、解旋酶、引物酶、连接酶 | RNA聚合酶 | 核糖体(肽基转移酶) |
产物 | 2个双链DNA分子 | 1条单链RNA分子 | 多肽链 |
碱基配对 | A-T,G-C | A-U,T-A,G-C | 密码子-反密码子配对 |
是否需引物 | 需要RNA引物 | 不需要引物 | 不需要引物 |
合成方向 | 5'→3' | 5'→3' | N端→C端 |
能量来源 | dNTP水解(主要)、ATP/GTP水解 | NTP水解(焦磷酸释放) | GTP(延伸)、ATP(活化) |
校对功能 | 有(3'→5'外切酶活性) | 无 | 无 |
发生场所 | 细胞核(真核)、细胞质(原核) | 细胞核(真核)、细胞质(原核) | 核糖体 |
八、常见误区辨析
误区一:DNA复制所需的能量都来自ATP。
不准确。DNA复制延伸阶段的主要能量来源是dNTP自身携带的高能磷酸键。DnaB解旋酶在复制体延伸过程中优先水解dTTP来驱动解旋,dTTP才是主要能量来源。
误区二:PCR的引物和体内DNA复制的引物一样。
错误。体内DNA复制使用RNA引物,PCR使用DNA引物。DNA引物耐高温,更适合PCR的热循环条件。
误区三:DNA连接酶直接利用ATP水解的能量连接缺口。
不准确。DNA连接酶通过形成和断裂磷酸酰胺键来传递能量,ATP(或NAD⁺)的AMP部分被转移到DNA缺口上形成中间体,而不是简单的水解供能。
误区四:RNA聚合酶和DNA聚合酶一样需要引物。
错误。RNA聚合酶能够从头合成RNA链,不需要引物。这是它与DNA聚合酶最本质的区别之一。
误区五:翻译的能量全部来自ATP。
错误。翻译延伸阶段消耗GTP,氨基酸活化消耗ATP。每掺入一个氨基酸,总共消耗约4个高能磷酸键。
九、总结
同学们,今天这节课的核心内容可以概括为以下几点:
DNA复制的能量来源是多样化的——延伸阶段主要依靠dNTP自身携带的高能磷酸键,解旋酶优先使用dTTP水解供能,此外ATP和GTP也在起始和加载步骤中发挥作用。
PCR的加热是替代解旋酶的热变性方法,延伸阶段的能量来源与体内复制相同,来自dNTP自身。
RNA引物提供起始的3'-OH末端,体内复制使用RNA引物因为引物酶能从头合成;PCR使用DNA引物因为耐高温且操作简便。
DNA复制终止依赖于Tus-Ter复合物形成的极性复制屏障,Tus蛋白作为反解旋酶阻断DnaB解旋酶的活性。
DNA连接酶通过三步反应连接冈崎片段,细菌使用NAD⁺、真核生物使用ATP作为辅因子。
转录不需要引物,RNA聚合酶能从头合成RNA,使用NTP为原料,每加入一个核苷酸释放焦磷酸驱动反应。
翻译消耗ATP和GTP,tRNA作为适配器分子通过反密码子与密码子配对,核糖体催化肽键形成。
希望今天的讲解能帮助大家彻底打通基因复制与表达相关知识的“任督二脉”。如果还有疑问,欢迎随时提问。
参考文献
[1]NelsonDL,CoxMM.LehningerPrinciplesofBiochemistry(7thed.)[M].NewYork:W.H.FreemanandCompany,2017.
[2]王镜岩,朱圣庚,徐长法.生物化学(第3版)[M].北京:高等教育出版社,2002.
[3]LewinB.GenesIX[M].Sudbury:JonesandBartlettPublishers,2008.
[4]KornbergA,BakerTA.DNAReplication(2nded.)[M].NewYork:W.H.FreemanandCompany,1992.
[5]“ATPisdispensableforE.coliDNAreplicationandeukaryotichelicaseactivity”[J].NatureCommunications,2026,17:5358.