ARTICLE · 1070669
2区5分!天然产物发文模板|GEO公共数据库挖掘+转录组+PPI 网络+湿实验验证,拆解纳米蛹虫草抗气道炎症完整研究逻辑!
空气污染中的细颗粒物与细菌内毒素联手攻击呼吸道,我们该如何为肺泡上皮细胞筑起防线?这项研究用壳聚糖纳米颗粒包裹蛹虫草提取物,在细胞模型中验证了其抗氧化与抗炎效果,并借助生物信息学锁定了关键分子靶点,为功能性食品开发提供了新思路。
真正开启不学R语言时代!!!关注本号私信“资料”两字,免费领取>5篇0代码云平台复现5-15分公共数据库挖掘SCI全文教程!轻松入门生信分析!秒变生信分析大神!

新鲜出炉!今天给大家深度剖析一篇2026年6月发表在《Nutrients》上的文章,题目为:纳米包裹的黑豆培养蛹虫草减轻PM和LPS诱导的气道炎症
Nano-Encapsulated Black Bean-Cultivated Cordyceps militaris Attenuates PM- and LPS-Induced Airway Inflammation.
本研究将发芽黑豆培养的蛹虫草提取物包封于壳聚糖纳米颗粒中,在人II型肺泡上皮细胞(A549)模型中探究其对PM和LPS联合暴露所致氧化应激与炎症的保护作用,并结合GEO转录组数据集与网络分析识别关键枢纽基因和信号通路,通过RT-PCR和蛋白质印迹进行验证。
影响因子:5
发表期刊:Nutrients
团队成员合影(位于上海陆家嘴中心,可随时预约参观)



纳米包封显著提升稳定性与抗氧化能力: 壳聚糖纳米颗粒包封的蛹虫草提取物在室温储存20天后仍保持高于未包封提取物的总抗氧化能力,表明纳米包封有效保护了不稳定的抗氧化成分。
治疗指数大幅提升: 在PM和LPS共暴露条件下,纳米包封制剂的治疗指数约为未包封提取物的4.5倍,显示出更优的安全性与保护效力平衡。
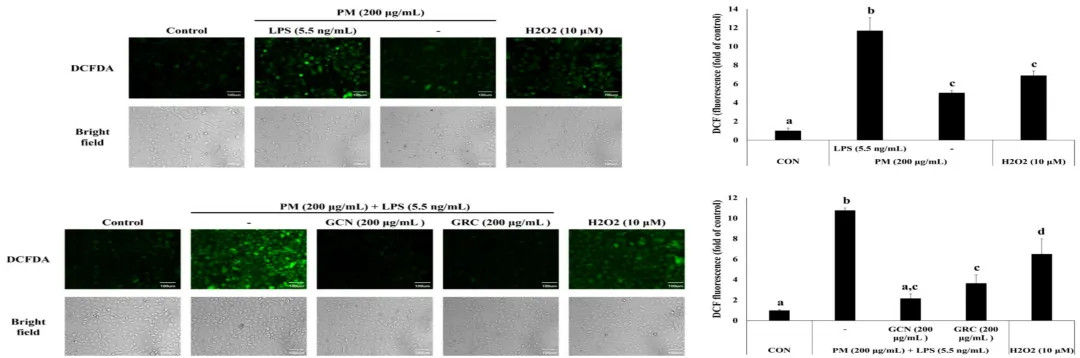
明确ROS清除效果: PM与LPS联合刺激使A549细胞内ROS水平较对照组升高约11.60倍,而纳米包封制剂显著抑制了ROS过度产生,效果优于未包封提取物。
锁定关键炎症枢纽基因: 通过GEO数据集与网络分析鉴定出TNF、CXCL-10、CXCL-1、IL-6、IL-1β、CCR2、CXCL-2和CCL4等枢纽基因,主要富集于TNF信号通路、Toll样受体信号通路和细胞因子信号通路。
验证核心信号通路抑制: 纳米包封制剂显著抑制了MAPK介导的NF-κB和AP-1信号通路激活,并降低了CXCL-2和TNF-α的mRNA表达。


纳米包封增强天然产物生物活性: 将发芽黑豆培养的蛹虫草提取物成功包封于壳聚糖纳米颗粒中,解决了其水溶性活性成分膜通透性差、储存稳定性低等限制,显著提高了抗氧化和抗炎功效。
PM与LPS共暴露模型的建立: 基于PM携带细菌内毒素可加剧肺损伤的机制,采用PM与LPS联合暴露模型,更贴近真实环境中PM与细菌成分共同作用的病理状态。
生物信息学与实验验证相结合: 整合GEO转录组数据集、GeneCards疾病靶点、STRING蛋白互作网络和CytoHubba枢纽基因筛选,预测关键分子靶点,并在A549细胞中进行实验验证,形成完整的发现-验证链条。
多靶点机制解析: 揭示了纳米包封制剂通过多组分(虫草素、腺苷、多糖、异黄酮、花青素等)协同作用于TLR4介导的MAPK/NF-κB/AP-1信号网络,抑制TNF-α和CXCL-2等效应基因转录。
TRPC6作为下游效应分子: 发现纳米包封制剂可抑制PM和LPS诱导的TRPC6 mRNA表达上调,TRPC6与CXCL-2介导的中性粒细胞迁移和趋化密切相关。


空气污染中的细颗粒物(PM2.5)可深入肺泡区域,通过其含有的过渡金属、多环芳烃、挥发性有机物及革兰阴性菌来源的内毒素等成分,诱导肺部炎症、氧化应激和细胞凋亡。PM携带的脂多糖可加剧PM诱导的肺损伤,即使在环境典型浓度下也能触发细胞因子释放和中性粒细胞募集。现有皮质类固醇等药物主要用于症状控制,难以充分应对长期PM暴露引起的持续性氧化应激和炎症,且长期使用可能伴随免疫抑制等不良反应。蛹虫草作为亚洲传统食药用真菌,含有虫草素、腺苷、多糖等活性成分,具有抗炎、抗氧化等药理活性,但其天然子实体生长缓慢、成本高,且提取物中亲水性活性成分膜通透性差、储存稳定性低,限制了口服应用。壳聚糖纳米颗粒因其低毒性、生物相容性和控释特性,为保护生物活性成分提供了有前景的递送系统。


提取物制备与纳米包封: 采用热水提取法从发芽黑豆培养的蛹虫草中制备提取物,并通过壳聚糖纳米颗粒进行包封,表征粒径、Zeta电位、包封率和载药量。
抗氧化能力与稳定性评价: 采用磷钼法测定总抗氧化能力,比较未包封提取物与纳米包封制剂在室温储存20天后的抗氧化活性变化。
细胞模型建立: 使用A549人II型肺泡上皮细胞,以PM和LPS联合刺激建立氧化应激和炎症模型,通过CCK-8法评估细胞活力,计算EC50、CC50和治疗指数。
ROS检测: 采用DCFH-DA荧光探针检测细胞内ROS水平,评估纳米包封制剂的ROS清除能力。
生物信息学分析: 从GEO数据库获取GSE193958和GSE41684数据集,利用GEO2R筛选差异表达基因,与GeneCards中COPD相关靶点取交集,通过STRING构建蛋白互作网络,CytoHubba筛选枢纽基因,DAVID进行GO和KEGG富集分析。
实验验证: 采用RT-PCR检测CXCL-2、TNF-α和TRPC6的mRNA表达,蛋白质印迹检测p-IκB、p-NF-κB、p-c-Jun、p-ERK和p-JNK蛋白表达水平。


纳米包封制剂的表征与抗氧化活性: 热水提取物可成功形成壳聚糖纳米颗粒,而80%甲醇提取物出现沉淀。纳米包封制剂在室温储存20天后总抗氧化能力显著高于未包封提取物。HPLC测定GRC中腺苷含量为0.36±0.00 mg/g。
细胞活力保护: PM与LPS共处理显著降低A549细胞活力,纳米包封制剂显著恢复细胞活力,效果优于未包封提取物。纳米包封制剂的EC50为145.45±19.18 μg/mL,未包封提取物为218.19±55.19 μg/mL。纳米包封制剂治疗指数为15.85±1.67,未包封提取物为3.49±0.97,提高约4.5倍。
ROS清除: PM与LPS联合刺激使细胞内ROS较对照组升高11.60±0.54倍,较单独PM处理升高2.31±0.16倍。纳米包封制剂显著抑制ROS产生,效果优于未包封提取物。
差异表达基因与枢纽基因鉴定: GSE193958和GSE41684数据集分别获得1300和651个差异表达基因,与GeneCards中COPD相关靶点取交集获得120个共同基因。PPI网络包含118个节点和1178条边,筛选出TNF、CXCL-10、CXCL-1、IL-6、IL-1β、CCR2、CXCL-2和CCL4等枢纽基因。
GO和KEGG富集分析: 共同基因显著富集于炎症反应、LPS细胞应答、免疫反应、趋化因子介导信号通路等生物学过程,以及细胞因子-细胞因子受体相互作用、Toll样受体信号通路、TNF信号通路、IL-17信号通路等。
炎症因子表达抑制: 纳米包封制剂显著降低PM和LPS诱导的CXCL-2 mRNA表达达87.9%±1.26,TNF-α mRNA降至0.13±0.00倍,并显著抑制TRPC6 mRNA上调。
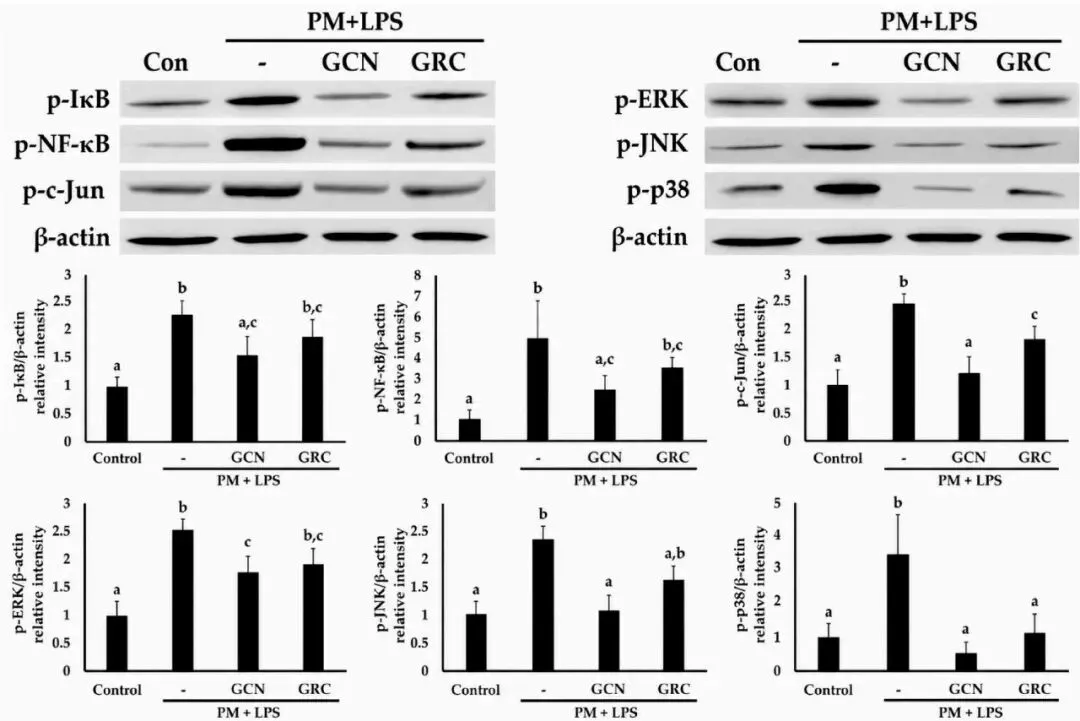
信号通路抑制: 纳米包封制剂显著抑制PM和LPS诱导的ERK、JNK、p38 MAPK磷酸化,以及p-IκB、p-NF-κB和p-c-Jun表达,效果优于未包封提取物。


研究表明,壳聚糖纳米包封显著增强了发芽黑豆培养蛹虫草提取物的稳定性和生物活性。纳米包封制剂通过调控TLR4介导的MAPK-NF-κB/AP-1信号通路,抑制TNF-α和CXCL-2等枢纽基因表达,从而减轻PM和LPS诱导的A549细胞氧化应激和炎症反应。研究鉴定出TNF-α和CXCL-2作为相关分子靶点。纳米包封不仅提高了提取物的稳定性和生物利用度,还显著增强了抗炎功效。由于本研究采用A549单培养细胞模型,无法再现肺上皮细胞与巨噬细胞或其他免疫细胞的相互作用,且未进行体内验证,未来需在共培养系统和动物模型中进一步验证其保护效果和转化适用性。

在壳聚糖纳米粒制备过程中,80%甲醇GRC提取物中形成了沉淀,表明纳米粒形成不成功(图1A)。热水GRC提取物中未形成沉淀,加入三聚磷酸钠(TPP)后离心获得了纳米粒沉淀,用于后续制备(图1B)。为了比较GRC和GCN的抗氧化活性和储存稳定性,采用TAC assay分析了三种不同样品——4 °C储存的GRC、室温储存的GRC和室温储存的GCN。结果表明,GCN表现出比GRC更高的抗氧化能力,并在室温储存20天后显示出改善的稳定性(图1C)。此外,GRC中腺苷含量为0.36 ± 0.00 mg/g(表1)。
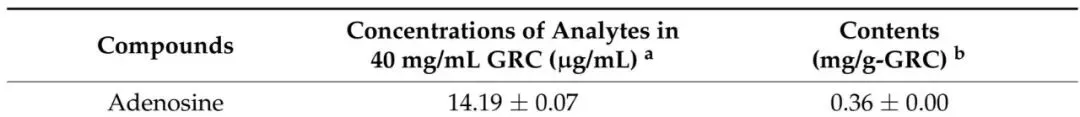
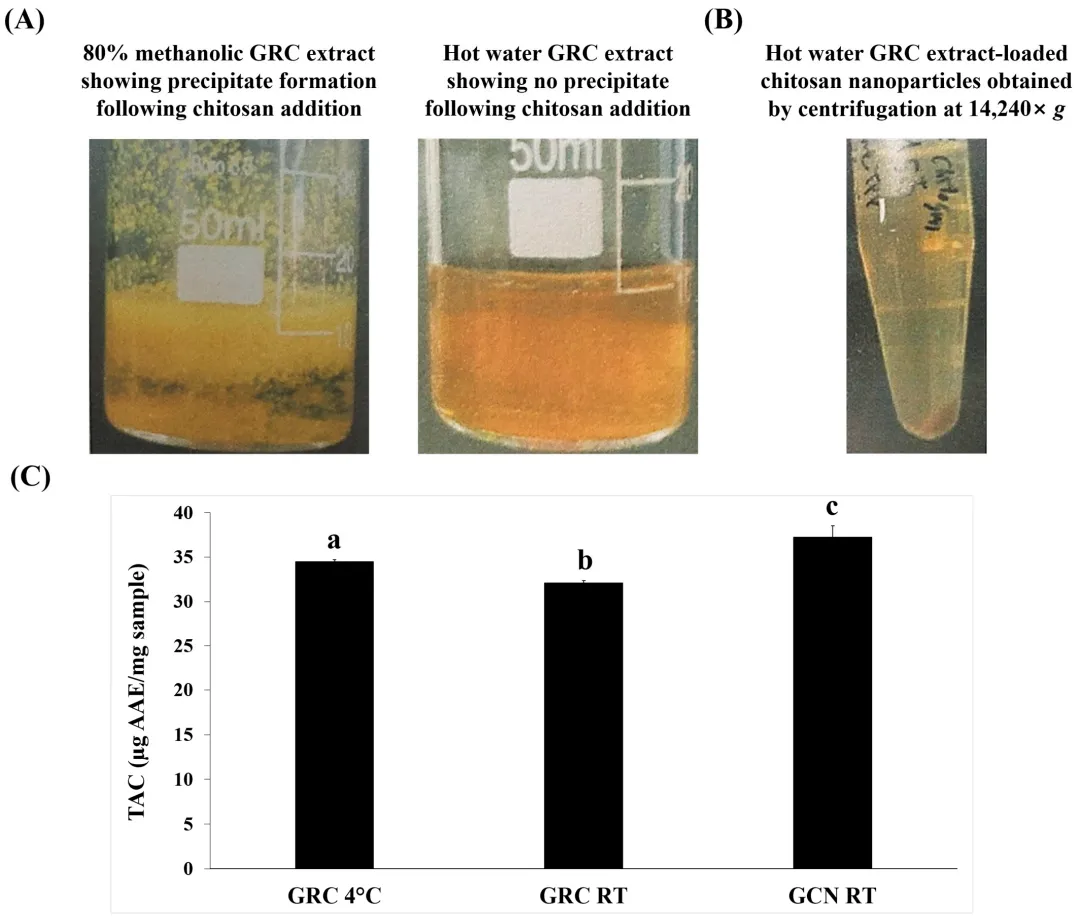
图1. 蛹虫草在发芽木豆(GRC)上生长制备的GRC包封壳聚糖纳米粒及其抗氧化活性和储存稳定性。(A) 加入壳聚糖后80%甲醇GRC提取物(左)和热水GRC提取物(右)的比较;甲醇提取物中观察到沉淀形成,而热水提取物中未检测到沉淀。(B) 通过14,240 × g离心获得的热水GRC提取物负载壳聚糖纳米粒。(C) 4°C和室温储存的GRC以及室温储存20天的壳聚糖纳米粒负载GRC(GCN)的总抗氧化能力(TAC)。TAC以每毫克样品的抗坏血酸当量(AAE)μg表示。实验重复三次,结果以平均值±标准差(SD)表示。组间统计学显著比较采用单因素方差分析(ANOVA)结合Tukey诚实显著差异(HSD)事后检验进行分析。a–c,不同字母的柱在Tukey HSD检验中p < 0.05时差异显著。
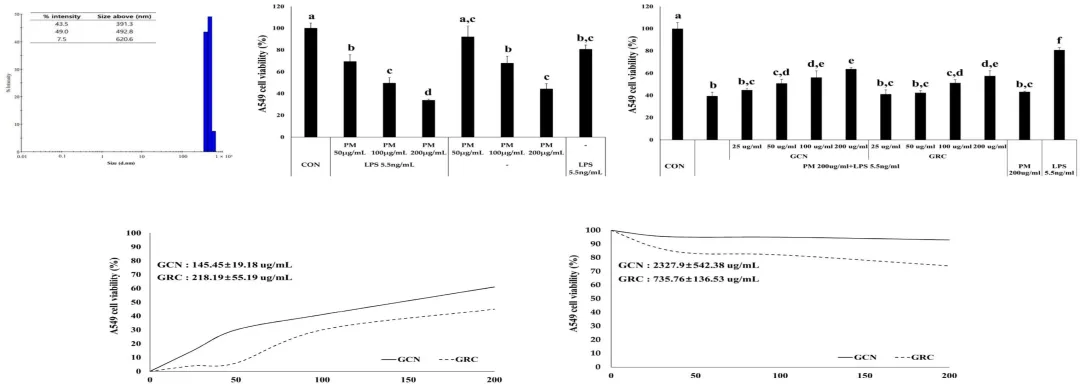
DLS分析显示PM2.5颗粒范围为391.06 ± 0.18 nm至492.50 ± 0.22 nm,平均大小为318 ± 33.7 nm(n = 3;图2A)。与PM处理组(50、100和200 μg/mL)和未处理对照组相比,PM和LPS联合处理以浓度依赖性方式显著降低A549细胞活力(p < 0.05)(图2B)。GCN显著恢复了PM和LPS共处理的A549细胞活力,并在200 μg/mL时表现出比GRC更强的保护作用(p < 0.05)(图2C)。EC50表示GCN或GRC对PM和LPS诱导的A549细胞活力降低产生半数最大保护效应所需的浓度。相比之下,CC50表示GCN或GRC单独使细胞活力降低50%的浓度。GRC在A549细胞中的EC50为218.19 ± 55.19 μg/mL,而GCN的EC50为145.45 ± 19.18 μg/mL,GCN降低了约1.5倍。此外,在测试实验条件下,GRC和GCN在A549细胞中的CC50值均估计为>200 μg/mL(图2D)。GCN在25–200 μg/mL浓度下未观察到显著细胞毒性,因此选择这些浓度用于后续实验(补充图S1)。TI反映了细胞毒性和保护功效之间的相对平衡[64,65],用于比较GCN和GRC的治疗窗。计算TI以比较GCN和GRC的相对安全性,GCN的TI为15.85 ± 1.67,GRC的TI为3.49 ± 0.97。GCN的TI超过了可行药物候选物通常接受的最低阈值10,与GRC相比增加了约4.5倍,表明对PM和LPS诱导的A549细胞活力降低的安全性和保护功效有统计学显著增强(独立样本t检验,p < 0.001),支持GCN进一步治疗开发的潜力。
为建立稳健的氧化应激模型,首先评估了暴露于PM和LPS的A549细胞中细胞内ROS产生。PM和LPS联合刺激使细胞内ROS水平较对照组显著增加11.60 ± 0.54倍,较单独PM处理细胞增加2.31 ± 0.16倍(p < 0.05),表明PM和LPS对氧化应激诱导具有协同效应(图3A,B)。基于这一验证的氧化应激条件,我们接下来研究了GCN的细胞内ROS清除活性。GCN处理显著抑制了PM和LPS诱导的细胞内ROS产生,将ROS水平降至相对于刺激组的0.20 ± 0.05倍(p < 0.05),如荧光强度降低所示。此外,GCN表现出比GRC显著更强的抗氧化活性,GCN处理细胞中的细胞内ROS水平比GRC处理细胞低0.59 ± 0.00倍(p < 0.05;图3C,D)。总之,这些结果表明PM和LPS联合暴露有效诱导细胞内氧化应激,而GCN在这些氧化应激条件下有效减弱ROS过度产生,支持其抗氧化功效。
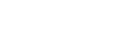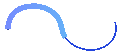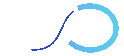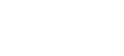
我们探索了基因表达数据集,以识别PM和LPS处理与正常样品之间的DEGs。鉴于香烟烟雾和PM化学成分的相似性,两者均已被报道在呼吸系统中诱导重叠的氧化应激和炎症反应[66–71],检查了包含CS和LPS处理样品的GSE193958(n = 5)和GSE41684(n = 8)数据集,分别产生1300个(935个上调,365个下调)和651个DEGs(432个上调,219个下调)(|log FC| > 1,校正p < 0.05)[55]。此外,从GeneCards检索COPD相关靶基因(7808个蛋白编码基因,GIFtS ≥ 30以保留功能注释的疾病相关基因)[56–58],并使用Venn图与这些DEGs取交集,识别出120个与主要PM和LPS诱导的肺部炎症状况相关的共有基因(图4A)。选择COPD作为PM和LPS触发的代表性炎症相关状况[4,72–74],包括哮喘、急性呼吸窘迫综合征(ARDS)和肺炎,因为它与GSE193958和GSE41684数据集中识别的DEGs显示出显著重叠。为了探索120个共有基因的关键功能和生物学特征,使用DAVID数据库进行了GO和KEGG通路分析。GO包含三个类别:BP、MF和CC。每个类别中前五个富集术语如图4B所示。在BP分析中,共有基因显著与炎症反应(GO:0006954)、对LPS的细胞反应(GO:0071222)、免疫反应(GO:0006955)、趋化因子介导的信号通路(GO:0070098)和肿瘤坏死因子(TNF)产生的正调控(GO:0032760)相关。在MF分析中,基因主要富集于趋化因子活性(GO:0008009)、蛋白结合(GO:0005515)、细胞因子活性(GO:0005125)、相同蛋白结合(GO:0042802)和C-X-C基序趋化因子受体(CXCR)结合(GO:0045236)。对于CC分析,基因主要参与细胞外空间(GO:0005615)、细胞外区域(GO:0005576)、质膜外侧(GO:0009897)、细胞表面(GO:0009986)和细胞外基质(GO:0031012)。KEGG通路分析显示,共有基因主要与细胞因子-细胞因子受体相互作用(mmu04060)、Toll样受体信号通路(mmu04620)、TNF信号通路(mmu04668)、IL-17信号通路(mmu04657)和病毒蛋白与细胞因子及细胞因子受体相互作用(mmu04061)相关(图4C)。
为了研究120个共有基因之间的PPIs,将它们上传至STRING数据库,最大相互作用物数量设为0,最低要求相互作用评分设为最高置信水平(≥0.9)[59]。该分析生成了一个包含118个节点和1178条边的PPI网络(图4D)。接下来,使用Cytoscape插件CytoHubba识别网络中的关键枢纽基因。通过将MCC和Degree算法应用于PPI网络,识别出前10个枢纽基因,8个重叠基因为TNF、CXCL-10、CXCL-1、IL-6、IL-1β、CCR2、CXCL-2和CCL4。这些基因可能在PM和LPS暴露诱导的COPD中发挥关键作用(图4E)。其中,TNF、CXCL-10、IL-6、IL-1β和CXCL-2在GEO2R差异表达分析中也排名前列,并参与TNF信号通路(mmu04668)。
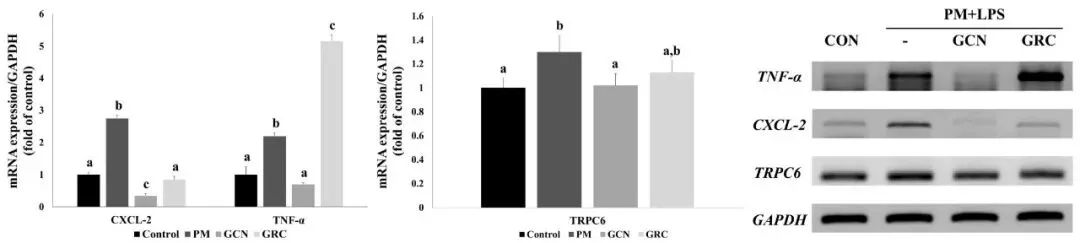
为了评估GCN在炎症条件下的抗炎潜力,用PM和LPS刺激A549细胞。与刺激组相比,GCN显著降低了PM和LPS诱导的中性粒细胞趋化剂CXCL-2 mRNA表达,降低了87.9% ± 1.26(p < 0.05),表明对趋化因子诱导具有强抑制作用。尽管GRC也减弱了PM和LPS诱导的CXCL-2 mRNA表达,但GCN在相同条件下发挥了显著更强的抑制作用。此外,GCN预处理显著减弱了PM和LPS刺激的A549细胞中TNF-α的mRNA表达(p < 0.05)。值得注意的是,TNF-α mRNA水平降至相对于PM和LPS处理组的0.13 ± 0.00倍,表明GCN对细胞因子信号传导具有强效抑制作用(图5)。鉴于TRPC6在CXCL-2介导的中性粒细胞迁移和趋化性中的既定作用,我们进一步检测了TRPC6 mRNA表达。同样,GCN显著减弱了PM和LPS诱导的TRPC6 mRNA表达上调(p < 0.05),与其对CXCL-2 mRNA表达的抑制作用一致。
基于KEGG通路分析确定Toll样受体和TNF信号通路是NF-κB、MAPK和AP-1信号级联的关键调控因子,本研究旨在阐明GCN抗炎活性的分子机制。GCN显著减弱了PM和LPS诱导的细胞外信号调节激酶(ERK)、c-Jun N端激酶(JNK)和p38丝裂原活化蛋白激酶(p38 MAPK)的磷酸化,以及NF-κB信号级联的激活,包括磷酸化κB抑制剂(p-IκB)、磷酸化NF-κB(p-NF-κB),以及AP-1信号级联,包括A549细胞中磷酸化c-Jun(p-c-Jun)(p < 0.05;图6)。尽管GCN和GRC(200 μg/mL)均有效减少了PM和LPS诱导的炎症信号传导,但GCN对MAPK(ERK、JNK和p38 MAPK)和NF-κB信号通路激活的抑制作用显著强于GRC,表明其在炎症条件下具有优越的抗炎功效(p < 0.05)。总之,这些发现表明GCN通过抑制MAPK介导的NF-κB和AP-1信号传导,在PM和LPS刺激的A549细胞中发挥抗炎作用,支持其作为功能性食品来源成分用于预防或缓解PM和LPS诱导的肺部炎症的潜力。原始未裁剪的Western blot图像见补充图S2。

更多结果和补充图表:
PMID:42451047
DOI:10.3390/nu18132043
不想做实验,没数据,还想要快速发表文章,没问题的!公共数据库就是我们的数据宝藏!没思路不用担心,作为专业的生信团队,我们很乐意为您效劳,提供研究路线设计和数据挖掘分析,扫码联系我们吧!
可向下滑动发掘更多科研秘籍!