ARTICLE · 1053823
AI不只会设计酶,现在还能给酶装上“开关”
过去几年,AI蛋白设计已经能做出新的binder、酶和蛋白开关,但真正像天然蛋白那样,把“远端信号”传到活性中心,从而开启或关闭催化功能,仍然很难。2026年9月10日,David Baker团队在bioRxiv发布 De novo design of allosterically controlled enzymes,展示了一个更接近天然变构调控的体系:他们不仅从头设计酶,还进一步设计出能够让酶在Active和Inactive两个状态之间切换的蛋白effector。
天然变构酶的关键,并不是效应分子直接堵住活性位点,而是远端结合事件改变整个蛋白的构象平衡。作者因此没有采用传统的“大结构域融合”,而是希望设计一个紧凑的单结构域酶,使其在两个非常相近的构象之间切换:Active状态中催化残基几何正确,Inactive状态中则只发生细微错位;再通过一个远离活性中心的蛋白effector,选择性稳定其中一个构象。
A图展示activator和inhibitor如何改变两个构象的能量地形;B图则完整展示“partial RFdiffusion制造inactive state → 设计effector → 多状态序列设计”的流程。
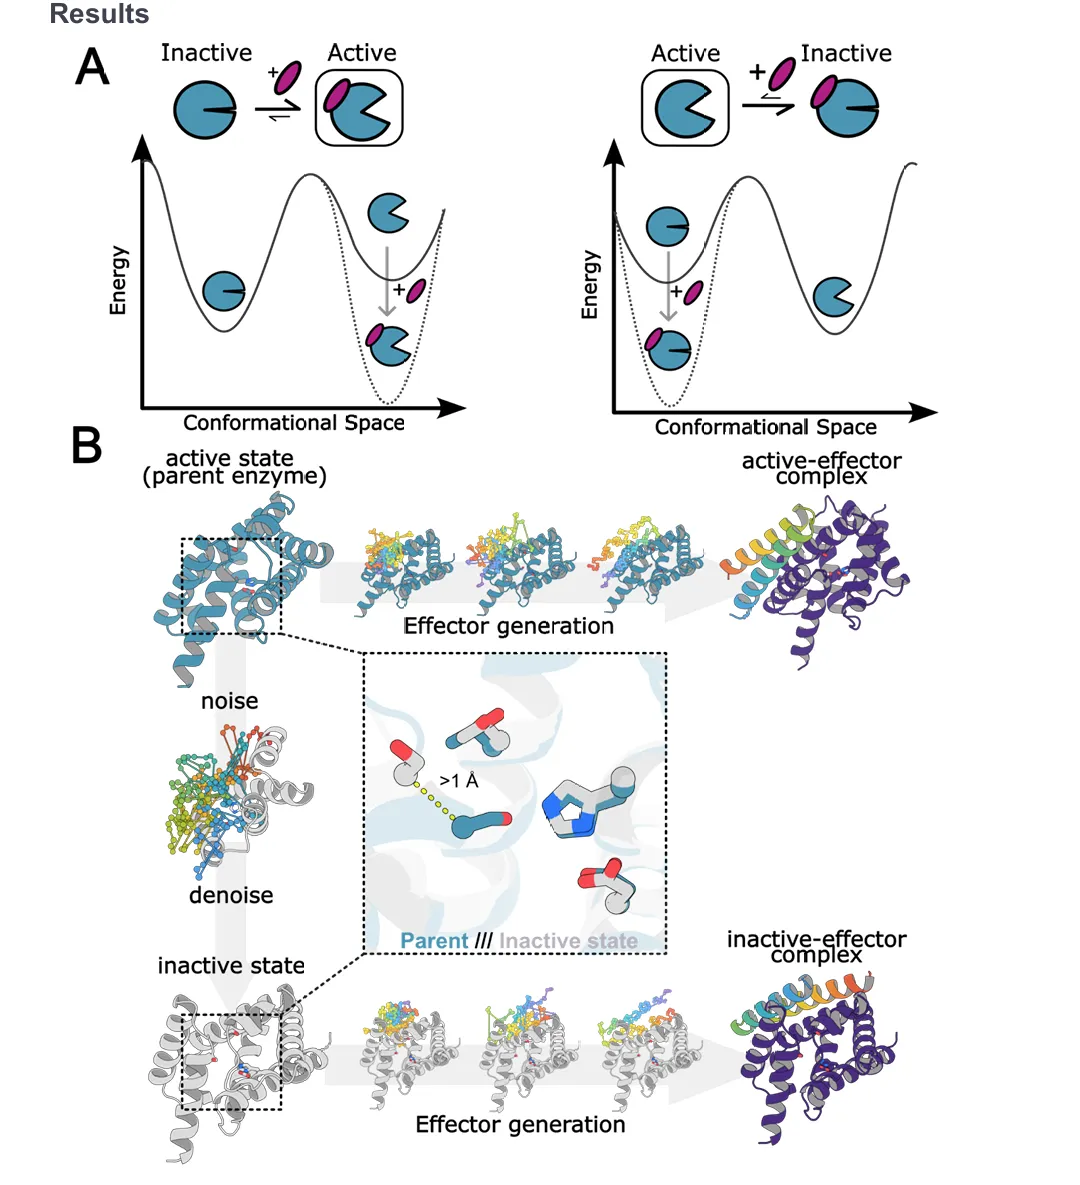
具体做法很巧。团队以一个此前设计的de novo serine hydrolase Win1 为起点,先用 partial RFdiffusion 给局部骨架加入1–3 Å的随机扰动,再重新denoise,生成与原始酶整体非常相似、但活性位点几何发生轻微变化的alternative state。随后再用RFdiffusion设计30–80 aa的小蛋白effector:如果effector偏好Active state,就做成“激活器”;如果偏好Inactive state,就做成“抑制器”。最后再用tied ProteinMPNN设计同时兼容两个酶状态和酶–effector复合物的序列。
01 先做“能被打开”的酶
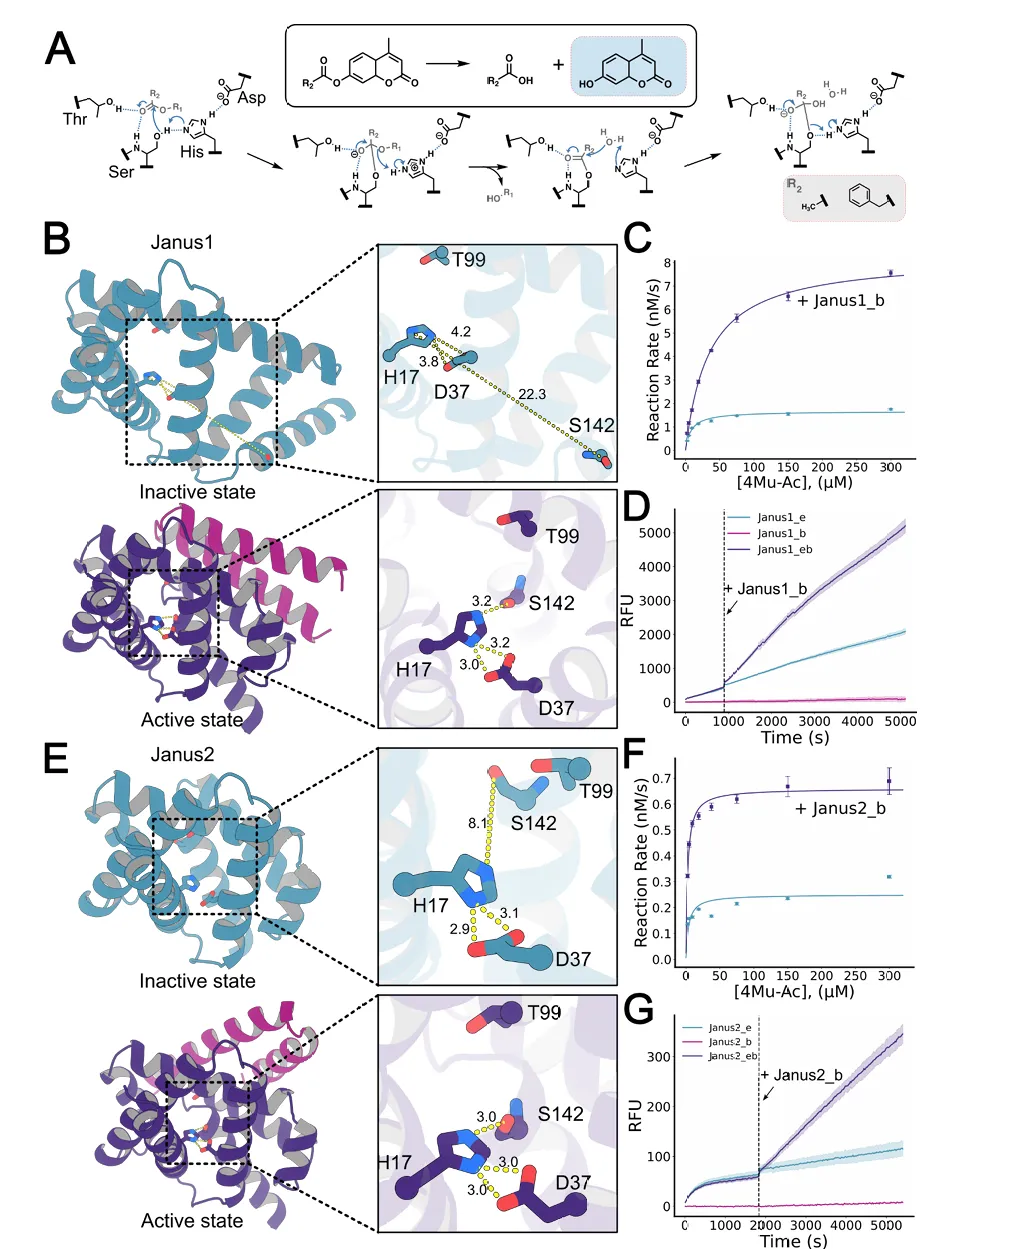
作者先测试61组activator设计,最终找到两个明确有效的系统:Janus1和Janus2。两者在没有effector时,催化Ser、His、Asp和Thr的几何关系被打乱;effector结合后,酶重新稳定到更接近活性状态的构象。
真正关键的是动力学结果。Janus1加入effector后,kcat从0.0033 s⁻¹升到0.017 s⁻¹,约提高5倍;Janus2则从0.00050 s⁻¹提高到0.0013 s⁻¹,约 2.6倍。而且当反应已经进行时再突然加入effector,催化速率也会迅速上升,变化发生在实验约21秒的混合死时间之内,说明这个人工变构开关响应非常快。
展示Janus1/Janus2从inactive→active的结构变化,以及effector加入后Michaelis–Menten曲线和实时催化速率的变化。
02 不只能打开,还能“关掉”
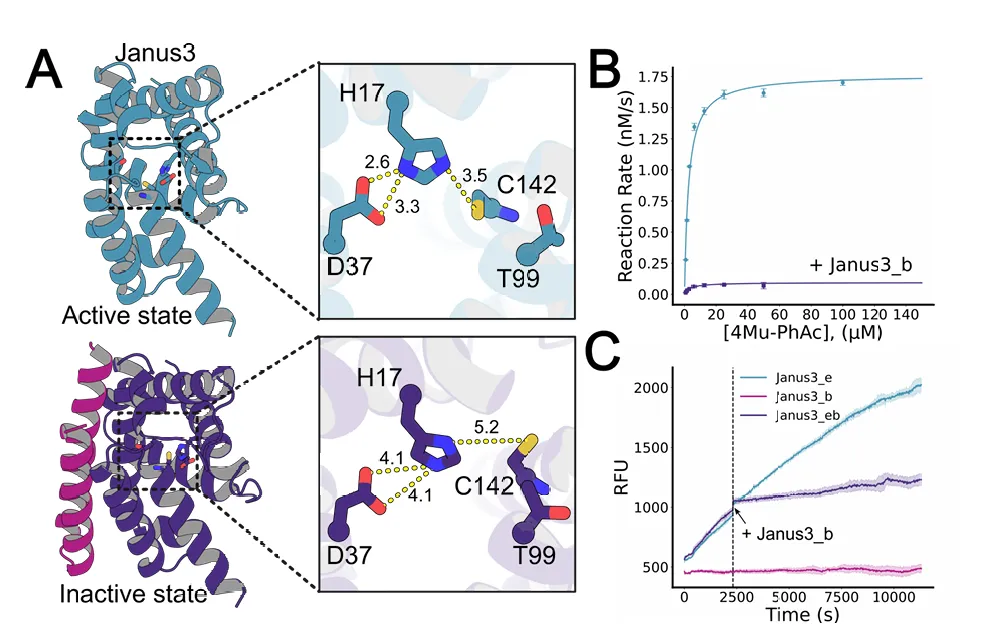
作者随后反过来设计allosteric inhibitor。这次目标是让未结合状态保持活性,而effector一结合就稳定Inactive state。24组设计中,最终筛到 Janus3。
Janus3的构象变化其实非常小,Active和Inactive状态之间的Cα RMSD只有约 1.84 Å。但就是这点轻微位移,使催化Cys142转向活性口袋之外,破坏了催化几何。加入Janus3_b effector后,kcat从约0.0024 s⁻¹降到0.0003 s⁻¹,约 下降8倍,而KM变化不明显,说明它并不是简单妨碍底物进入,而是通过改变催化残基几何来抑制反应。
左侧是Janus3活性位点从Active到Inactive的细微重排,右侧能直接看到effector加入后反应速率迅速下降。
03 最有说服力的是:晶体结构真的和设计几乎重合
如果只有酶活变化,还不能完全证明“设计的变构机制真的按预期发生”。
作者进一步解析了 Janus3–Janus3_b复合物的1.7 Å晶体结构。实验结构中,effector确实结合在远离活性位点的位置,因此抑制作用不是空间阻挡底物。更重要的是,effector–enzyme界面与设计模型的 Cα RMSD只有0.77 Å;整个复合物与inactive design model也高度一致。
这说明设计出来的不是一个“碰巧能抑制酶”的binder,而是:
在原子尺度上,真的实现了远端结合 → 构象平衡变化 → 活性中心几何改变 → 催化活性变化。
A/B展示1.7 Å晶体结构与设计模型高度吻合,D展示三个effector的SPR结合,E还展示底物与变构结合之间的耦联。
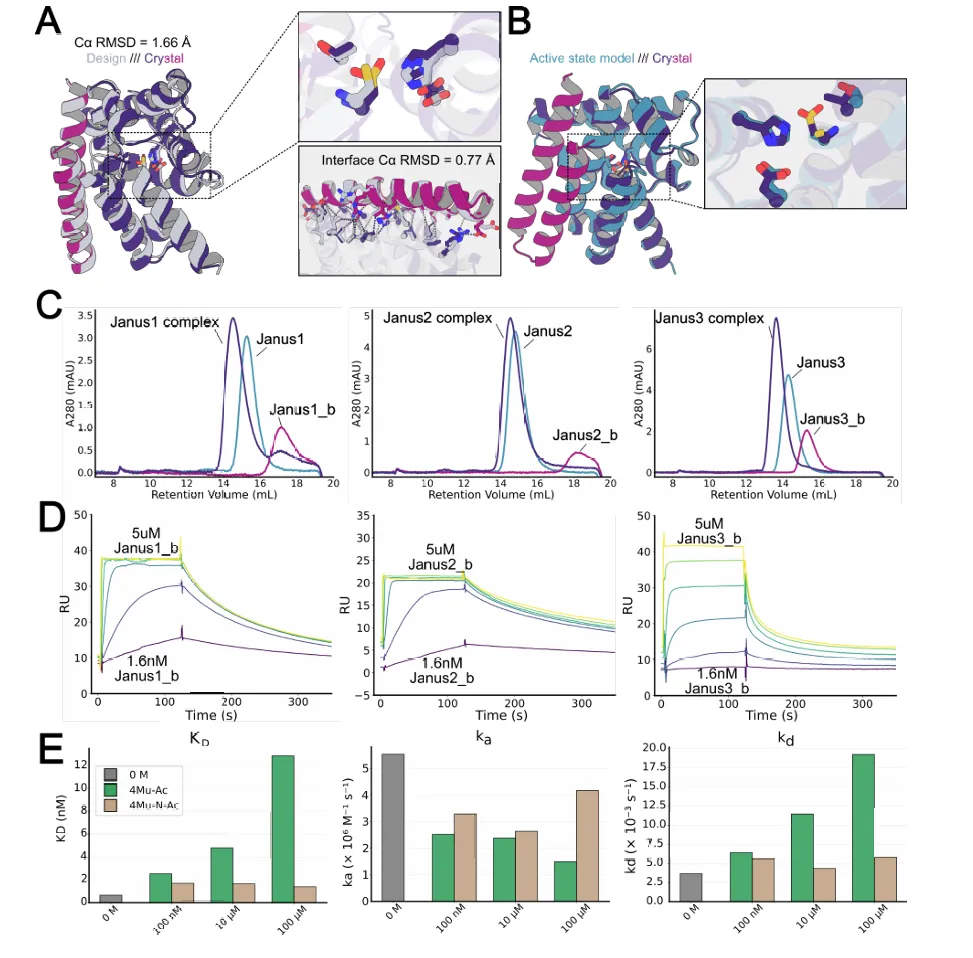
三个effector本身也具有很强的结合能力。SPR测得Janus1、Janus2和Janus3 effector的KD分别约为 2.97 nM、0.726 nM和106 nM。其中Janus1还表现出更进一步的“双向耦联”:高浓度可水解底物存在时,effector亲和力从约2.97 nM下降到13.3 nM,而不可水解底物类似物并不会产生这种变化,提示不仅“effector能影响催化”,催化过程反过来也能影响effector结合。
写在最后
这篇真正重要的地方,不只是“AI又设计出了一种新酶”,而是AI蛋白设计开始从:
设计结构
→ 设计功能
进一步走向:
设计“功能如何被调控”。
过去设计一个酶,目标通常是让它“会催化”;现在则开始设计它:
什么时候催化、什么时候停止、被谁打开、被谁关闭。
更值得注意的是,这种调控不是靠拼接大型天然结构域,而是通过非常小的构象变化实现。Janus3中仅约1–2 Å尺度的位移,就足以造成约8倍的催化变化,这种机制已经越来越接近天然allostery。
作者认为,这种方法未来可以用于代谢工程、蛋白传感器、可控生物催化,甚至分子机器和人工马达:让一个外部信号通过effector结合直接控制酶活,或者让催化循环进一步驱动蛋白的结合与解离。
当然,这篇目前还是 bioRxiv预印本,尚未经同行评议,而且当前成功率仍然不高:61组activator设计中得到两个明确系统,24组inhibitor设计中得到一个Janus3。作者也承认,对两个状态自由能差、构象预测以及multistate design仍有较大优化空间。
论文:De novo design of allosterically controlled enzymesAlexander Shida et al., David Baker团队,bioRxiv,2026年9月10日。
往期好文推荐

往期课程推荐