ARTICLE · 1042240
科研进展 | AI从头设计蛋白组装体,构建高性能人工RNA递送载体STV C8
摘要
病毒经过数十亿年进化,演化出高效的遗传物质转运能力,多数病毒趋同进化形成二十面体、螺旋对称的蛋白衣壳。生成式AI蛋白设计工具能够创造自然界不存在的全新蛋白结构。
本研究将天然功能蛋白结构域与AI生成的人工蛋白组装体结合,从头创制出100余种人工 RNA转运载体STV(synthetic transfer vehicles)。筛选得到最优载体STV‑C8,具备非天然平面C8对称结构,RNA递送效率比现有主流递送系统高出数个数量级。
通过融合计算设计的肽段结合模块,可以对STV‑C8实现细胞靶向重编程;该载体可以向多种细胞模型递送治疗型RNA货物。本工作实现小鼠体内近单细胞分辨率的生物分布检测,验证体内安全性;并且在病人来源细胞以及猪模型上完成杜氏肌营养不良DMD的CRISPR基因编辑治疗验证。
本研究证明,借助生成式AI设计人工蛋白组装体,可以突破天然蛋白多样性的局限,理性构建具备预期性能的RNA转运系统。
1
研究背景介绍
进化压力驱使生物系统形成局部最优解;病毒是高效的基因转移载体,但尽管多样性极高,多数病毒趋同演化出类似衣壳结构(二十面体、螺旋对称),用于包裹保护基因组。病毒衣壳的诸多特性是为原始生态环境筛选而来;当被改造为实验室 / 治疗载体时,部分进化获得的特征可能冗余甚至有害。
新一代生成式AI蛋白设计模型,可以创造物理上可行、自然界并不存在的蛋白结构,从而能够利用非天然的蛋白质构象来调控进化轨迹。 本研究思路:将天然功能蛋白域和AI生成合成蛋白组装体组合,从头构建人工RNA转运载体STV(synthetic transfer vehicles)。STV拥有区别于天然病毒载体的独特对称、开放结构、低复杂度组装蛋白。建立多维高通量筛选平台,筛选得到C8环对称的STV‑C8最优载体。
STV‑C8可融合计算设计的肽结合模块重编程细胞嗜性;RNA递送效率远超天然病毒样颗粒以及临床脂质纳米颗粒LNP;可递送多种治疗RNA;完成小鼠体内生物分布、安全性验证;并在病人细胞、大动物猪上开展杜氏肌营养不良DMD的CRISPR编辑治疗验证。
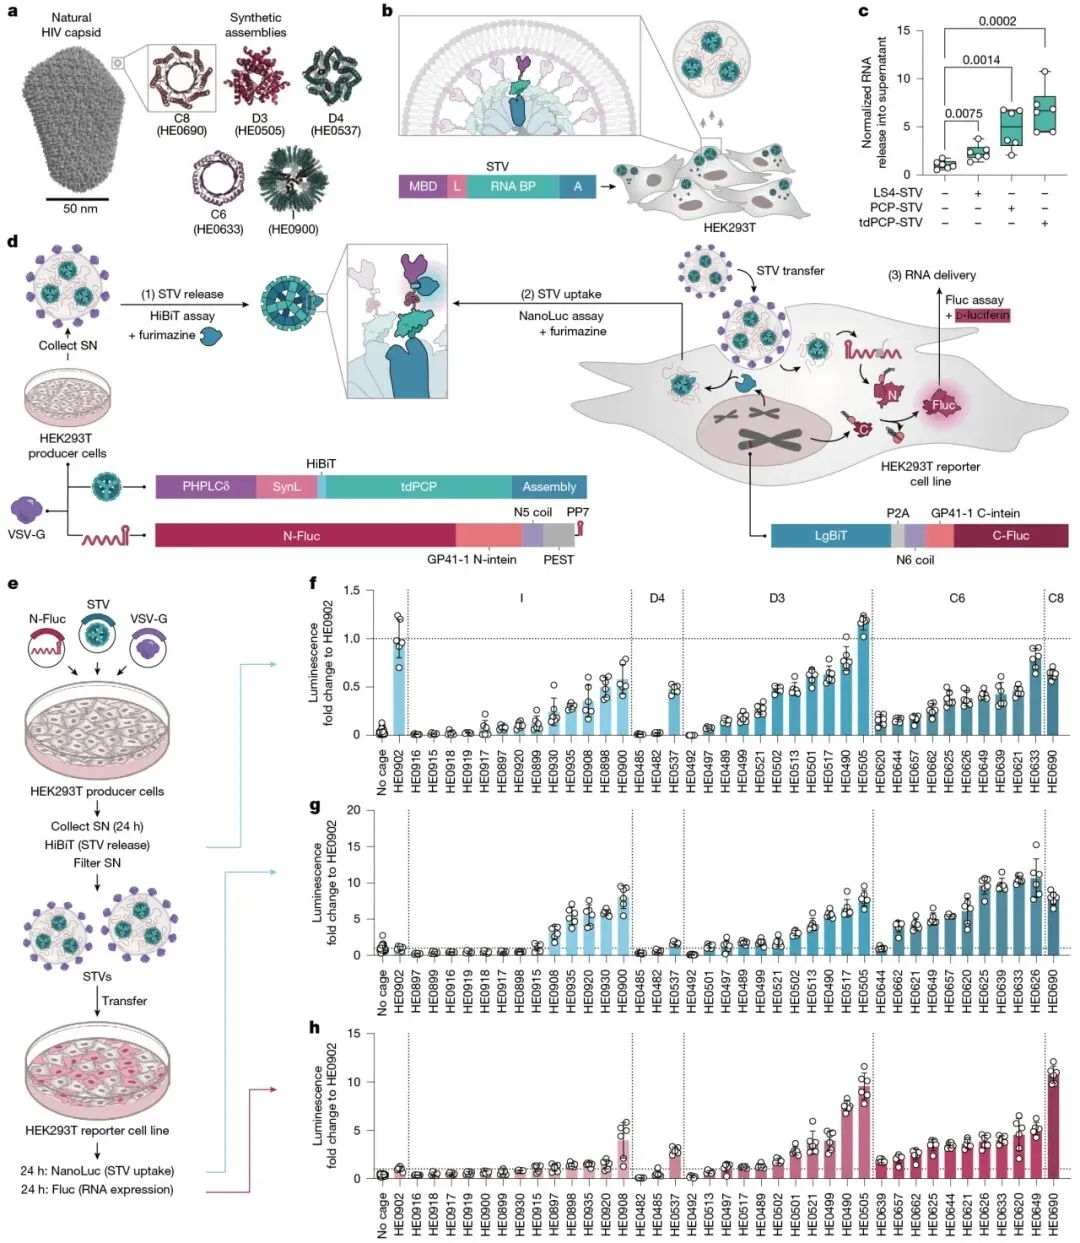
△ 图1. 自下而上组装STV RNA载体的设计与筛选。
2
实验结果
2.1. 合成组装载体的设计与高通量筛选
利用RFdiffusion生成大量不同对称类型(二十面体、二面体、环对称)人工蛋白组装体。STV构建策略:AI组装骨架融合三类功能模块:膜结合域membrane-binding domain、晚期出芽域late-budding domain、RNA结合域RNA-binding domain。 以二十面体HE0902为初始骨架,膜结合域选用大鼠PLCδ的PH结构域;人工合成SynL晚期出芽基序(出芽效率优于天然HIV‑p6);加入高亲和力RNA结合蛋白用于RNA包装。 构建细胞筛选系统:HiBiT标签定量STV释放;报告细胞稳定表达LgBiT检测载体摄取;分裂萤火虫荧光素酶split‑Fluc重组定量测定mRNA递送效率。
共筛选39种不同对称骨架的STV;非天然二面体、环对称骨架性能整体优于经典二十面体骨架;环对称载体单位蛋白的RNA装载能力更高。性能最优为C8对称HE0690骨架。 进一步以HE0690为骨架,利用FoldSeek挖掘跨物种膜结合域,筛选得到美洲黑熊来源UaPHPLC的PH结构域,膜定位、RNA包装递送性能最优;完整载体命名STV‑C8。
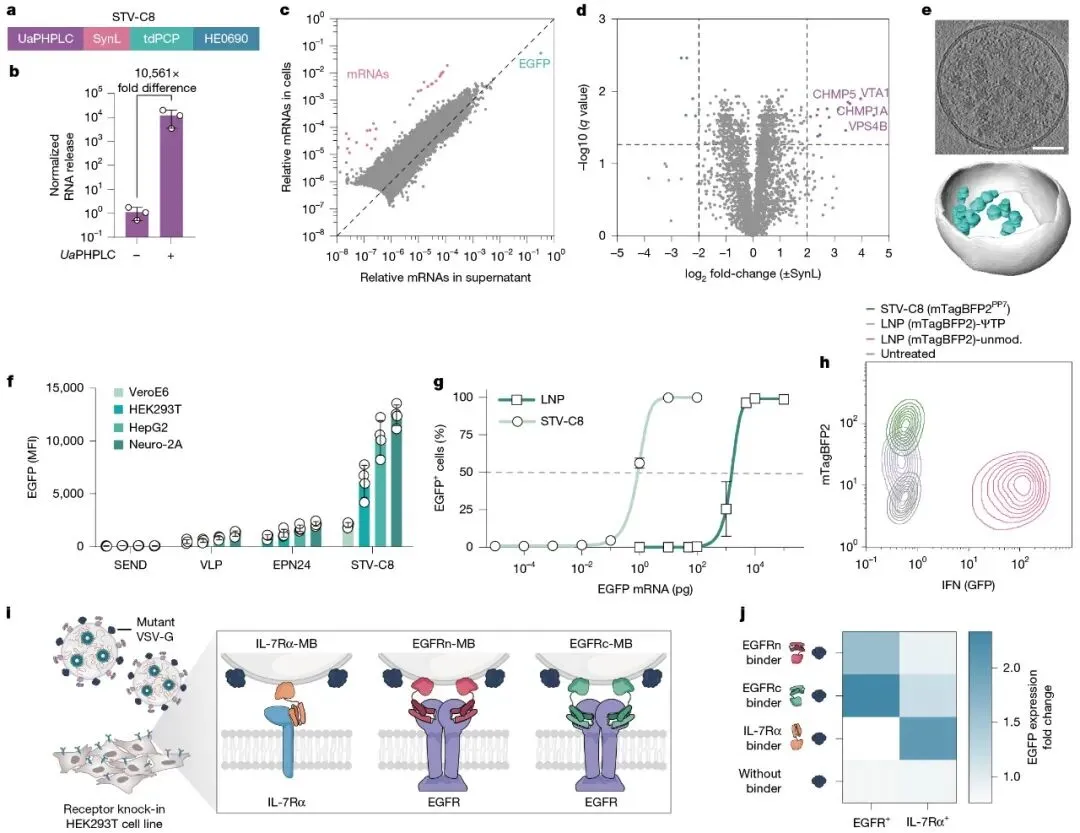
△ 图2. STV‑C8 RNA 载体的表征与靶向重编程。
2.2. STV‑C8载体理化、性能表征与靶向改造
1)与缺失膜结合域对照相比,STV‑C8使上清中货物RNA富集10000倍以上。
2)RNA‑seq、蛋白质组:发现STV-C8颗粒中EGFP载荷RNA的富集程度很高,部分mRNA被排除在外,此外,与出芽过程相关的ESCRT蛋白显著富集。
3)冷冻电子断层cryo‑ET:STV‑C8诱导产生50‑300 nm囊泡,峰值粒径约110 nm;囊泡内部存在22 nm左右的人工蛋白组装颗粒;组装体排布在囊泡膜内侧,RNA结合结构朝外,RNA货物结合在组装体表面,并非包裹进蛋白壳内部,因此无严格RNA长度包装上限。
4)性能对标:对比VLPs、EPN、SEND等基因编码载体,以及临床级LNP(BNT162b2所用ALC‑0315脂质);同等表达水平下,STV‑C8递送效率比LNP高出1000‑10000倍。
5)免疫原性:细胞内转录产生、STV‑C8包装的mRNA不会激活IFNβ干扰素通路;而LNP递送未修饰体外转录mRNA会强烈触发天然免疫。
6)靶向重编程策略:使用受体结合缺陷的突变VSV‑G(保留内体逃逸),针对EGFR或IL-7Rα的计算设计肽结合蛋白,通过将其与信号肽及跨膜结构域融合,添加到STV-C8颗粒中,并在STV-C8(EGFP)表达细胞中,将这些构建体与盲测的VSV-G(K63Q/R370Q)共同表达,可特异性靶向EGFR、IL‑7Rα受体细胞,实现细胞类型选择性递送。
7)其它特性:4 ℃至少稳定保存一周;1‑10 kb范围内mRNA包装无明显尺寸限制;未检测到载体诱导细胞凋亡。
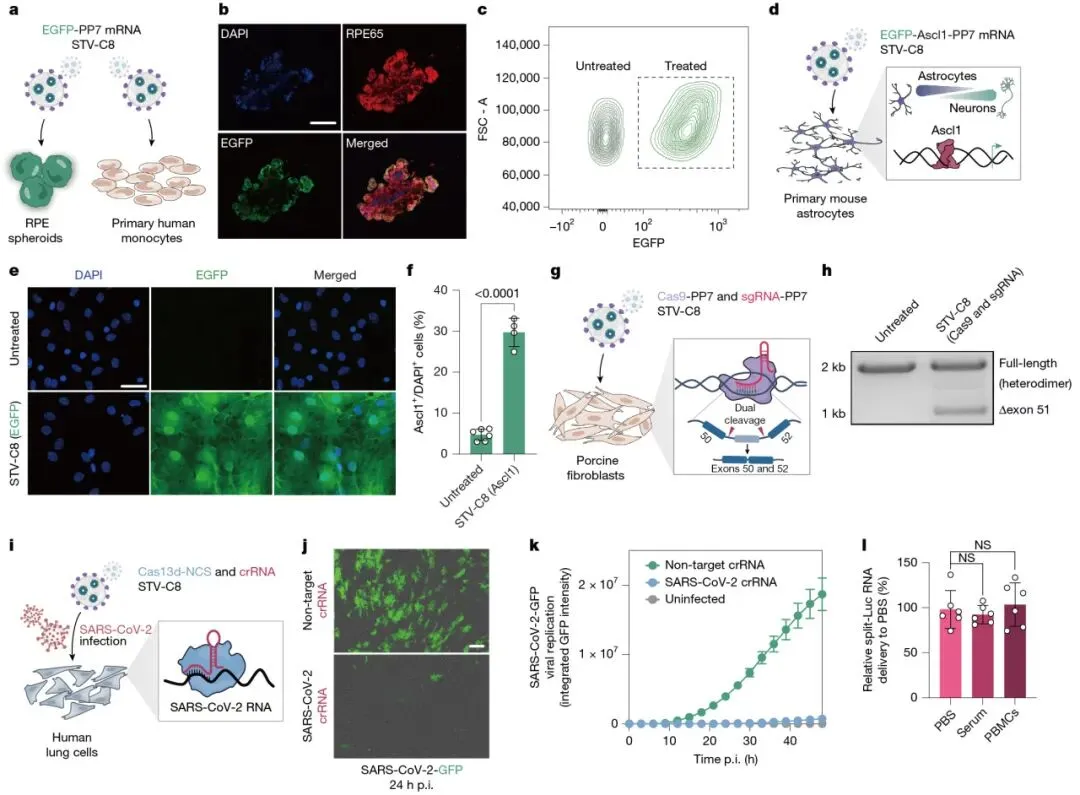
△ 图3. STV‑C8向多种细胞模型递送各类RNA货物。
2.3. 多种细胞模型的货物RNA递送验证
在多物种多种原代/类器官模型开展递送测试:
1)iPS来源RPE视网膜色素上皮类球体、人原代单核细胞:可穿透类球体多层细胞,高效表达报告基因。
2)小鼠原代星形胶质细胞:递送转录因子Ascl1 mRNA,诱导> 30%细胞表达ASCL1蛋白。
3)CRISPR基因编辑应用:STV‑C8共递送Cas9‑mRNA+双sgRNA;在猪成纤维细胞实现dystrophin基因51号外显子敲除(DMD杜氏肌营养不良治疗策略),编辑效率约40%。
4)抗病毒应用:递送Cas13d‑NCS以及新冠crRNA;在感染SARS‑CoV‑2‑GFP的人肺细胞中几乎完全抑制病毒复制。
5)稳定性:STV‑C8与人全血、血清孵育,递送活性无明显下降。
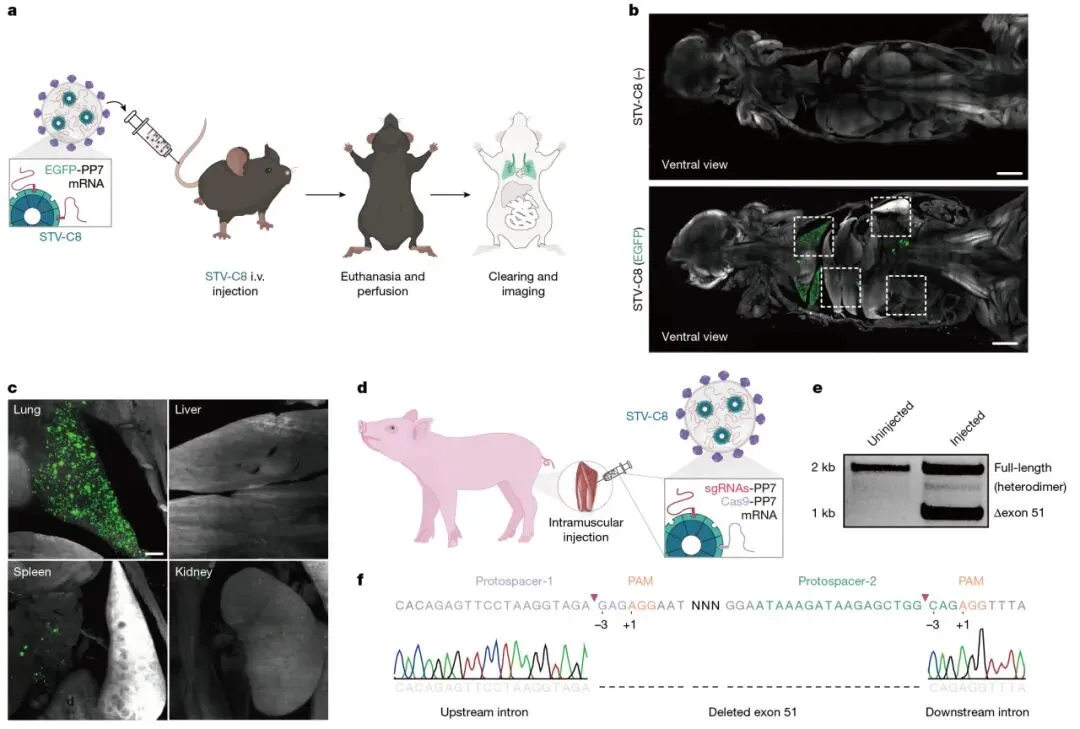
△ 图4. STV‑C8在小鼠、大动物猪模型的体内生物分布与基因编辑货物递送。
2.4. 动物体内实验:小鼠生物分布、猪DMD基因编辑大动物验证
1)小鼠静脉注射STV‑C8‑EGFP,全身组织透明化光片显微镜(近单细胞分辨率):主要富集表达在肺;肝脏几乎无信号(区别于多数脂质纳米颗粒);未检测到明显毒性、免疫炎症反应。
2)大动物猪局部肌肉注射STV‑C8 (Cas9/sgRNA):成功实现dystrophin基因51号外显子敲除,测序验证编辑产物;局部注射无显著免疫应答。
3)病人来源DMD骨骼肌细胞(Δ52突变背景),STV‑C8处理后成功删除51号外显子,恢复阅读框,验证临床转化潜力。
3
讨论
本工作利用RFdiffusion生成式AI蛋白设计,完全从头构建人工RNA转运载体STV,筛选得到最优STV‑C8。STV‑C8不模仿天然病毒衣壳的经典二十面体/螺旋结构;采用非天然C8环对称蛋白组装体,RNA结合在组装体外表面,摆脱病毒衣壳的包装尺寸限制。载体RNA递送性能显著优于多种生物载体、临床LNP。可兼容报告mRNA、转录因子、CRISPR编辑系统、Cas13抗病毒RNA等多种货物;实现细胞靶向重编程;完成细胞、小鼠、猪多层面验证。
技术启示:当前AI蛋白生成工具擅长产出静态对称蛋白复合体,但设计动态蛋白、酶活蛋白仍存在短板。未来结合分子动力学、多模态大模型,可进一步拓展De Novo Protein Design解决生物医学问题的边界。
研究局限:
1)本研究猪实验仅做局部肌肉注射;距离DMD全身系统性给药仍有待后续开发靶向改造。
2)STV体内细胞嗜性、循环稳定性、免疫原性还需要更多动物批次评估。
3)STV‑C8生产依靠哺乳动物细胞质粒转染;未来需要开发规模化生产工艺。
本工作证明:绕过进化约束,AI从头设计蛋白组装体,是开发下一代核酸递送载体的全新可行路线。
4
材料与方法
4.1. 分子克隆
全部载体使用标准分子克隆;PCR扩增、限制性酶切、基因片段合成;NEBuilder组装;DH5α感受态转化;质粒小提/大提;Sanger测序验证;全部载体序列见补充表。
4.2. 质粒转染
不同培养板按密度铺细胞;JetOptimus转染试剂;不同培养板体系对应DNA用量。
4.3. 细胞培养与细胞系构建
HEK293T常规培养:
1)split‑Luc报告细胞:AAVS1安全位点定点整合LgBiT‑P2A‑C‑split‑Fluc,嘌呤霉素筛选。
2)EGFR、IL‑7Rα单/双受体敲入细胞:AAVS1位点整合对应受体,嘌呤霉素/杀稻瘟菌素筛选。
4.4. STV介导RNA释放定量
收集来自STV释放的细胞上清液,0.45 μm滤膜过滤;提取总RNA;一步法RT‑qPCR,特异性探针定量EGFP货物mRNA。
4.5. AI设计对称寡聚体筛选
RFdiffusion产出对称寡聚蛋白,排除D2对称;共39种骨架,C端融合STV功能模块,进入高通量筛选。
4.6. FoldSeek挖掘膜结合域
以大鼠PHPLCδ(PDB:1MAI)为模板,FoldSeek数据库检索;分为其它物种、人源、宏基因组蛋白三类;候选序列合成,融合到STV骨架N端,进入释放‑摄取‑递送三维筛选。
4.7. STV高通量筛选(HiBiT/split‑Fluc报告)
96孔板高通量转染;HiBiT发光检测上清载体释放;上清加到split‑Luc报告细胞;检测NanoLuc信号评价载体摄取;检测萤火虫荧光素酶信号评价mRNA递送。对照蛋白用于信号绝对定量校准。
4.8. 流式细胞术验证EGFP‑mRNA递送
收集STV生产细胞上清,浓缩;加到靶细胞;StemPro Accutase分离细胞,流式检测EGFP阳性细胞比例。
4.9. C8对称新组装体生成
RFdiffusion开源脚本,A100GPU计算,生成更多C8对称新骨架。
4.10. 亚细胞定位免疫荧光
HA标签标记STV组件;固定透化;抗‑HA一抗、Alexa荧光二抗;荧光显微镜成像,观察膜定位。
4.11. 包装容量检测
共转染恒定EGFP‑PP7,搭配不同长度mRuby3‑PP7(1‑10 kb);STV递送后流式检测双荧光表达,评估包装上限。
4.12. 超速离心纯化、冷冻电镜断层扫描cryo‑ET
收集细胞上清;蔗糖/碘克沙醇密度梯度超速离心纯化载体;负染、冷冻制样;冷冻断层扫描采集,AlphaFold3模型辅助颗粒分割与尺寸分析。
4.13. 蛋白质组、转录组测序
纯化STV‑C8囊泡;有SynL出芽域/无SynL对照组;质谱蛋白质组;生产细胞与STV‑C8的mRNA转录组比较。
4.14. 靶向载体构建:突变VSV‑G+minibinder微型结合蛋白
信号肽‑跨膜域融合AI设计EGFR / IL‑7Rα微型结合蛋白minibinder;搭配受体结合缺陷VSV‑G (K63Q/R370Q) 共转生产细胞;囊泡出芽时将结合蛋白展示在囊泡表面,实现靶向。
4.15. 多种原代细胞、类器官模型实验
iPS‑RPE类球体、人原代单核细胞、小鼠原代星形胶质细胞;Cas13d抗新冠病毒感染模型;病人来源DMD骨骼肌细胞;完成转导、编辑、成像检测。
4.16. 动物实验
小鼠:尾静脉STV‑C8注射;vDISCO全身组织透明化;光片显微镜成像;组织病理学、免疫炎症评价安全性。
猪:肌肉局部多点注射STV‑C8 (Cas9/sgRNA);取材,PCR+测序验证dystrophin外显子51敲除;局部组织炎症评估。
4.17. 统计学分析
生物学重复n见对应图注;t检验、方差分析;荧光、生存、编辑效率统计;GraphPad完成统计绘图。
原文链接
▷ 阅读原文:
https://nature.com/articles/s41586-026-10952-3
免责声明:本号所有文章均来源于已发表科学研究论文,人工/AI翻译而成,内容仅用于科学推广与普及,如涉及版权问题,翻译有误或者其他问题,请于公众号留言,我们将及时做出修改与调整,翻译不易,敬请体谅。
科研投稿活动推荐
▽
关注作者
点赞
收藏
分享