ARTICLE · 1151737
高中生物疑难问题讲稿:原核与真核基因结构差异——从“连续”到“断裂”的进化智慧
高中生物疑难问题讲稿:原核与真核基因结构差异——从“连续”到“断裂”的进化智慧
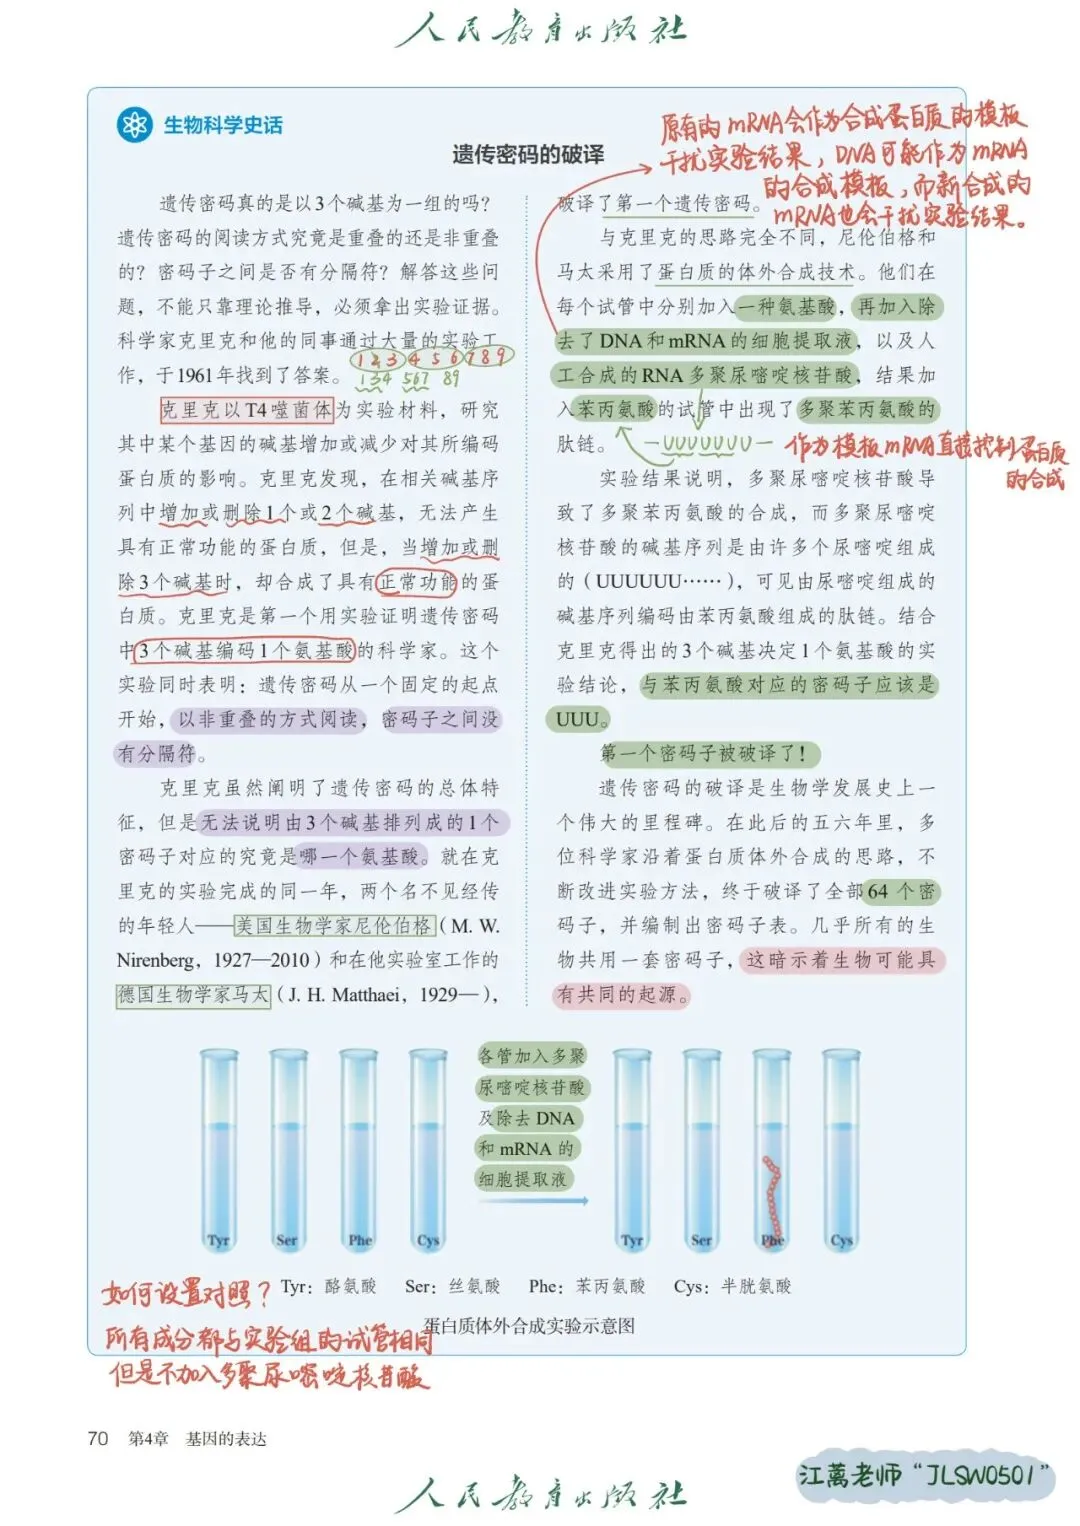
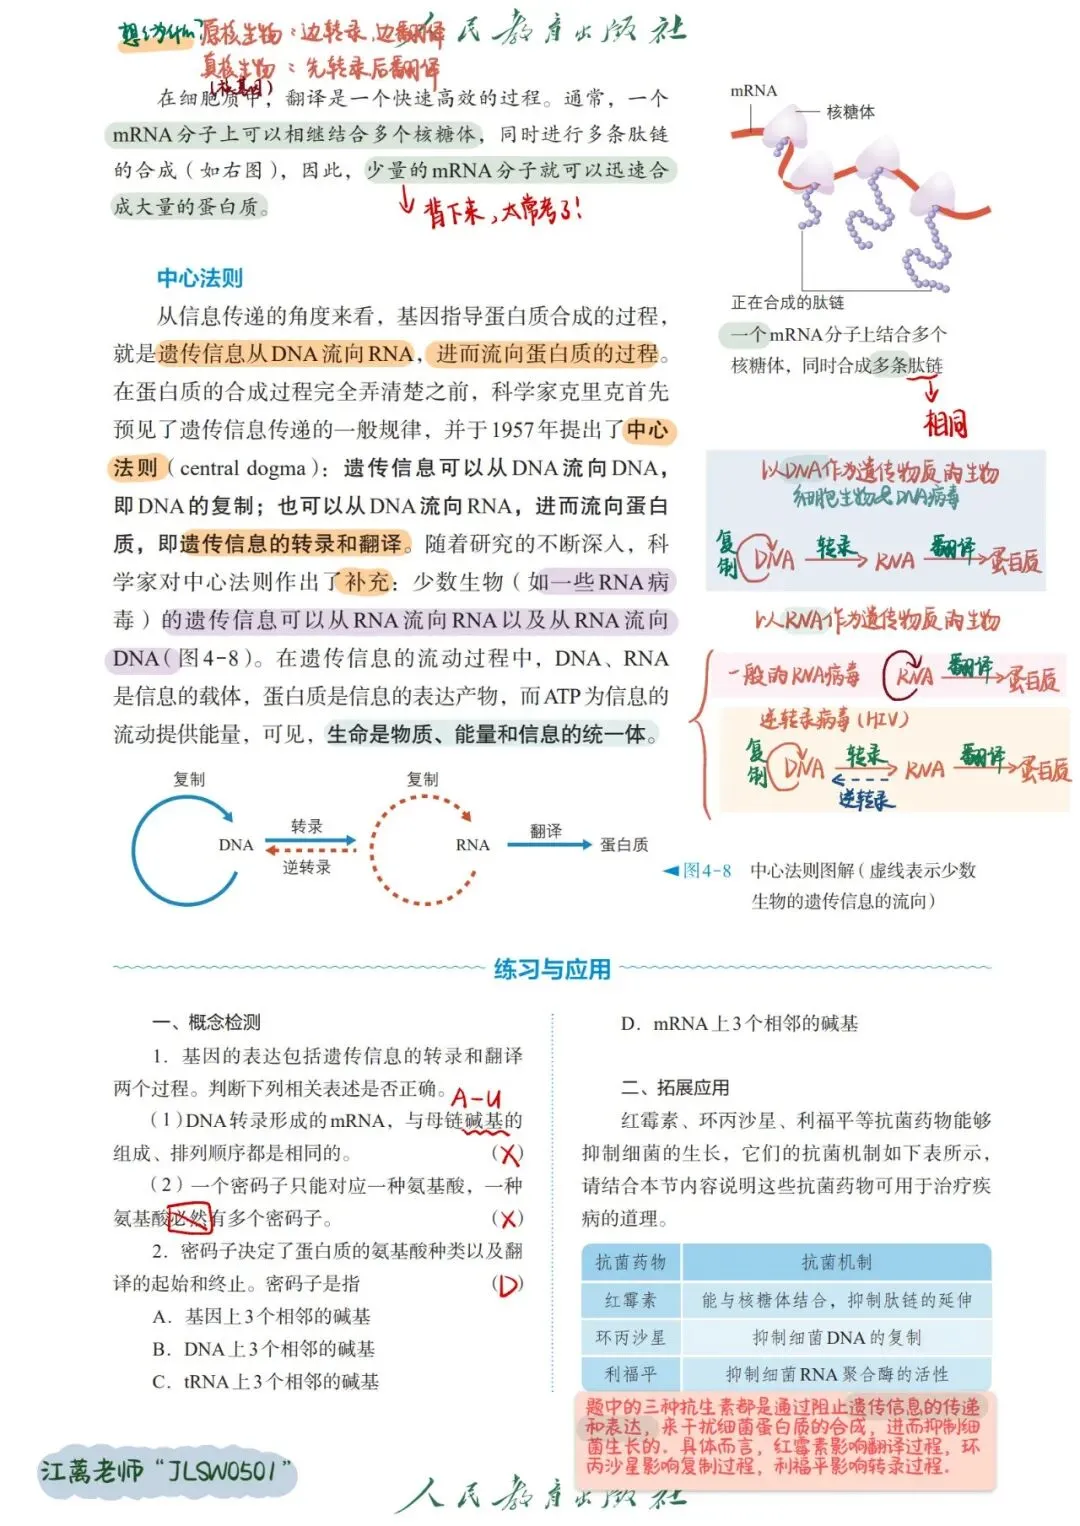
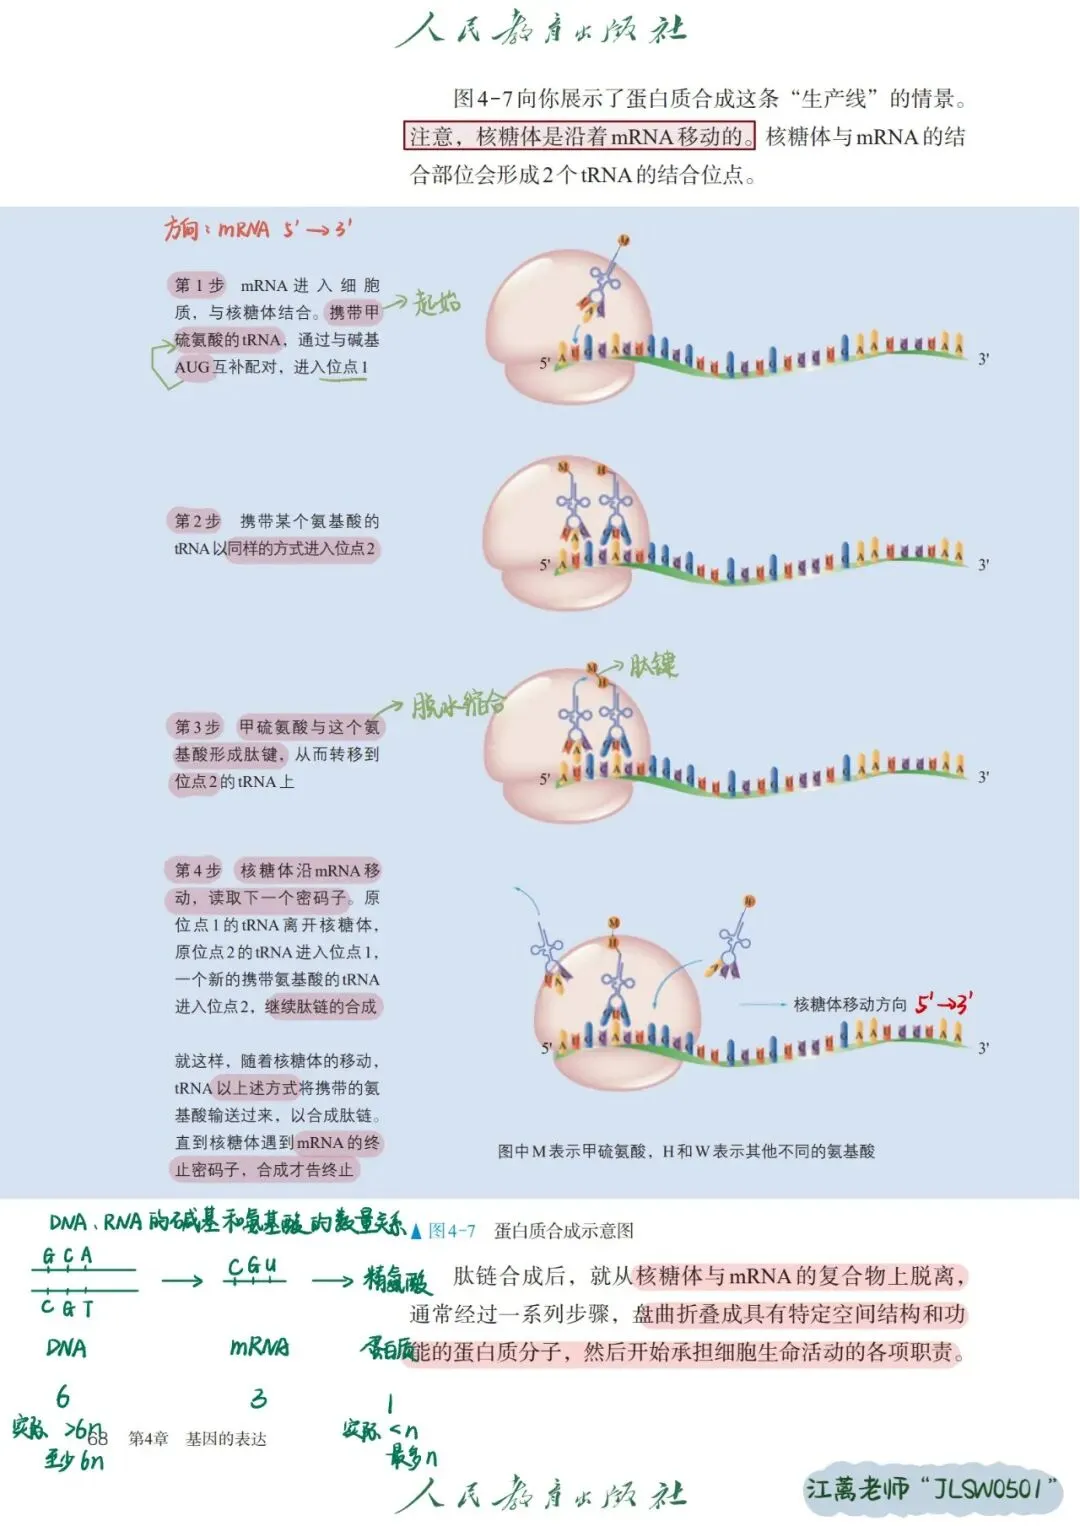
开场导入
同学们,今天这节课我们来攻克高中生物中一个非常核心、但也最容易让人感到困惑的问题——为什么原核生物的基因是连续的,而真核生物的基因却是断裂的?
我在答疑的时候经常遇到这样的场景:“老师,课本上说真核生物的基因有外显子和内含子,那内含子到底有什么用?既然它不编码蛋白质,为什么进化没有把它淘汰掉?”还有同学问:“老师,原核生物的基因是连续的,那它怎么调控基因表达?RNA聚合酶结合在哪里?”
这些问题问得非常好。这说明大家已经不满足于死记硬背“原核连续、真核断裂”这个结论,而是开始思考背后的生物学逻辑了。今天,我们就从大学分子生物学和生物化学的视角,把原核与真核基因结构的差异、RNA聚合酶的作用、非编码区的功能、外显子与内含子的本质以及内含子的价值,一个一个彻底讲清楚。
一、原核与真核基因结构的根本差异
1.1 原核基因:紧凑的“经济学”策略
我们先来看原核生物的基因结构。原核生物(以细菌为代表)的基因遵循的是“经济学”策略——每一个碱基都物尽其用,没有冗余。
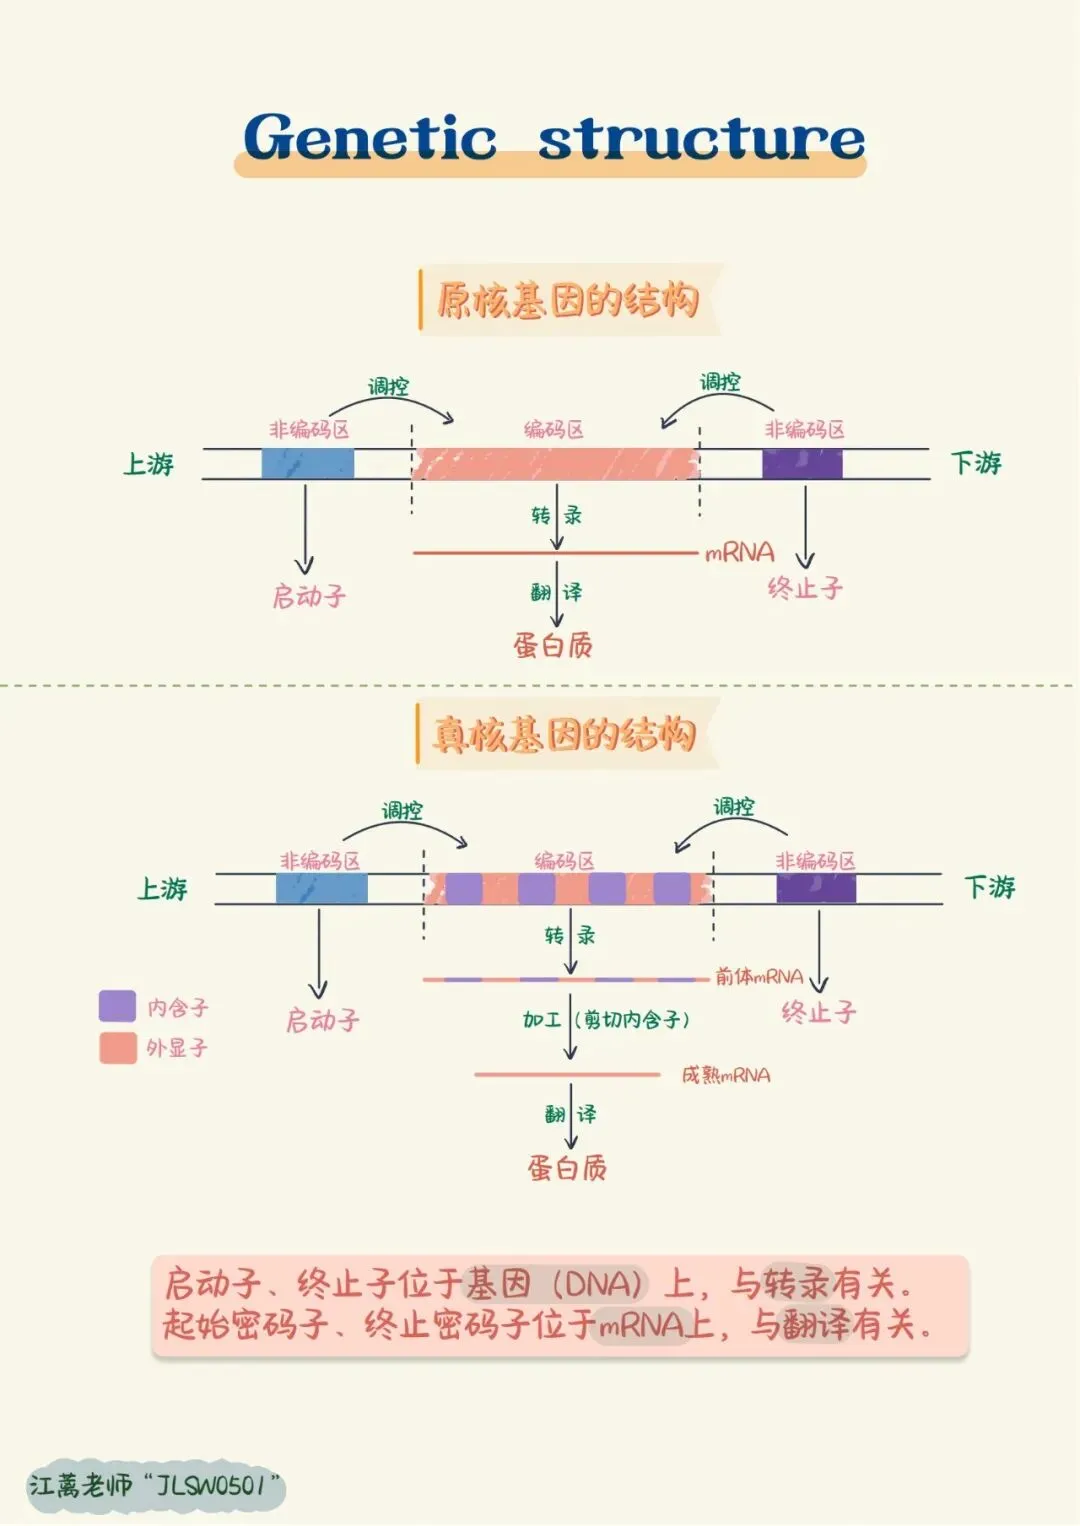
原核基因的编码区是连续的,没有内含子。更重要的是,功能相关的几个基因往往串联在一起,形成一个操纵子结构,由一个共同的启动子调控,转录产生一条多顺反子mRNA,一次转录可以同时表达多个蛋白质。
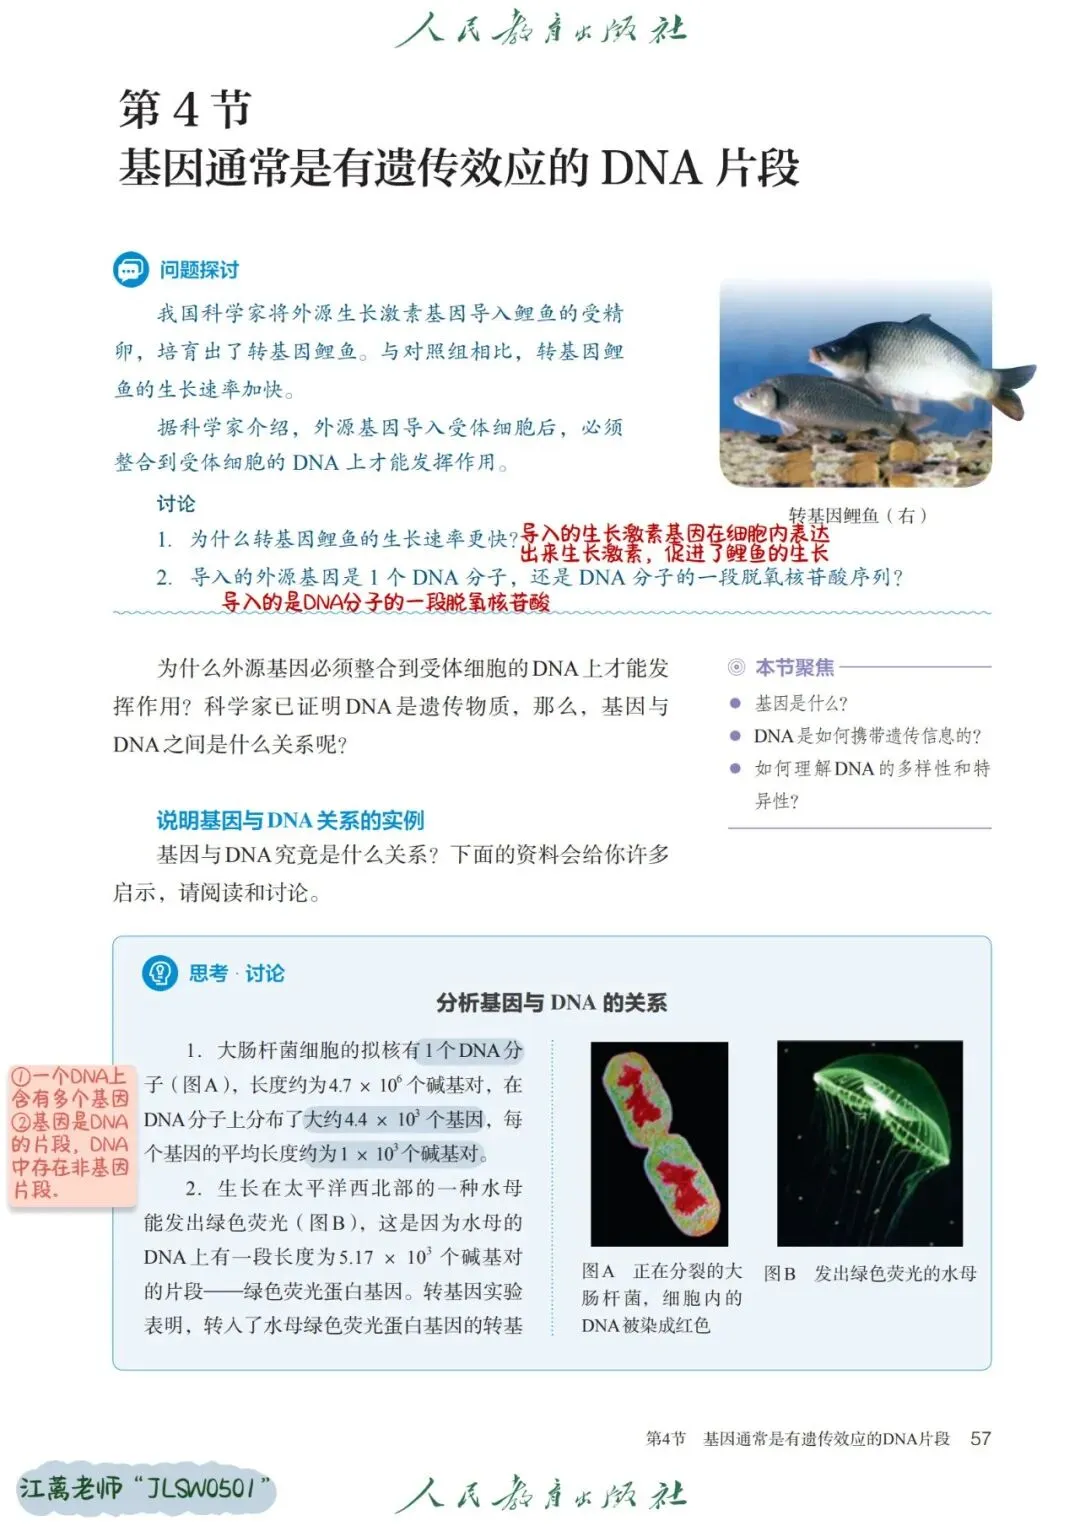
这种“经济学”策略带来了无与伦比的适应速度和代谢效率。大肠杆菌的基因组大约有460万个碱基对,编码约4400个基因,平均每个基因只占用约1000个碱基对。基因组极其紧凑,几乎没有“多余”的DNA。
1.2 真核基因:模块化的“复杂性”策略
再来看真核生物的基因结构。真核基因遵循的是“复杂性”策略——它包含着大量的非编码序列,编码区是不连续的。
真核基因的编码区由外显子(编码蛋白质的区段)和内含子(不编码蛋白质的间隔区段)交替排列组成。一个典型的真核基因可能包含多个外显子和多个内含子。例如,人类基因组大约有1.2亿个碱基对,但只编码约21000个基因,平均每个基因占用超过1100个碱基对,其中绝大部分是非编码DNA。
这个巨大的差异被称为C值悖论——真核生物的基因组比原核生物大了约25倍,但基因数量只多了约5倍。那么多的“额外”DNA是从哪里来的?答案就是内含子和其他非编码序列。
1.3 为什么会有这种差异?
为什么原核和真核会走上截然不同的基因结构道路?这要从细胞结构说起。
原核细胞没有核膜,DNA在细胞质中几乎是“裸露”的,转录和翻译是偶联的——mRNA还在合成的同时,核糖体就已经结合上去开始翻译了。在这种“边转录边翻译”的模式下,基因必须是连续的,因为一旦有内含子,翻译机器就会在遇到内含子时“卡壳”。
真核细胞有核膜,转录在细胞核中进行,翻译在细胞质中进行。这种空间上的隔离使得真核细胞可以在转录和翻译之间插入一个“中间加工”步骤——RNA剪接,即切除内含子、连接外显子。正是核膜的存在,为真核基因的“断裂化”提供了可能。
二、RNA聚合酶与非编码区的关系
2.1 RNA聚合酶的作用
有同学问:“为什么RNA聚合酶结合在非编码区?”这个问题需要从启动子说起。
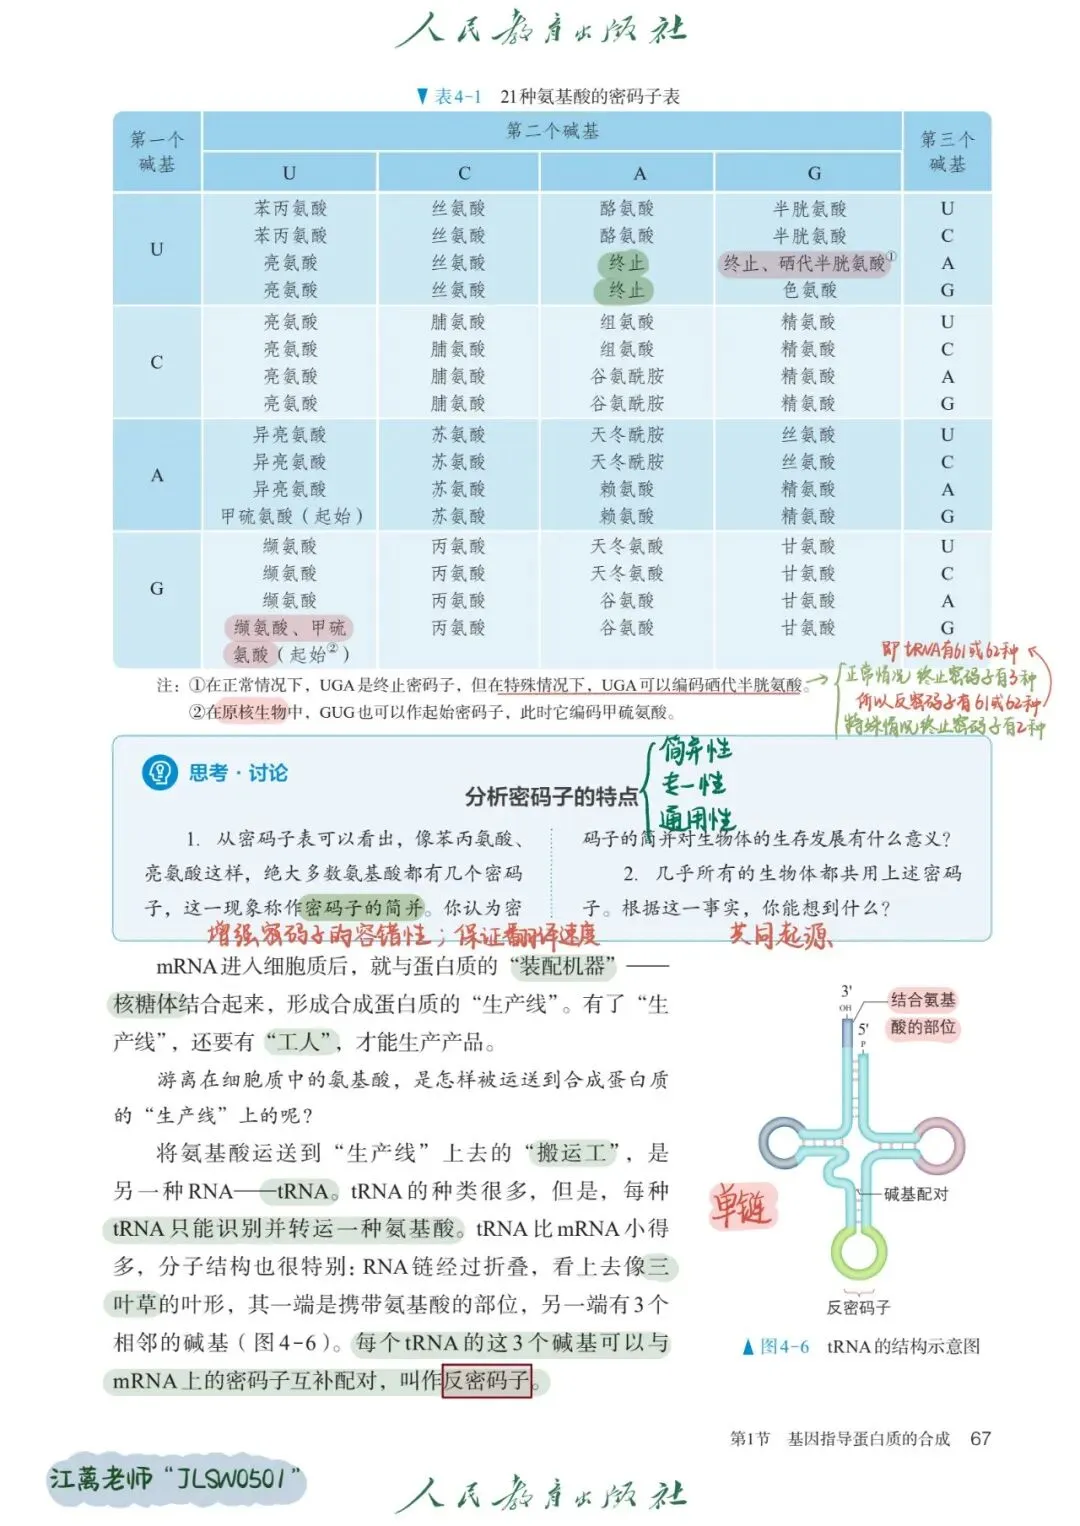
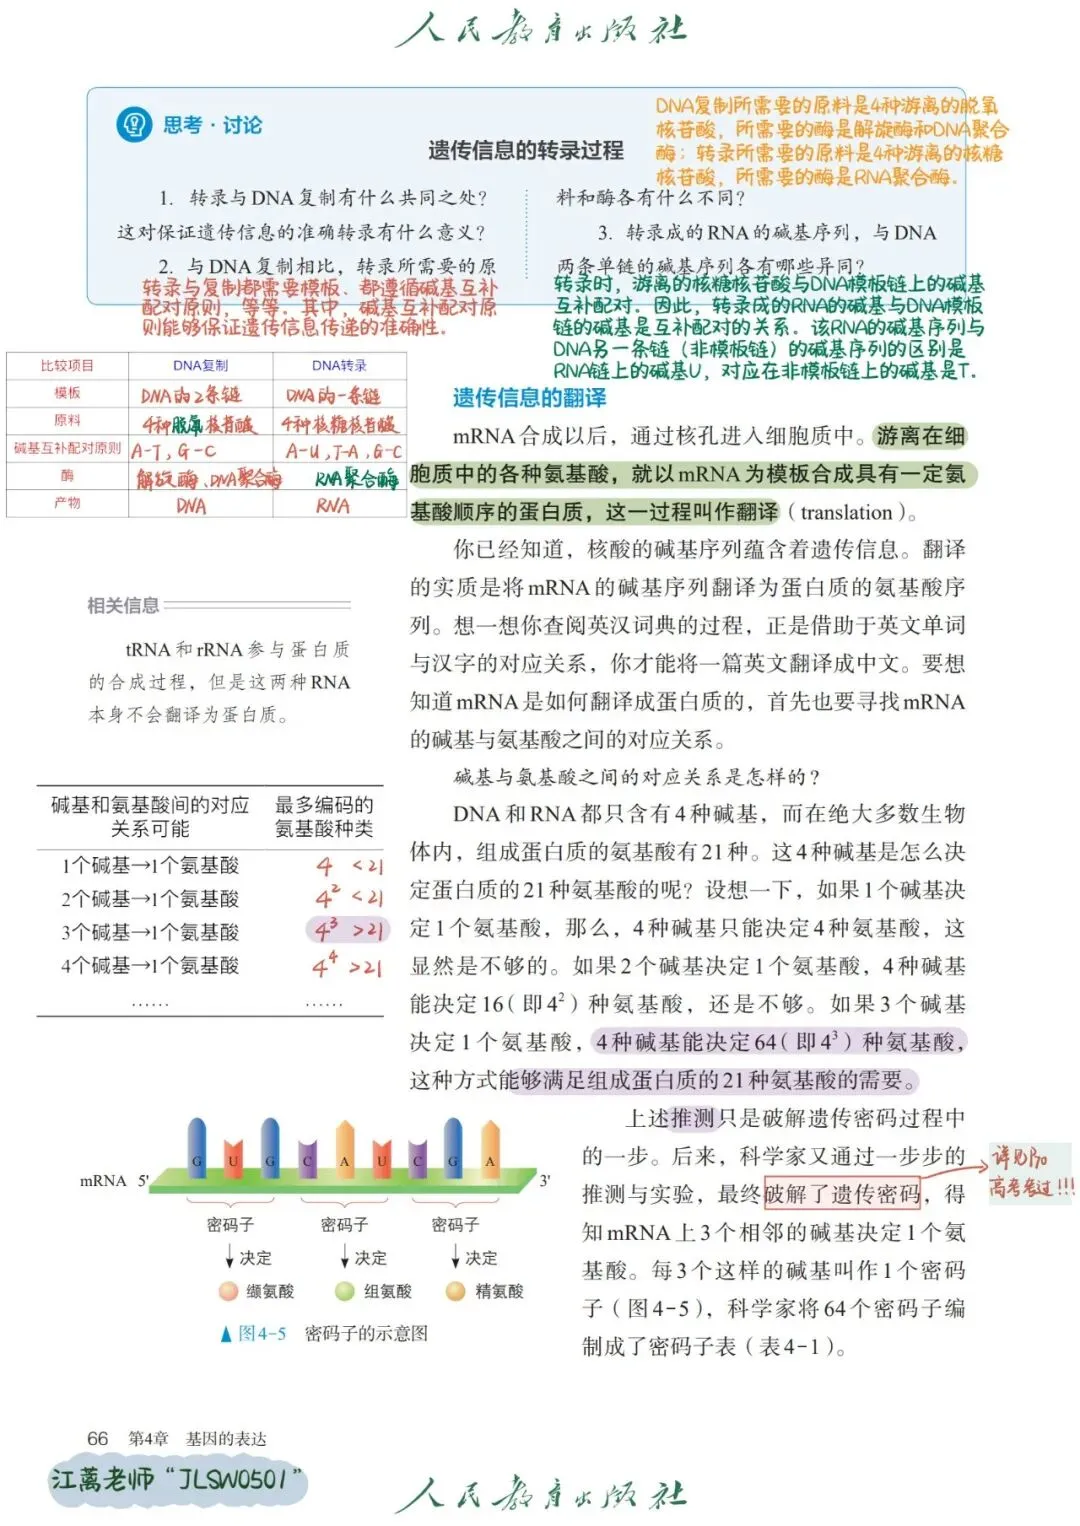
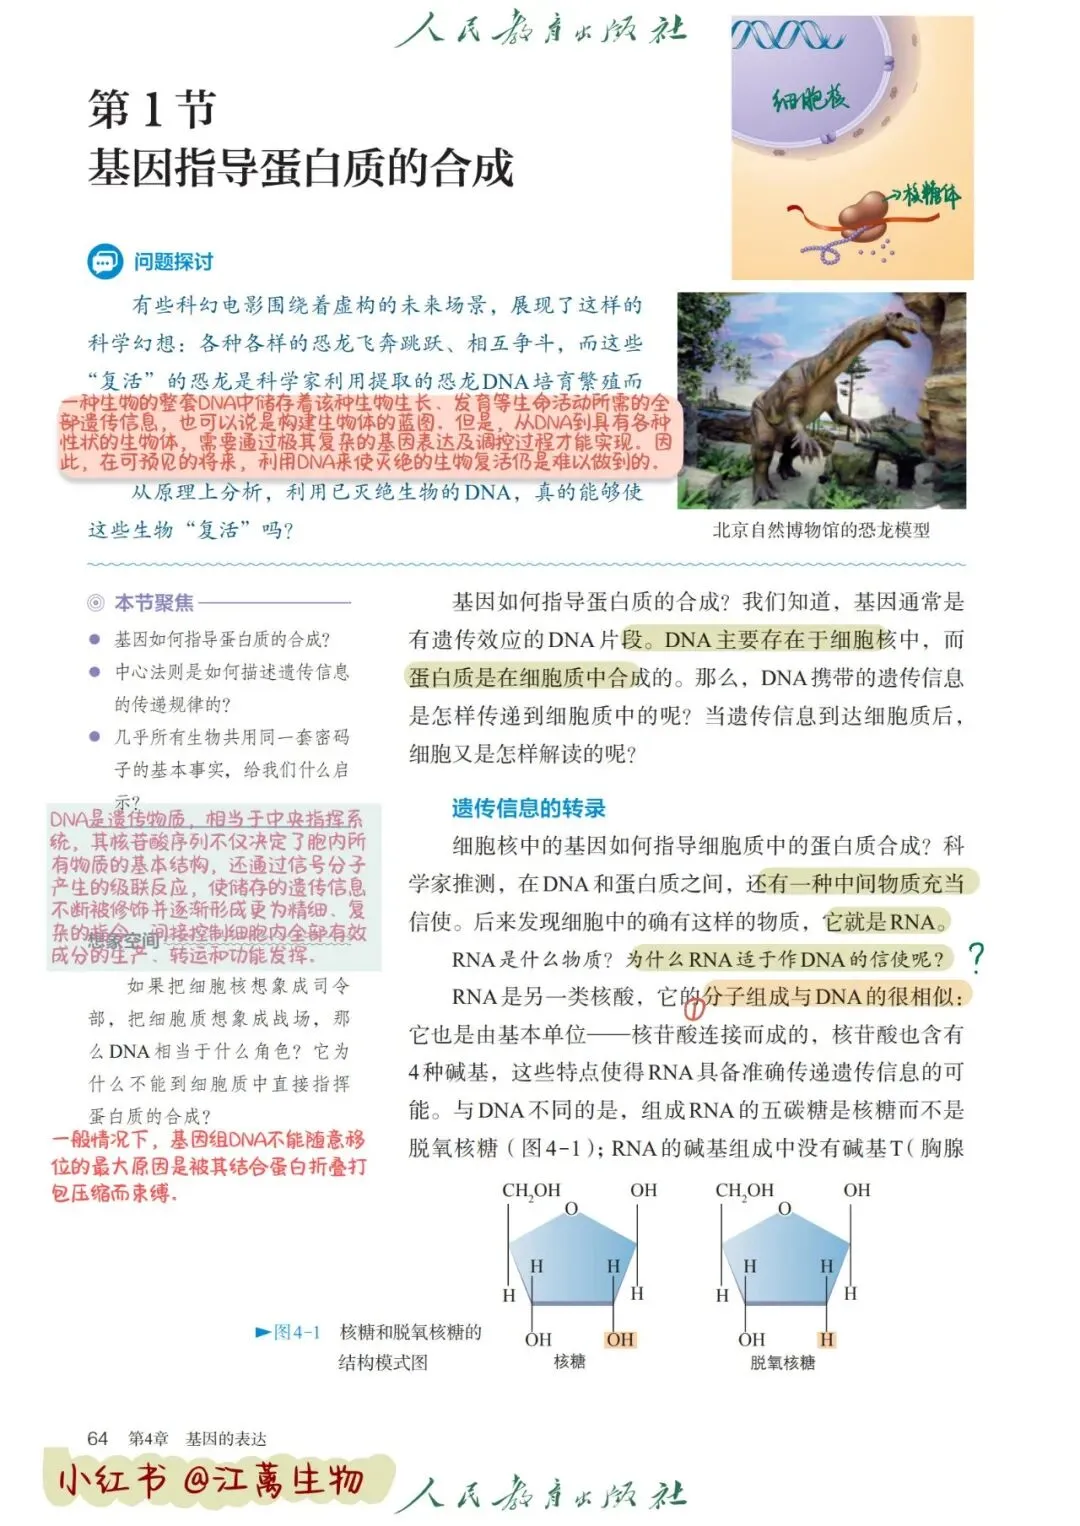
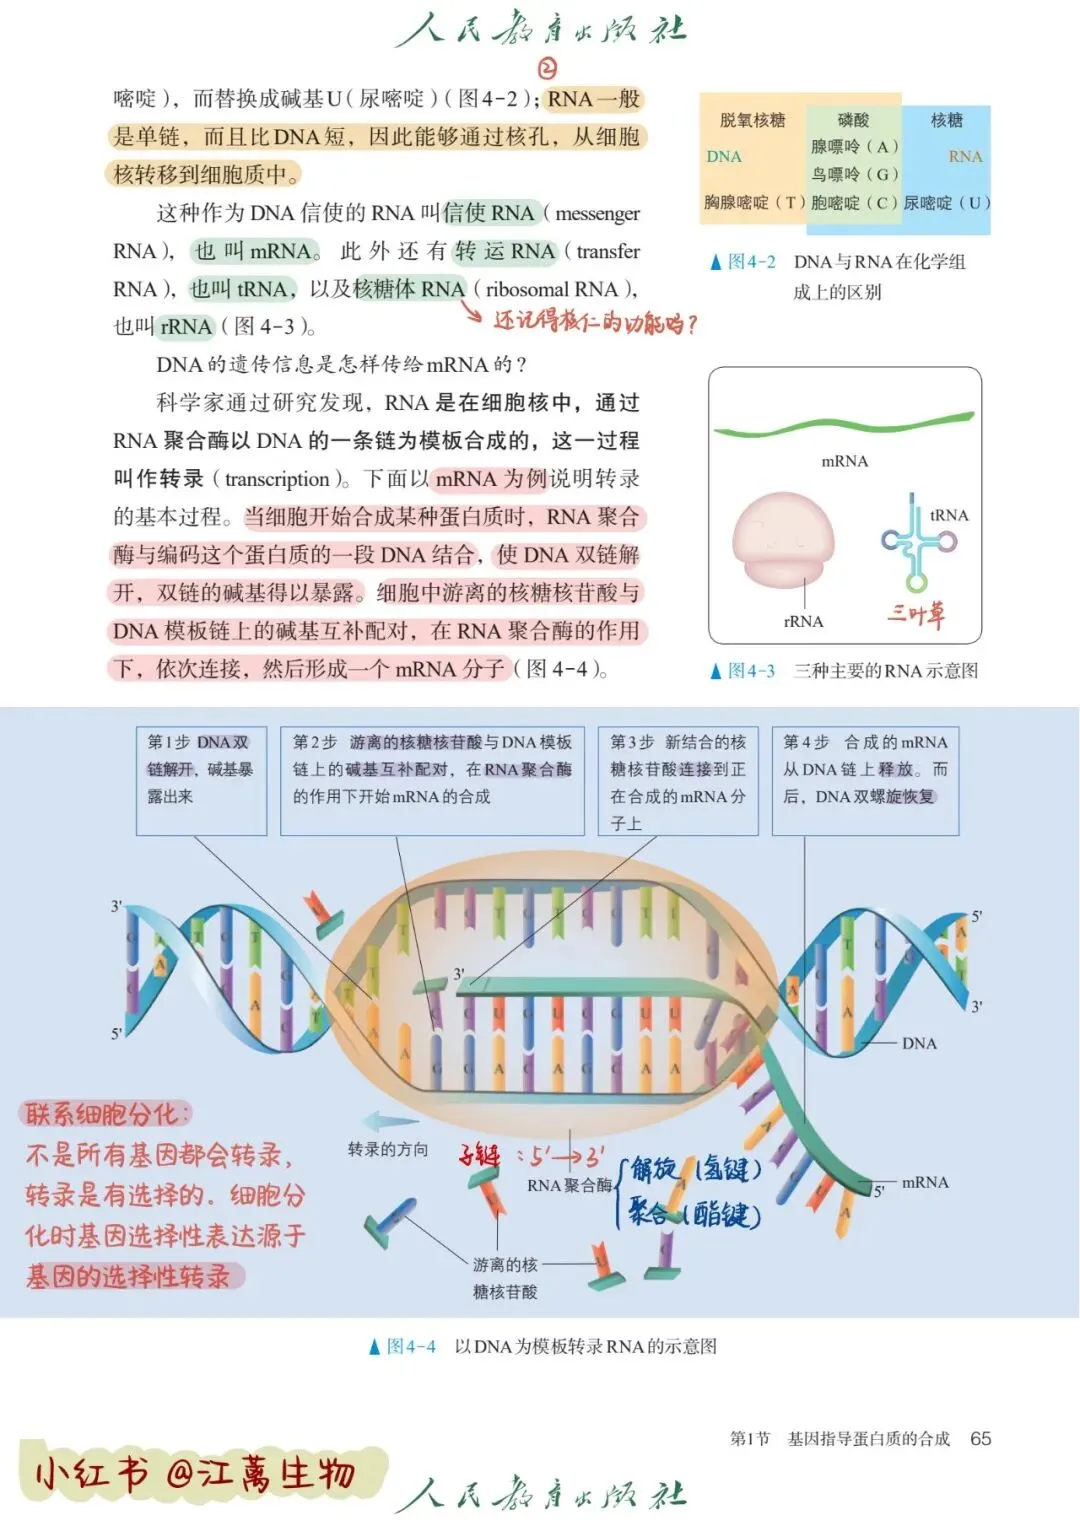
RNA聚合酶是负责转录的酶,它的核心功能是:以DNA为模板,合成RNA。但RNA聚合酶不能随机地在DNA上开始转录,它必须结合到基因上游的特定DNA序列上——这个序列就是启动子。
启动子位于基因的非编码区(即基因的5'端上游)。在原核生物中,启动子包含-10区(TATAAT,又称Pribnow盒)和-35区(TTGACA),RNA聚合酶识别并结合这些序列,启动转录。在真核生物中,启动子通常包含TATA盒等元件,需要多种转录因子的协助才能招募RNA聚合酶。
所以,RNA聚合酶结合在非编码区,是因为启动子本身就是非编码序列。启动子不编码任何蛋白质,它的功能是作为“路标”,告诉RNA聚合酶从哪里开始转录、往哪个方向转录。
2.2 非编码区的组成
真核基因的非编码区可以分为两个部分:
5'端非编码区:位于第一个外显子之前,包含启动子、增强子等调控元件。RNA聚合酶在这里结合并启动转录。
3'端非编码区:位于最后一个外显子之后,包含终止信号和多聚腺苷酸化信号。
此外,真核基因的内含子中也含有调控元件,如内含子增强子(ISE)和内含子沉默子(ISS),它们可以调节剪接效率。
三、外显子与内含子的本质
3.1 什么是外显子?什么是内含子?
外显子是基因中编码蛋白质的区段,在转录后保留在成熟mRNA中并最终被翻译成蛋白质。
内含子是基因中不编码蛋白质的间隔区段,在转录后从pre-mRNA中被切除,不出现于成熟mRNA中。
真核基因的结构可以表示为:启动子—外显子1—内含子1—外显子2—内含子2—外显子3—……—终止信号。
3.2 外显子与内含子的发现
内含子是在1977年被发现的。美国麻省理工学院的Phillip Sharp和Richard Roberts分别领导的两个研究小组在研究腺病毒时,将mRNA与其互补的基因组DNA链结合,在电子显微镜下观察杂种分子。他们惊讶地发现,mRNA并不是自始至终直接排列在DNA链上,有些区段显示出巨大的未杂交的DNA环。
这一发现意味着,真核基因在表达过程中发生了剪接——一些区段(内含子)在剪接后丢失了,另一些区段(外显子)被重新拼接起来,形成成熟的mRNA。Sharp和Roberts因此获得了1993年诺贝尔生理学或医学奖。
3.3 剪接体:切除内含子的“分子剪刀”
内含子的切除由剪接体完成。剪接体是一个巨大的核糖核蛋白复合体,由5种核内小RNA(U1、U2、U4、U5、U6 snRNA)和许多蛋白质组成。
剪接体的组装是一个多步骤的过程。首先,U1 snRNA识别并结合到内含子5'端的剪接位点(5'SS),U2 snRNA识别并结合到分支点,然后U4、U5和U6 snRNP加入,形成完整的剪接体。剪接体催化两步转酯反应:第一步,内含子5'端被切断,形成套索结构;第二步,内含子3'端被切断,同时两个外显子被连接起来。
剪接是一个极其精确的过程。任何错误的剪接都会导致移码突变或蛋白质功能丧失,引发多种遗传疾病。
四、内含子的价值与作用
有同学可能会问:既然内含子不编码蛋白质,而且还会增加转录和剪接的负担,为什么进化没有把它淘汰掉?答案是:内含子绝非“垃圾DNA”,它在基因表达调控、蛋白质多样性产生和物种进化中扮演着不可替代的角色。
4.1 可变剪接:一个基因,多种蛋白质
内含子最重要的功能是支持可变剪接。通过选择不同的剪接位点,同一个pre-mRNA可以产生多种不同的成熟mRNA,从而翻译出不同功能的蛋白质。
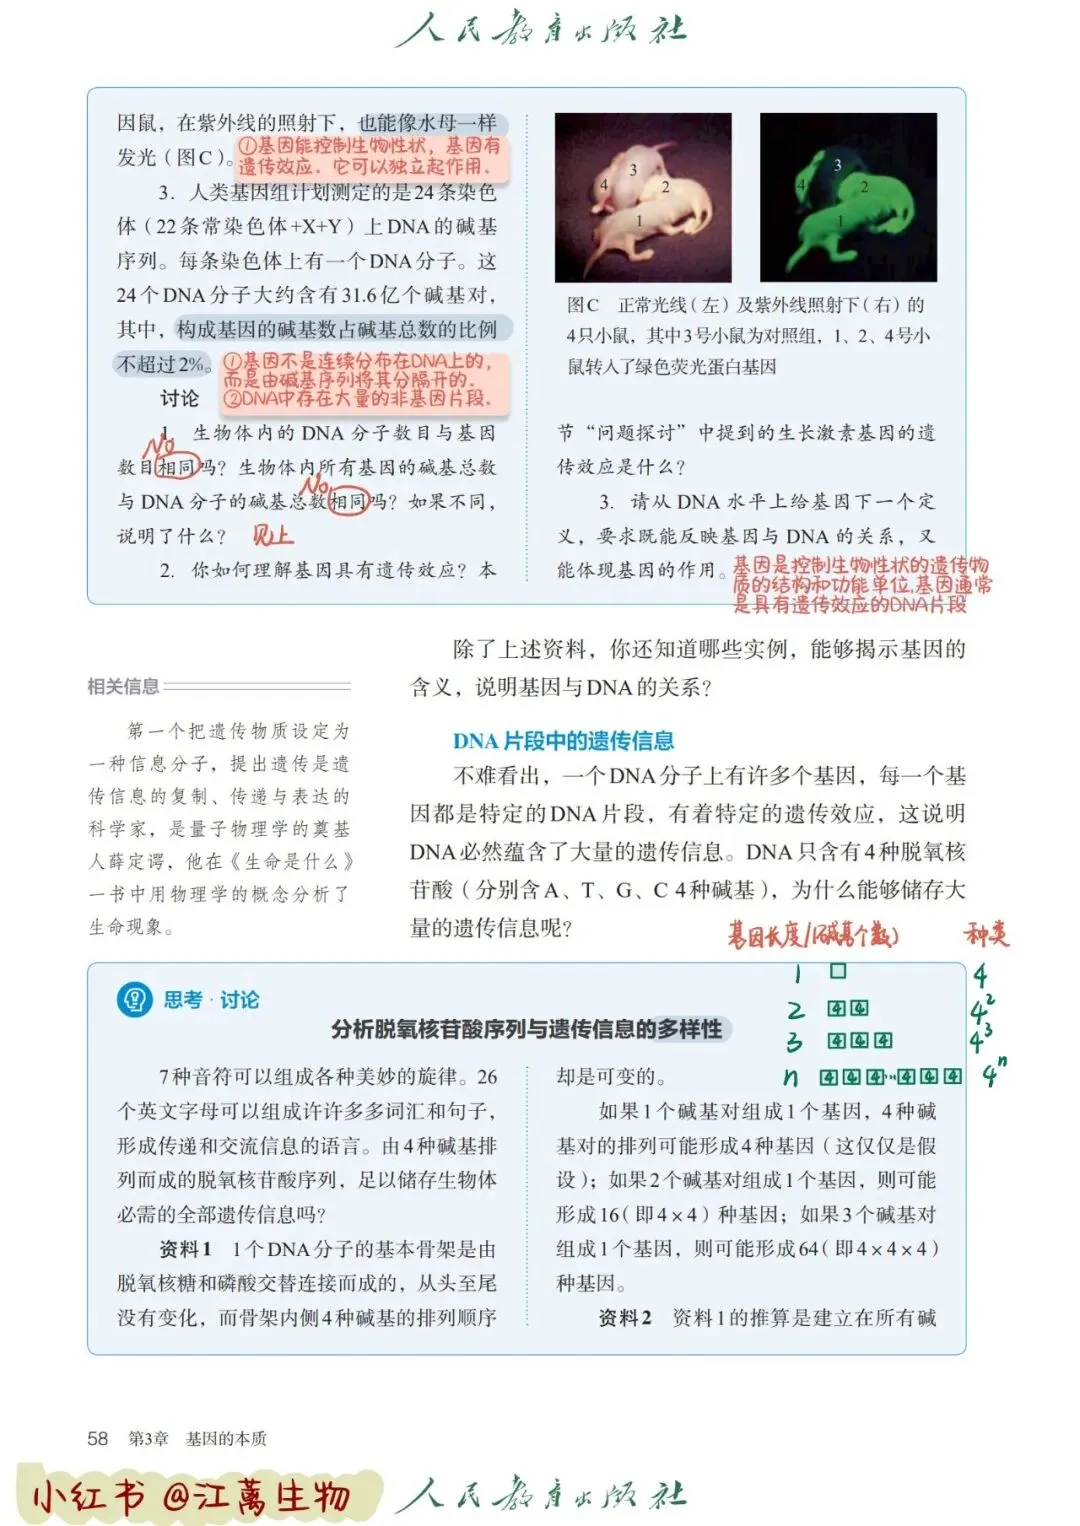
可变剪接有几种基本类型,其中最常见的是外显子跳跃——某个外显子在某些条件下被保留,在另一些条件下被跳过。通过这种方式,人类基因组中约21000个基因可以产生超过10万种不同的蛋白质,极大地扩展了蛋白质组的多样性。
原核生物没有内含子,也没有可变剪接,每个基因只能产生一种蛋白质。真核生物通过可变剪接,从较少的基因中实现了巨大的蛋白质多样性,这是真核生物复杂性远超原核生物的重要原因之一。
4.2 内含子中的调控元件
内含子中富含多种调控元件。内含子增强子(ISE)可以增强剪接效率,内含子沉默子(ISS)可以抑制剪接。
近年来的研究还发现,内含子中存在一种超保守的伪5'剪接位点,它本身不被剪接,但可以作为顺式元件,通过与U1 snRNP核心蛋白的相互作用,调控上游外显子的可变剪接。这种调控机制在果蝇的卵巢发育中发挥关键作用,与TOR信号通路密切相关。这意味着,内含子不只是被动的“间隔序列”,更是基因表达调控的主动参与者。
4.3 内含子的进化意义
内含子的起源是进化生物学中一个长期争论的问题。目前主要有两种假说:
“内含子早”假说认为,内含子起源于“RNA世界”时期,是非常古老的遗传元件。“内含子晚”假说则认为,剪接体内含子是在真核生物进化过程中较晚出现的,可能来源于已有的自我剪接内含子。
无论哪种假说更接近真相,一个事实是明确的:内含子在真核生物进化过程中大幅扩张。从酿酒酵母到人类,基因组中内含子的数量从数百个增加到数十万个,每个基因的平均内含子长度也显著增加。这种扩张本身就可能是一种进化策略——更多的内含子意味着更多的可变剪接机会,从而产生更丰富的蛋白质多样性。
4.4 内含子与生物技术
理解内含子的功能对现代生物技术至关重要。一个经典的例子是:我们不能直接将人类基因的DNA片段植入大肠杆菌来生产人类蛋白质。
为什么?因为真核基因的编码区被内含子隔开,而细菌没有剪接机制,无法去除这些内含子。工程师们必须从已经完成剪接的成熟mRNA出发,通过逆转录合成一个只包含外显子的互补DNA,才能在细菌中正确表达人类蛋白。胰岛素的大规模生产就是通过这种方式实现的。
五、常见误区辨析
误区一:内含子就是“垃圾DNA”,没有任何功能。
错误。内含子参与可变剪接、基因表达调控和进化创新,是真核生物复杂性的重要来源。
误区二:原核基因没有非编码区。
错误。原核基因也有非编码区,包括启动子、操纵基因和终止子等调控元件。只是原核基因的编码区是连续的,没有内含子。
误区三:RNA聚合酶结合在编码区。
错误。RNA聚合酶结合在基因上游的非编码区(启动子),而不是编码区。启动子是转录的“开关”。
误区四:内含子是在DNA水平上被切除的。
错误。内含子是在RNA水平上被切除的。转录产生的前体mRNA(pre-mRNA)中包含内含子,剪接体在细胞核中切除内含子后,成熟的mRNA才被运出细胞核进行翻译。
误区五:真核基因的断裂结构是一种“浪费”。
不准确。真核基因的断裂结构是一种进化策略。它使真核生物能够通过可变剪接从有限的基因中产生大量的蛋白质,这是真核生物复杂性的重要基础。
六、总结
同学们,今天这节课的核心内容可以概括为以下几点:
原核基因是连续的,以操纵子形式组织,功能相关的基因串联在一起,由一个启动子共同调控,转录和翻译偶联进行。
真核基因是断裂的,由外显子和内含子交替排列组成。核膜将转录和翻译在空间上隔离,为RNA剪接提供了可能。
RNA聚合酶结合在非编码区的启动子上,启动子是转录的“开关”。原核启动子包含-10区和-35区,真核启动子包含TATA盒等元件。
内含子是被切除的非编码区段,在剪接体(由snRNA和蛋白质组成)的作用下从前体mRNA中被精确切除,外显子被连接形成成熟mRNA。
内含子的价值体现在三个方面:支持可变剪接,产生蛋白质多样性;内含子中的调控元件参与基因表达调控;内含子的进化扩张是真核生物复杂性进化的重要推动力。
原核的“经济学”策略和真核的“复杂性”策略,并非“低级”与“高级”的对立,而是生命在面对不同演化压力时展现出的两种卓越智慧。
参考文献
[1] Sharp P A. Split genes and RNA splicing (Nobel Lecture)[J]. Angewandte Chemie International Edition, 1994, 33(12): 1229-1240.
[2] 桂建芳. RNA剪接和剪接调控[J]. 中国科学院水生生物研究所, 2000.
[3] Routh S B, Sankaranarayanan R. Spliceosome[M]//Advances in Protein Chemistry and Structural Biology. 2017.
[4] 浙江省生物化学与分子生物学学会. 真核生物的断裂基因与RNA剪接[EB/OL]. 2020.
[5] Bohrium. 原核与真核基因结构[EB/OL]. 玻尔百科.