ARTICLE · 1300692
【期中复习】高中生物:植物生长为什么离不开17种必需元素?
【期中复习】高中生物:植物生长为什么离不开17种必需元素?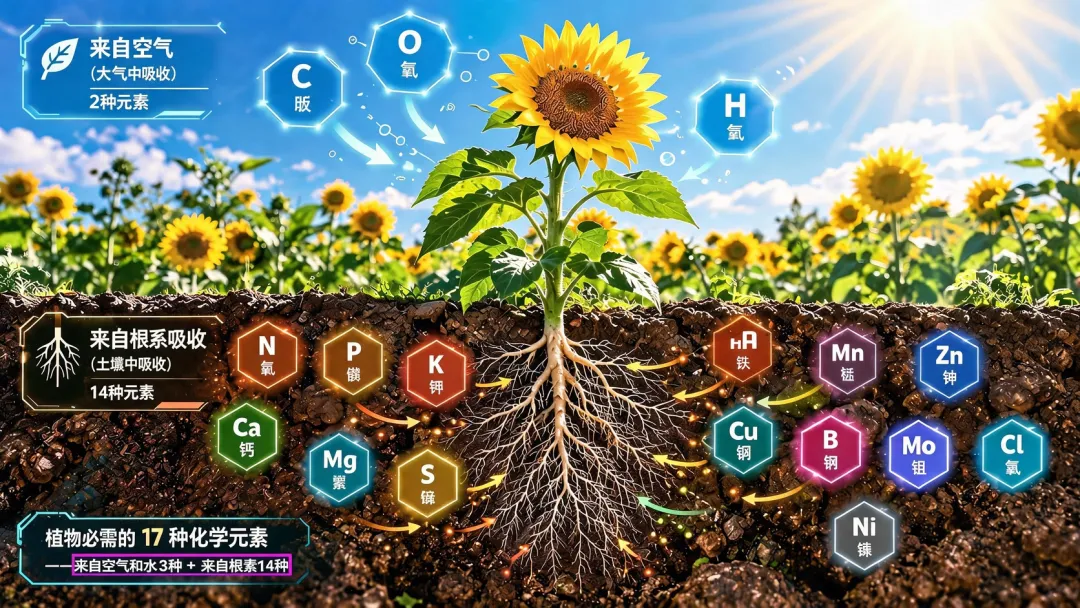
如果重新翻开高中生物课本,植物的营养问题其实并不陌生。 植物生长需要水、无机盐、二氧化碳和光照。通过光合作用,植物利用光能,将二氧化碳和水转化为有机物,同时释放氧气。随后,这些有机物参与呼吸作用、细胞分裂、细胞伸长、组织形成以及开花结实等一系列生命活动。 这里有一个容易被忽略的知识点:植物干物质中的碳主要来自光合作用固定的二氧化碳,氢和氧则主要来自水和二氧化碳。根系从土壤中吸收的矿质元素虽然种类繁多,却并不意味着植物需要从土壤中获取全部构成自身的物质。 例如,一株植物长出了新的叶片,叶片中的大量碳来自空气中的二氧化碳,而不是来自肥料。氮、磷、钾等元素参与叶片的形成和代谢,却不能替代碳成为有机物的主体。 这也解释了一个很有意思的现象:植物施肥以后长得更快,增加的重量并不是肥料直接堆积出来的。肥料提供的是生长所需的矿质营养,真正形成大量有机物的过程,仍然依赖光合作用。 高中生物还讲过另一个重要概念:植物根系能够吸收水分和无机盐,矿质元素通过木质部运输到地上部分,有些元素还能够通过韧皮部在不同器官之间重新分配。这个运输过程,直接影响了缺素症状首先出现在哪里。 从这些基础知识出发,我们就可以进一步讨论一个问题:植物究竟需要哪些矿质元素?为什么有些元素每天需要大量供应,有些元素只需要极少量? 目前,植物生理学普遍认可17种必需元素。所谓必需元素,是指植物正常生长和完成生活史不可缺少的元素。 判断一种元素是否必需,通常采用三个经典标准: 第一,缺少这种元素,植物无法完成正常的营养生长或生殖生长,甚至不能完成整个生活史。 第二,这种元素所承担的生理功能,不能由其他元素完全替代。 第三,这种元素直接参与植物的营养、生理或代谢过程,而不是仅仅通过改善外部环境间接促进生长。 17种元素可以按照来源和植物需要量分成以下几类。
这里需要区分两个概念。 C、H、O属于植物生长所需的必需元素,但通常不列入矿质营养元素。它们主要通过空气和水获得。其余14种属于矿质营养元素,主要由根系从根区环境中吸收。实际生产中,这些元素可能来自土壤、灌溉水、肥料、栽培基质以及其他输入物质。 大量元素和微量元素的划分,依据的是植物组织中的相对含量和需求量,并不是重要程度。例如,氮是蛋白质、核酸和叶绿素的重要组成元素,镍则参与尿素酶的正常功能。植物对镍的需求量极低,却不能因此认为镍可有可无。这就像一座工厂,钢材和水泥需要大量供应,某些催化剂却只需要很少的量。 植物吸收矿质元素时,通常需要以离子或特定的可利用化学形态进入根系。不同元素承担的生理功能不同,缺乏以后出现的症状也有差异。 下面按照植物营养学中的分类,重新认识这14种矿质营养元素。 氮是植物合成氨基酸、蛋白质、核酸、叶绿素和多种酶的重要原料。植物主要以硝酸根(NO₃⁻)和铵根(NH₄⁺)的形式吸收氮。 氮在植物体内具有较强的再移动能力。缺氮时,植物可以将老叶中的部分氮转运到新叶和生长点,因此典型症状通常首先出现在老叶,表现为整体失绿、生长缓慢、叶片变小、茎秆细弱,严重时提前衰老。 氮过量则可能造成营养生长旺盛、叶片深绿柔嫩、组织含水量增加,并影响开花、结实和产品品质。对于花卉生产,氮素供应还需要结合营养生长与生殖生长的转换进行管理。 磷参与ATP能量转移体系,是DNA、RNA、磷脂等物质的重要组成元素。植物主要吸收磷酸二氢根(H₂PO₄⁻)和磷酸氢根(HPO₄²⁻),两种形态的比例受到根区pH影响。 缺磷时,植物生长受到抑制,叶片可能呈现深绿色,部分植物老叶会出现紫红色。这种紫红色与花青素积累有关,并不是所有植物缺磷都会出现的症状。 磷过量同样可能引起营养失衡,特别是影响铁、锌等微量元素的有效性。生产中长期大量使用高磷肥料,可能造成基质或土壤中磷积累。 钾主要以K⁺形式被植物吸收,参与气孔调节、渗透调节、酶活化、水分平衡以及光合产物运输等过程。 钾在植物体内移动性较强。缺钾时,通常首先在老叶上表现出叶尖、叶缘黄化,随后逐渐形成坏死斑,出现类似叶片灼伤的症状。 钾过量则可能抑制钙、镁的吸收,造成继发性营养失衡。温室生产中,不能只看钾肥施用量,还要关注K、Ca、Mg之间的相互关系。 椰糠是钾营养管理中尤其需要关注的一种栽培基质。椰糠来源于椰子外果皮纤维组织,天然含有一定数量的钾、钠、氯等可溶性盐分。不同产地、原料类型和加工批次之间,离子组成可能存在较大差异。 未经充分清洗和缓冲处理的椰糠,可能释放较多K⁺和Na⁺,提高根区溶液中的钾、钠浓度,同时增加EC。如果没有充分考虑基质自身带入的钾,仍然按照常规营养液配方供应钾,就可能造成根区钾积累,并进一步影响Ca、Mg的营养平衡。 椰糠具有一定的阳离子交换能力,其交换位点上的K⁺、Na⁺、Ca²⁺和Mg²⁺会随着根区溶液组成发生交换。因此,椰糠的作用不仅是提供水分和空气,还包括改变根区阳离子的分布和供应。 实际生产中,使用椰糠前应了解其原料来源、EC、K、Na、Ca、Mg含量及预处理情况。对于已经充分缓冲的椰糠,还需要结合灌溉水和排液检测结果调整钾肥供应。 钙主要以Ca²⁺形式被根系吸收,是细胞壁中果胶结构的重要组成部分,同时参与细胞膜稳定、细胞分裂、细胞伸长和细胞信号传递。 钙在植物体内的韧皮部再移动能力较弱,主要依赖木质部蒸腾流运输。因此,缺钙通常首先发生在幼嫩叶片、生长点、根尖和快速生长的组织。 生产中常见的叶尖坏死、生长点死亡以及番茄脐腐病,都可能与钙营养有关。 需要注意的是,钙缺乏并不一定意味着根区钙浓度不足。根系活力、蒸腾作用、空气湿度、水分供应、盐浓度以及不同器官之间的竞争,都可能影响钙向特定组织的运输。 椰糠和木纤维等有机基质,也是影响钙营养的重要因素。 椰糠具有一定的阳离子交换容量,其中部分交换位点可能被K⁺、Na⁺等阳离子占据。当使用含钙营养液灌溉时,Ca²⁺可以与这些交换位点上的阳离子发生交换,使根区溶液中的钙浓度和阳离子组成发生变化。 这也是椰糠栽培中经常需要进行钙缓冲处理的原因之一。通过使用含钙溶液预处理椰糠,可以使交换位点上的部分K⁺、Na⁺被Ca²⁺置换,减少后续栽培过程中这些离子的释放风险。 木纤维则需要结合原料和加工方式具体分析。木材来源、纤维化工艺、堆肥程度、预处理方式以及是否与其他基质混配,都会影响其化学性质。部分木质材料具有一定的阳离子交换能力,也可能在分解过程中改变根区的养分供应。 此外,木质纤维分解过程中,微生物可能利用基质中的氮进行生物固定,造成植物可利用氮暂时减少。不同木纤维产品的表现差异较大,不能将所有木纤维基质视为相同的营养环境。 因此,使用椰糠、木纤维或含有较高比例有机材料的混合基质时,不能只按照营养液中的钙浓度判断钙供应是否充足,还应考虑基质自身的阳离子交换能力、初始离子组成以及使用过程中的变化。 镁主要以Mg²⁺形式被植物吸收,是叶绿素分子的中心元素,同时参与多种酶反应、光合作用和ATP相关代谢过程。 镁在植物体内具有较强的移动性。缺镁时,植物会优先将老叶中的镁转运到新生组织,因此通常表现为老叶叶脉间失绿,叶脉仍然保持绿色。 镁过量可能影响钙、钾的吸收和利用。实际生产中,镁营养管理需要结合钙、钾供应以及灌溉水中的镁含量综合判断。 硫主要以SO₄²⁻形式被植物吸收,参与半胱氨酸、蛋氨酸等含硫氨基酸的合成,也是部分辅酶和其他重要代谢物的组成元素。 硫在植物体内的再移动能力相对有限。缺硫时,通常首先表现为幼嫩叶片整体失绿,严重时植株生长受到明显抑制。 这也是区分缺氮和缺硫的一个重要线索:缺氮往往先从老叶开始,缺硫则更容易从新叶开始。不过,单靠叶色仍然不能完成准确诊断。 铁参与光合作用、呼吸作用、电子传递和多种氧化还原反应。植物的铁营养与叶绿素形成密切相关。 缺铁最典型的症状是新叶叶脉间失绿,严重时新叶整体变黄。铁在植物体内的再移动能力较弱,因此症状通常首先出现在新生组织。 铁的有效性高度受到根区pH影响。尤其在偏碱性环境中,即使基质或营养液中存在一定数量的铁,也可能无法满足植物需求。这也是温室生产中常使用螯合铁的原因。 锰主要以Mn²⁺形式被植物吸收,参与光合作用中光系统II的水分解过程,也参与多种酶促反应。 缺锰时,常出现叶脉间失绿,有时伴随细小坏死斑。锰过量则可能造成叶片出现褐色斑点、黑色斑点以及根系受损。 锰的有效性同样受到pH影响。在偏酸性根区,锰的有效性通常提高,过量风险也会增加。 锌参与多种酶的结构和活性,影响蛋白质合成、碳水化合物代谢和生长调节。 缺锌时,常见症状包括新叶变小、节间缩短、叶片畸形和叶脉间失绿,严重时植株呈现莲座状生长。 锌过量可能干扰铁等元素的营养平衡。因此,锌肥施用应当建立在缺素诊断基础上。 铜参与光合作用电子传递、呼吸作用以及多种氧化还原反应。 缺铜时,植物可能表现为新叶畸形、叶尖枯萎、顶端生长受到抑制,严重时影响花器官发育。 铜过量则容易造成根系毒害,并可能诱发其他元素的继发性营养失衡。循环水培系统尤其需要关注铜的累积。 硼参与细胞壁结构形成、细胞分裂、膜功能维持以及花粉萌发和花粉管生长,对植物的生殖过程非常重要。 缺硼时,容易出现生长点死亡、根尖受损、幼叶畸形、茎叶脆硬以及花器官发育异常。 硼的特点是适宜浓度范围相对较窄,缺乏和过量之间的安全空间有限。不同作物的硼需求差异也比较明显,不能直接套用同一个叶片浓度标准。 钼是硝酸还原酶和固氮酶等重要酶系统的组成部分。尤其对于以硝酸盐为主要氮源的植物,钼参与硝酸盐向亚硝酸盐的还原过程。 缺钼可能表现为类似缺氮的症状,包括叶片失绿、生长受抑以及开花发育异常。 钼的需求量非常低,温室营养液中的浓度通常以极低的ppm水平计算。施用时需要特别注意计量精度。 氯主要以Cl⁻形式被植物吸收,参与光系统II中的水分解、渗透调节和气孔运动。 氯缺乏在常规生产中相对少见,因为灌溉水和许多肥料中都含有氯。 生产中更需要注意氯的积累。高浓度氯可能造成叶尖和叶缘灼伤、叶片黄化甚至脱落。使用氯化钾、氯化钙等肥料时,应将氯的输入量纳入营养液计算。 镍是目前公认的第17种植物必需元素。其必需性在20世纪80年代得到关键实验证据,并于2004年得到广泛确认。 镍最明确的生理功能是作为尿素酶的金属组成成分,参与尿素分解和氮代谢。缺镍可能导致尿素代谢异常,在某些植物中出现叶尖坏死等症状。 植物对镍的需求量极低。土壤、灌溉水和常规肥料中往往已经存在一定数量的镍,正常生产通常不需要单独补充镍肥。过量镍反而可能产生毒害。 回到高中生物的另一个知识点:植物体内的物质运输。 植物吸收矿质元素以后,需要通过木质部和韧皮部完成运输和再分配。不同元素在这两个运输系统中的移动能力存在差异,这直接决定了缺素症状的发生位置。 植物出现营养缺乏时,往往会优先将可以重新利用的元素从老叶转移到新叶、生长点或生殖器官。因此,元素在植物体内的移动性,是判断缺素症状的重要依据。 可以将常见元素大致整理如下:
这里有一个值得注意的例外:硼在不同植物中的韧皮部移动能力存在明显差异。例如,部分糖醇含量较高的植物能够通过韧皮部运输硼,其他植物的硼再移动能力则比较有限。因此,不能将所有植物的硼缺乏症状简单归为同一种模式。 对于温室花卉生产,这张表有很强的实用价值。 例如,发现报春花、绣球、洋桔梗或康乃馨的新叶发黄,可以先考虑铁、锰等元素的有效性,同时检查根区环境;如果老叶首先出现叶脉间失绿,则可以进一步关注镁营养。 当然,叶片颜色只是诊断线索。病毒病、根系损伤、低温、药害以及光照异常,也可能造成相似的外观症状。 高中生物讲过细胞膜的选择透过性,也讲过植物细胞通过主动运输和协助扩散吸收物质。 植物根系对矿质元素的吸收,并不是一个简单的被动过程。不同离子需要通过相应的转运蛋白、离子通道和膜运输机制进入细胞。 因此,根区中各种元素的浓度和比例,会影响植物对其他元素的吸收。 例如: K浓度过高,可能影响Ca、Mg的吸收。 Ca浓度过高,在一定条件下可能影响Mg、K的营养平衡。 NH₄⁺比例过高,可能影响其他阳离子的吸收,同时改变根际pH。 P供应过量,可能降低Zn、Fe等元素的有效性。 根区pH变化,会同时影响Fe、Mn、Zn、Cu、P等多种元素的有效性。 这里需要强调,元素之间的拮抗并不是简单的固定比例关系。它受到元素浓度、根系状态、植物种类、温度、光照以及根区化学环境等多方面因素影响。 高浓度的某种元素,可能让另一种元素在根区中依然存在,却难以被植物正常吸收或利用。 基质也会参与营养元素的交换。在传统土壤栽培中,土壤胶体具有阳离子交换能力,可以吸附和释放K⁺、Ca²⁺、Mg²⁺等阳离子。在现代无土栽培中,参与交换的材料则包括椰糠、泥炭和部分有机纤维基质。 以椰糠为例: 基质中原有的K⁺可能释放进入根区溶液,提高钾浓度。 Ca²⁺可能与基质交换位点上的K⁺、Na⁺发生交换。 Mg²⁺也可能参与交换过程,改变根区阳离子比例。 不同批次椰糠的离子组成差异,可能导致相同营养液配方产生不同结果。 木纤维等有机基质则需要进一步考虑其原料和加工方式。部分木质材料具有一定的阳离子交换能力,基质分解过程中还可能发生微生物固定氮的现象,暂时降低植物可利用氮的供应。 因此,根区的营养元素供应实际上由三个部分共同决定:灌溉水带入的元素、肥料提供的元素,以及栽培基质吸附和释放的元素。 这也是为什么同样使用一套肥料配方,不同温室、不同基质、不同灌溉水条件下,植物长势可能完全不同。 以温室番茄为例,温室营养液中的磷浓度可以维持在约50 mg/L,而氮、钾、钙等元素会随着生育阶段发生变化。这说明营养液管理需要根据作物需求和生育阶段调整,不能简单地认为肥料浓度越高越好。 传统种植中,植物出现黄叶、叶片畸形或者生长缓慢,常见的处理方法是判断缺少什么元素,然后补充相应肥料。 这种方法在一些简单情况下有效,但在现代温室生产中,往往不够准确。 因为植物营养实际上涉及三个连续过程。 第一,根区有没有这种元素。 营养液、土壤或栽培基质中是否存在足够的元素?灌溉水是否带入了额外的钙、镁、硫、钠和氯?长期施肥是否造成了某些离子的累积? 第二,根系能不能吸收这种元素。 根区pH是否合适?EC是否过高?根系是否健康?基质是否长期过湿,导致氧气不足?根区温度是否影响根系代谢? 这些因素都可能改变元素的吸收效率。 第三,吸收以后能不能运输到需要它的部位。 钙就是典型例子。营养液中有钙,根系也吸收了钙,并不意味着快速生长的幼叶和果实一定能够获得足够的钙。 现代温室生产越来越重视将营养液分析、根区环境监测和植物组织分析结合起来。 实际诊断可以分成五个层次:
对于椰糠、泥炭、木纤维及其混合基质,尤其需要关注以下指标: 初始EC及可溶性盐分。 K、Na、Ca、Mg等阳离子的初始含量。 阳离子交换容量(CEC)。 基质是否经过清洗、缓冲或其他预处理。 木质材料的稳定性、分解程度及其对氮素的影响。 长期灌溉后基质离子组成的变化。 例如,同一套营养液用于岩棉和椰糠栽培时,由于两种材料的离子交换特性不同,根区K、Ca、Mg的实际浓度和比例可能出现差异。 这里还有一个经常被忽略的概念:营养液EC相同,不代表元素组成相同。 EC反映的是溶液整体导电能力,主要受到各种离子浓度和离子性质的影响。它不能直接告诉我们氮、磷、钾、钙、镁分别有多少。 两份EC相同的营养液,完全可能具有不同的N、P、K比例,也可能存在完全不同的微量元素组成。 对于采用无土栽培、穴盘育苗、潮汐灌溉和循环水肥系统的花卉企业,这个区别尤其重要。 学习植物营养,最初是认识17种必需元素,了解每一种元素的生理功能、吸收形态和缺乏症状。 进一步学习,则需要理解元素之间的相互关系,以及植物在不同生育阶段对营养的需求变化。 对于商业化花卉生产,这种认识非常重要。 例如,组培苗炼苗阶段,根系尚未完全建立,叶片蒸腾能力和根系吸收能力都可能受到限制。这时候,即使营养液中的元素浓度足够高,也不意味着幼苗能够充分吸收。 再例如,扦插苗生根阶段,植物对氮、磷、钾、钙等元素的需求与已经建立完整根系的成品苗不同。如果一味提高肥料浓度,反而可能增加根区盐分压力,影响根系形成。 进入营养生长和生殖生长阶段以后,植物对不同元素的需求还会继续变化。叶片、茎秆、根系、花芽和花器官之间,也存在不同的营养分配关系。 此外,基质本身也需要纳入营养管理。 过去谈到施肥,我们通常关注肥料提供了多少氮、磷、钾、钙和镁。进入无土栽培时代以后,椰糠、泥炭、木纤维等基质越来越广泛地应用于商业化生产。这些材料除了提供水分和空气,还可能通过吸附、交换和释放离子,改变根区营养环境。 因此,现代温室营养管理需要同时考虑水、肥、基质和根系四个方面。 肥料配方是人为提供的营养方案,基质则是这个方案实际运行的环境。忽略基质的化学性质,再精确的营养液配方也可能在根区产生意想不到的结果。 真正值得研究的问题逐渐从“植物需要哪17种元素”,转变成以下几个更具体的问题: 不同作物、不同品种在不同生育阶段需要多少营养元素? 相同的营养液浓度,为什么在不同温度、光照和湿度条件下会产生不同结果? 为什么根区检测到某种元素,植物仍然出现缺素症状? 为什么EC相同的两套营养液,植物生长表现可能相差很大? 为什么同一套肥料配方,在椰糠、泥炭和木纤维基质中会表现出不同的效果? 怎样通过植物组织分析,判断肥料供应是否真正满足了作物需求? 这些问题已经超出了高中生物中矿质元素吸收的基础知识,进入了植物生理学、植物营养学和设施园艺的交叉领域。 植物需要17种必需元素,每一种都有不可替代的作用。但植物真正需要的,从来不是一张固定的肥料配方,而是在特定环境和生育阶段下,能够被根系吸收、运输并有效利用的营养供应。 参考资料 University of Florida, IFAS Extension. Plant Tissue Analysis and Interpretation for Vegetable Crops in Florida. EP081. University of Florida, IFAS Extension. Fertilizer Management for Greenhouse Vegetables. CV265. University of Wisconsin–Madison Extension. Crop Nutrients 101, 2024. Virginia Cooperative Extension. The Basics of Fertilizer Calculations for Greenhouse Crops, 2025年修订。 University of Alaska Fairbanks Cooperative Extension. Soil and Fertilizer Management for Healthy Gardens.
一、先从高中生物课本说起:植物是怎样获得营养的?
二、植物需要17种必需元素:数量少不等于不重要
类别 | 元素 | 主要来源或特点 |
|---|---|---|
结构基础元素 | C、H、O | 主要来自二氧化碳和水 |
大量元素 | N、P、K | 植物需要量较大 |
次大量元素 | Ca、Mg、S | 需要量低于N、P、K |
微量元素 | Fe、Mn、Zn、Cu、B、Mo、Cl、Ni | 需要量很低,但不可缺少 |
三、从高中生物的矿质元素知识,理解14种元素的作用
1. 大量元素:N、P、K
氮(N)
磷(P)
钾(K)
2. 次大量元素:Ca、Mg、S
钙(Ca)
镁(Mg)
硫(S)
3. 微量元素:Fe、Mn、Zn、Cu、B、Mo、Cl、Ni
铁(Fe)
锰(Mn)
锌(Zn)
铜(Cu)
硼(B)
钼(Mo)
氯(Cl)
镍(Ni)
四、为什么缺素症状会出现在不同部位?
元素 | 植物体内再移动能力 | 缺乏时常见的首先表现部位 |
|---|---|---|
N | 较强 | 老叶 |
P | 较强 | 老叶 |
K | 较强 | 老叶 |
Mg | 较强 | 老叶 |
S | 相对较弱 | 新叶 |
Ca | 很弱 | 幼嫩组织、生长点 |
Fe | 很弱 | 新叶 |
Mn | 有限 | 新叶或幼叶 |
Zn | 有限 | 新叶及生长点 |
Cu | 有限 | 幼嫩组织 |
B | 多数植物中较弱 | 生长点、幼嫩组织 |
Mo | 相对较强 | 老叶或中下部叶片较常见 |
Cl | 较强 | 缺乏时症状不典型 |
Ni | 可发生再分配 | 缺乏症状不典型 |
五、元素之间存在竞争:为什么肥料配方不能只看单个数字?
六、从认识元素到理解根区:现代温室为什么越来越重视营养诊断?
诊断层次 | 主要检查内容 | 解决的问题 |
|---|---|---|
植物观察 | 老叶、新叶、叶脉、叶缘、生长点 | 判断可能的营养问题 |
根区监测 | pH、EC、温度、水分、氧气 | 判断根系吸收环境 |
营养液或灌溉水分析 | 各元素浓度、离子组成 | 判断外部营养供应 |
基质分析 | EC、pH、CEC、K、Na、Ca、Mg及有机质稳定性 | 判断基质对营养元素的影响 |
植物组织分析 | 叶片、叶柄等组织中的元素含量 | 判断植物实际吸收情况 |