ARTICLE · 1226697
2区7分!药物靶点孟德尔随机化实操模板!cis-eQTL选工具变量+F统计量剔除弱工具+MR-Egger intercept检验水平多效性+MR-PRESSO离群值校正
皮肤黑色素瘤虽然只占皮肤癌的4%,却导致了75%的皮肤癌死亡,找新药靶点一直是难题。这篇2026年7月28日发表在《Frontiers in Immunology》上的文章,用孟德尔随机化从2664个药物靶基因中筛出LTA4H,再用三种黑色素瘤细胞系和乌苯美司(bestatin)做了完整验证,思路清晰、数据扎实,值得一读。
真正开启不学R语言时代!!!关注本号私信“资料”两字,免费领取>5篇0代码云平台复现5-15分公共数据库挖掘SCI全文教程!轻松入门生信分析!秒变生信分析大神!

新鲜出炉!今天给大家深度剖析一篇2026年9月5号发表在《Frontiers in Immunology》上的文章,题目为:乌苯美司通过抑制LTA4H表达抑制皮肤黑色素瘤的发展
Bestatin inhibits the development of cutaneous melanoma by inhibiting the expression of LTA4H.
本研究是采用孟德尔随机化分析探索药物靶点与皮肤黑色素瘤之间的因果关系并筛选新药靶点,随后在黑色素瘤细胞中验证靶向药物能否通过抑制靶基因表达来抑制黑色素瘤发展。
影响因子:7
发表期刊:Frontiers in Immunology
团队成员合影(位于上海陆家嘴中心,可随时预约参观)



1.首次鉴定并验证LTA4H为皮肤黑色素瘤的新型促瘤靶点: 通过孟德尔随机化分析发现LTA4H高表达可促进皮肤黑色素瘤的发生,并在三种黑色素瘤细胞系中验证其高表达。
2.严谨的研究设计: 通过多步骤、多数据来源的交叉验证增强了结论的稳健性,包括UK Biobank发现队列与FinnGen R11复制队列的孟德尔随机化分析、GEO2R差异表达基因筛选以及PheWAS分析。
3.前瞻性评估靶向治疗的潜在副作用并确定核心靶点: 利用PheWeb数据库进行PheWAS分析,评估靶向LTA4H和ALDH3A2的潜在副作用,发现ALDH3A2与皮肤黑色素瘤无直接关联,从而将后续细胞实验聚焦于LTA4H。
4.在细胞水平验证药物重定位潜力: 验证乌苯美司可通过抑制LTA4H表达抑制黑色素瘤细胞的恶性功能,加速潜在的临床转化。


1.首次将孟德尔随机化应用于皮肤黑色素瘤药物靶点鉴定: 利用目前规模最大的公开皮肤黑色素瘤风险GWAS数据,显著提升了研究的创新性和可靠性。
2.双队列验证降低假阳性: 孟德尔随机化结果在两个重要队列(UK Biobank和FinnGen R11)中得到验证,大大降低了假阳性可能性,并可能提高临床试验的有效性。
3.首次在三种黑色素瘤细胞系中验证LTA4H高表达: 在SK-MEL-28、A-375和M14三种黑色素瘤细胞系中验证LTA4H高表达,表明孟德尔随机化研究结果具有高度可靠性。
4.首次验证乌苯美司通过抑制LTA4H表达抑制黑色素瘤细胞恶性功能: 为黑色素瘤治疗提供了新见解。


皮肤黑色素瘤是一种危及生命的皮肤癌症,虽然仅占所有皮肤癌发病的4%,却导致75%的皮肤癌死亡。其病因常涉及环境和遗传因素,紫外线辐射和低黑色素水平是主要风险因素。尽管早期检测和治疗取得了进展,皮肤黑色素瘤的管理仍然具有挑战性,因此识别新的药物靶点对于改善预防和治疗结局至关重要。通过全基因组关联研究识别的与疾病相关的单核苷酸多态性,是可用于辅助识别和验证药物靶点的随机人类数据来源。孟德尔随机化以遗传变异作为工具变量,是识别和评估暴露与结局之间因果关系的有效统计方法。在药物靶点孟德尔随机化分析中,研究者常采用位于药物靶基因基因组附近的顺式表达数量性状位点作为工具变量,这些位点可调控其相关基因的表达水平。


1.药物靶基因顺式表达数量性状位点鉴定: 从eQTLGen联盟获取eQTL数据,包含31684个顺式eQTL和16987个基因,选取每个可成药基因上下游5kb范围内的单核苷酸多态性,最终鉴定出2664个与eQTL相关的药物靶基因。
2.结局数据获取: 发现阶段从UK Biobank获取皮肤黑色素瘤GWAS汇总数据,复制阶段从FinnGen R11生物样本库获取。
3.孟德尔随机化分析: 采用逆方差加权法作为主要因果推断方法,使用MR-Egger截距检验评估水平多效性,Cochran's Q统计量评估异质性,MR-PRESSO全局检验检测并校正离群值,并应用错误发现率校正进行多重检验校正。
4.差异表达基因筛选: 利用GEO数据库中的GSE46517数据集(包含31例原发性皮肤黑色素瘤样本和7例正常皮肤组织样本),通过GEO2R工具筛选差异表达基因,并查找黑色素相关的药物靶基因。
5.PheWAS分析: 利用PheWeb数据库进行全表型组关联研究,探究候选靶点的治疗作用和意外效应。
6.细胞实验验证: 在A-375、SK-MEL-28、M14三种黑色素瘤细胞系及正常人真皮成纤维细胞HSF中检测LTA4H表达;通过敲低和过表达LTA4H评估其对黑色素瘤细胞增殖、迁移、侵袭和凋亡的影响;最后用乌苯美司刺激黑色素瘤细胞,检测其对恶性功能的作用。


1.孟德尔随机化分析结果: 发现和复制分析中,逆方差加权法揭示8个药物靶基因与皮肤黑色素瘤存在统计学显著的因果关联,包括CTSB、CDK10、TPCN2、SLC9A1、RNASE6、LTA4H、CD300LD和ALDH3A2。其中CTSB、TPCN2、SLC9A1、LTA4H、CD300LD和ALDH3A2表达升高增加皮肤黑色素瘤风险,RNASE6和CDK10表达降低增加皮肤黑色素瘤风险。由于CDK10存在异质性和多效性被排除,RNASE6、SLC9A1和CD300LD在两次分析中beta值和比值比不一致被排除,最终确定CTSB、TPCN2、LTA4H和ALDH3A2四个药物靶基因与黑色素瘤存在因果关系。
2.差异表达基因筛选结果: GSE46517数据集经GEO2R筛选出4098个P值小于0.05的基因,其中2025个上调、2072个下调。与上述四个药物靶基因比对,上调的差异表达基因包括LTA4H和ALDH3A2,与孟德尔随机化分析结果一致。TPCN2未在差异表达基因中发现被排除,CTSB在皮肤黑色素瘤细胞中低表达与孟德尔随机化结果不一致也被排除。
3.PheWAS分析结果: LTA4H与皮肤癌、室上性早搏、非恶性腹水和低体温存在显著因果关联,进一步证实LTA4H可影响皮肤癌发病率。ALDH3A2与甲状旁腺疾病、肾盂肾炎、眼部炎症、不明原因发热、肉芽肿病和溃疡性结肠炎相关,但与皮肤黑色素瘤无直接关联,因此细胞实验仅针对LTA4H开展。
4.LTA4H在黑色素瘤细胞中高表达: RT-PCR和蛋白质印迹分析显示,与HSF细胞相比,A-375、SK-MEL-28和M14细胞的LTA4H mRNA和蛋白表达显著更高,其中SK-MEL-28表达最高,其次为A-375,M14相对较低。
5.LTA4H敲低抑制SK-MEL-28细胞恶性功能: CCK-8实验显示敲低LTA4H后细胞活力显著改变;EdU实验显示LTA4H-siRNA-1和siRNA-2组增殖率显著降低;克隆形成实验显示集落形成显著受损;Transwell侵袭和迁移实验显示侵袭和迁移细胞数显著减少;划痕愈合实验显示迁移距离明显缩短;TUNEL实验显示凋亡显著增加;JC-1染色显示线粒体膜电位降低。
6.LTA4H过表达增强A-375细胞恶性功能: PCR和蛋白质印迹证实过表达效率;CCK8实验显示细胞增殖加快;Ki-67表达增加;克隆形成数增多;Transwell实验显示侵袭和迁移能力增强;划痕实验显示迁移距离更远;TUNEL分析显示凋亡细胞减少;JC-1染色显示线粒体膜电位升高。
7.乌苯美司抑制SK-MEL-28细胞恶性功能: 浓度梯度实验显示乌苯美司对SK-MEL-28的半数抑制浓度为21.05微摩尔,对HSF为28.89微摩尔,显示对黑色素瘤细胞的选择性抑制;时间进程实验显示乌苯美司处理后细胞活力显著下降;RT-qPCR和蛋白质印迹显示LTA4H mRNA和蛋白表达随时间逐渐降低;EdU实验显示增殖显著减少;克隆形成显著受抑;Transwell侵袭和迁移实验显示侵袭和迁移细胞减少;划痕愈合实验证实迁移受损;TUNEL染色显示凋亡增加;JC-1染色显示线粒体膜电位降低。
8.乌苯美司靶向LTA4H抑制A-375细胞恶性功能: RT-PCR显示乌苯美司处理显著降低LTA4H过表达组的LTA4H mRNA表达;蛋白质印迹证实LTA4H蛋白水平升高被乌苯美司显著抑制;CCK-8实验显示乌苯美司降低LTA4H过表达细胞的活力;EdU实验显示乌苯美司减弱LTA4H过表达组的增殖率;克隆形成实验显示乌苯美司显著逆转LTA4H过表达组的集落数增加;Transwell侵袭和迁移实验显示乌苯美司抑制LTA4H过表达增强的侵袭和迁移能力;划痕实验显示乌苯美司缩短LTA4H过表达组的迁移距离;TUNEL实验证实乌苯美司通过抑制LTA4H促进A-375细胞凋亡;JC-1染色显示乌苯美司降低LTA4H过表达组的线粒体膜电位。


结论:本研究通过孟德尔随机化分析在遗传水平揭示了LTA4H与皮肤黑色素瘤之间的强因果关联,验证了LTA4H在三种皮肤黑色素瘤细胞系中高表达,高表达LTA4H导致黑色素瘤细胞增殖、侵袭和迁移增加以及凋亡减少,乌苯美司可通过抑制LTA4H表达并促进凋亡相关蛋白表达来抑制黑色素瘤细胞的增殖、侵袭和迁移,为皮肤黑色素瘤治疗提供了新视角。
讨论:LTA4H是一种炎症介质,因其在慢性肺部疾病和多种癌症发展中的作用而受到关注,其主要功能是促进白三烯A4转化为白三烯B4,后者在趋化性、内皮黏附和白细胞活化中发挥重要生物学功能。已有研究报道LTA4H在人类皮肤癌组织中过表达,LTA4H基因敲除小鼠皮肤癌发病率显著降低,且LTA4H缺失导致细胞周期阻滞于G0/G1期。乌苯美司是从橄榄网状链霉菌培养上清液中鉴定出的二肽免疫调节剂,是成熟的LTA4H抑制剂。本研究具有多项优势:首次应用孟德尔随机化识别与皮肤黑色素瘤相关的药物靶点,利用最广泛的公开皮肤黑色素瘤风险GWAS数据;孟德尔随机化结果在两个重要队列中得到验证;首次在三种黑色素瘤细胞系中验证LTA4H高表达;首次验证乌苯美司可通过抑制LTA4H表达抑制黑色素瘤细胞恶性功能。本研究也存在若干不足:实验仅在黑色素瘤细胞中进行,未在动物实验中验证;尚未探索LTA4H过表达的上游和下游机制以阐明其影响黑色素瘤的通路;FinnGen R11数据随访时间较短、累积病例较少,可能影响研究结果;可成药基因列表来自较早版本,可能未完全反映当前可成药基因组格局。

研究流程如图1所示。在发现阶段,利用eQTLGen联盟的cis-eQTL数据鉴定出2,644个药物靶基因,随后使用英国生物银行的合并CM患者数据进行MR分析。在复制阶段,以FinnGen R11的CM GWAS汇总数据作为结局。这两项MR分析揭示了四个与CM相关的药物靶基因。
随后筛选差异表达基因(DEGs)以鉴定黑色素相关的药物靶基因,并在CM中验证其RNA水平的失调。进行了全表型组关联研究(PheWAS)以评估靶向LTA4H和ALDH3A2的潜在副作用。由于在PheWAS中ALDH3A2与CM之间没有明确关联,后续细胞实验聚焦于LTA4H。
细胞实验包括:(1)在CM细胞中检测LTA4H的mRNA和蛋白水平表达;(2)通过敲低和过表达研究LTA4H在恶性程度中的作用;(3)确定bestatin是否通过抑制LTA4H来调控CM进展。
在发现和复制分析中,IVW揭示了八个药物靶基因与CM之间存在统计学显著的因果关系(P-FDR < 0.05),包括CTSB、CDK10、TPCN2、SLC9A1、RNASE6、LTA4H、CD300LD和ALDH3A2(表1,图2A–H)。与八个药物靶基因相关的IV信息见补充表2。补充表3和S4显示了两次MR分析的结果。其中,CTSB、TPCN2、SLC9A1、LTA4H、CD300LD和ALDH3A2的表达增加增加了CM的风险(P-FDR < 0.05,beta > 0)。RNASE6和CDK10的表达降低增加了CM的风险(P-FDR < 0.05,beta < 0)。
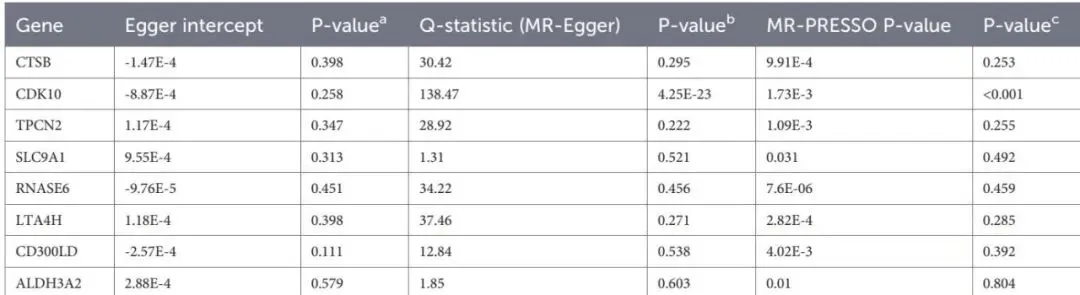
MR-PRESSO、水平多效性和异质性检验的结果见表2。由于MR分析中CDK10与CM的异质性和多效性水平(Q-P值 < 0.05,P-Egger值 < 0.05;表2),CDK10被排除。此外,RNASE6、SLC9A1和CD300LD的beta值和比值比(ORs)在两次分析之间不一致(表1)。因此,这三个药物靶基因被剔除。最终,MR分析结果显示共有四个药物靶基因与黑色素瘤存在因果关系。如表1所示,随着CTSB、TPCN2、LTA4H和ALDH3A2表达水平的升高,CM的风险增加(P-FDR < 0.05,OR > 1)。
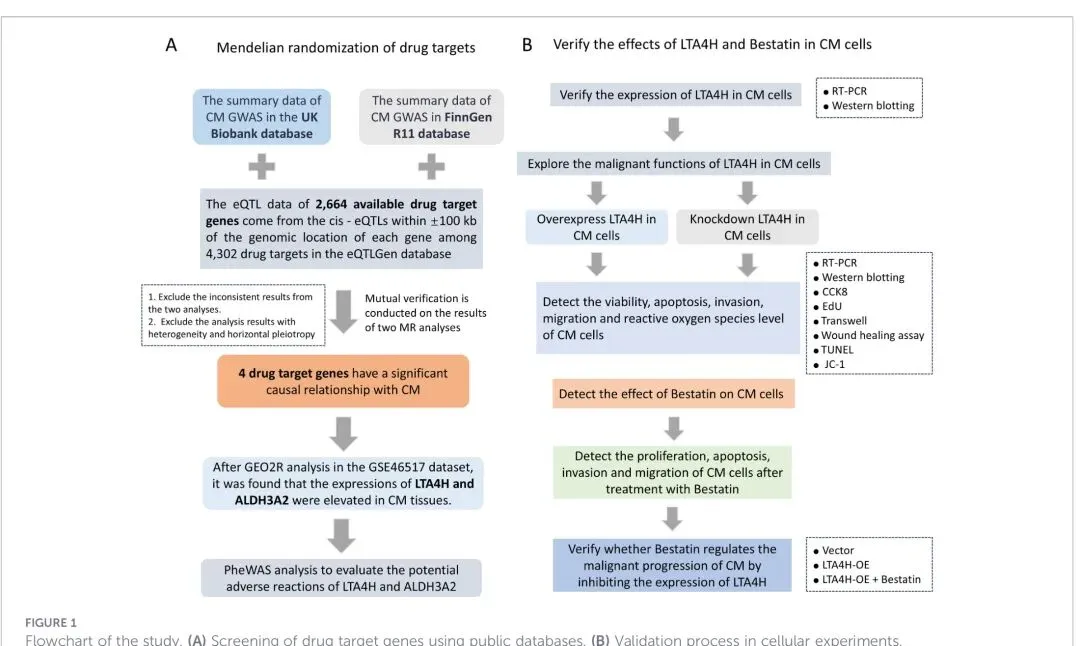
表1 药物靶基因与黑色素瘤的孟德尔随机化结果。
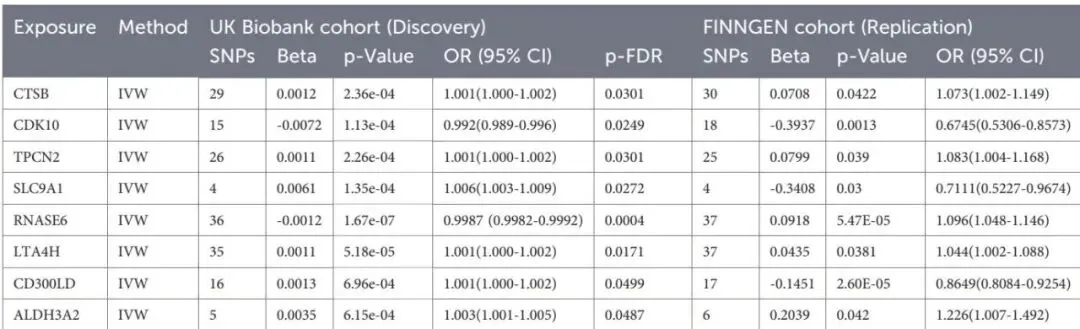
IVW,逆方差加权;SNPs,单核苷酸多态性。
GSE46517数据集包括31例CM患者和7例健康对照的皮肤样本。经GEO2R筛选DEGs后,共筛选出4,098个P值小于0.05的基因,其中2,025个上调,2,072个下调(补充表5)。与上述鉴定的四个药物靶基因进行比较,上调的差异表达基因(DEGs)包括LTA4H和ALDH3A2(logFC > 0,P-adj < 0.05)(补充表5),这与我们的MR分析结果一致。由于TPCN2未在DEGs中发现,因此被排除。此外,GEO2R分析结果显示CTSB在CM细胞中低表达(补充表5),这与我们的MR结果不一致。因此,CTSB也被排除。
利用PheWeb数据库,我们进行了PheWAS以鉴定LTA4H和ALDH3A2的潜在副作用。如表3所示,PheWAS结果揭示了LTA4H与皮肤癌、室上性早搏、非恶性腹水和低体温之间存在显著的因果关系。这些结果进一步证实了我们的发现,即LTA4H可影响皮肤癌的发病率以及其他疾病的发生。ALDH3A2与甲状旁腺疾病、肾盂肾炎、眼部炎症、不明原因发热、肉芽肿病和溃疡性结肠炎相关,但与CM无直接关联。因此,在实验部分,我们仅进行了与LTA4H相关的细胞实验。
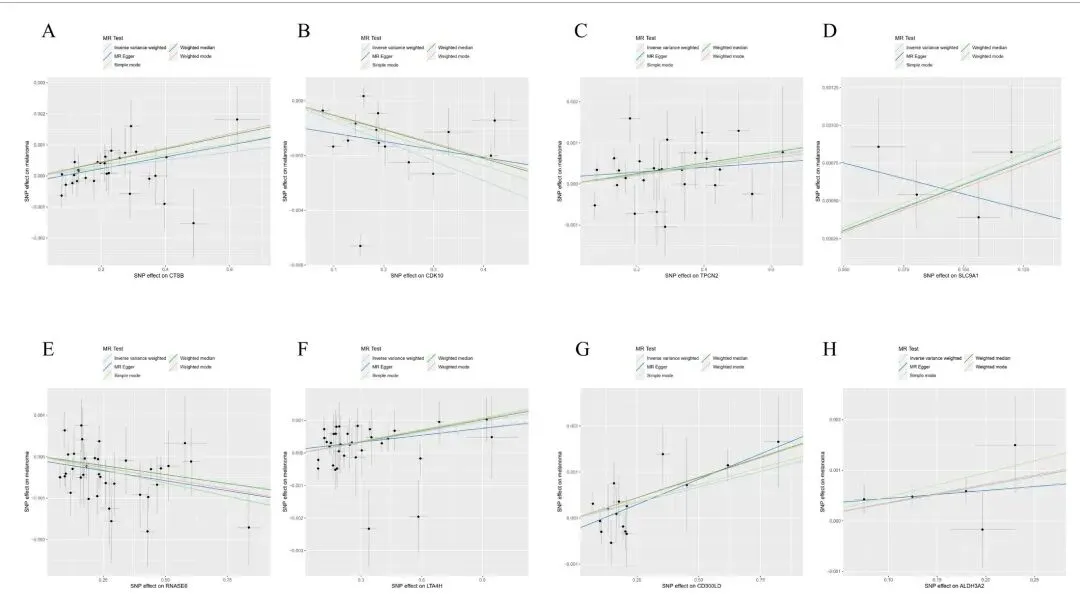
表2 英国生物银行中与黑色素瘤存在因果关系的药物靶基因的异质性检验和水平多效性。
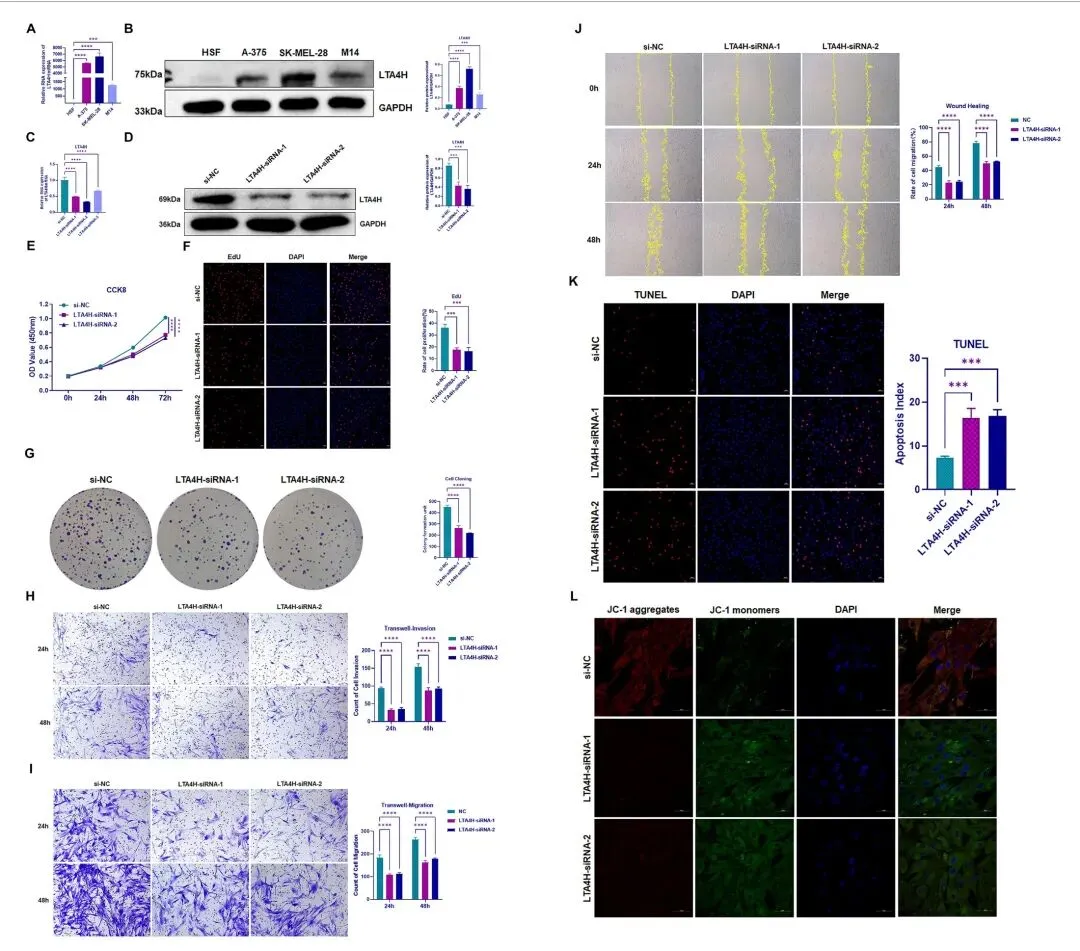
首先,我们确认了LTA4H在黑色素瘤细胞系如A-375、SK-MEL-28和M14以及正常人真皮成纤维细胞HSF中均在mRNA和蛋白水平表达。RT-PCR和western blot分析显示,与HSF细胞相比,A-375、SK-MEL-28和M14细胞呈现显著更高的LTA4H mRNA和蛋白表达。值得注意的是,SK-MEL-28细胞系表达最高(P < 0.0001),其次是A-375(P < 0.0001),M14表达相对较低(P = 0.0001)(图3A,B)。为进一步分析LTA4H在黑色素瘤中的作用,我们生成了三条LTA4H siRNA并在SK-MEL-28细胞中确认了其沉默效力。当使用RT-PCR比较LTA4H-siRNA-1、-siRNA-2和-siRNA-3组与si-NC组之间LTA4H的mRNA水平时,所有差异均具有统计学意义,P值小于0.0001(图3C)。同样,western blot分析显示siRNA-1(P = 0.0005)和siRNA-2(P = 0.0003)组中LTA4H蛋白表达降低(图3D)。
基于PheWeb数据库的药物靶基因PheWAS结果。
CCK-8实验表明,SK-MEL-28细胞中LTA4H敲低导致细胞活力发生显著变化,表现为24、48和72小时OD450值的改变(图3E)。EdU实验进一步揭示,与对照组相比,LTA4H-siRNA-1(0.17 ± 0.01 vs. 0.36 ± 0.02,P = 0.0003)和LTA4H-siRNA-2(0.16 ± 0.03 vs. 0.36 ± 0.02,P = 0.0002)组的增殖率显著降低(图3F),表明LTA4H促进SK-MEL-28细胞增殖。同样,LTA4H沉默后集落形成显著受损(图3G)。
Transwell侵袭和迁移实验显示,LTA4H敲低在24和48小时显著减少了侵袭和迁移细胞的数量(图3H,I)。这些发现得到了划痕愈合实验结果的印证,该实验显示siRNA处理组的迁移距离明显更短(图3J)。此外,TUNEL实验显示LTA4H沉默细胞的凋亡显著增加(图3K)。最后,JC-1染色显示线粒体膜电位降低,表现为敲低组红色荧光减弱和绿色荧光增强(图3L)。
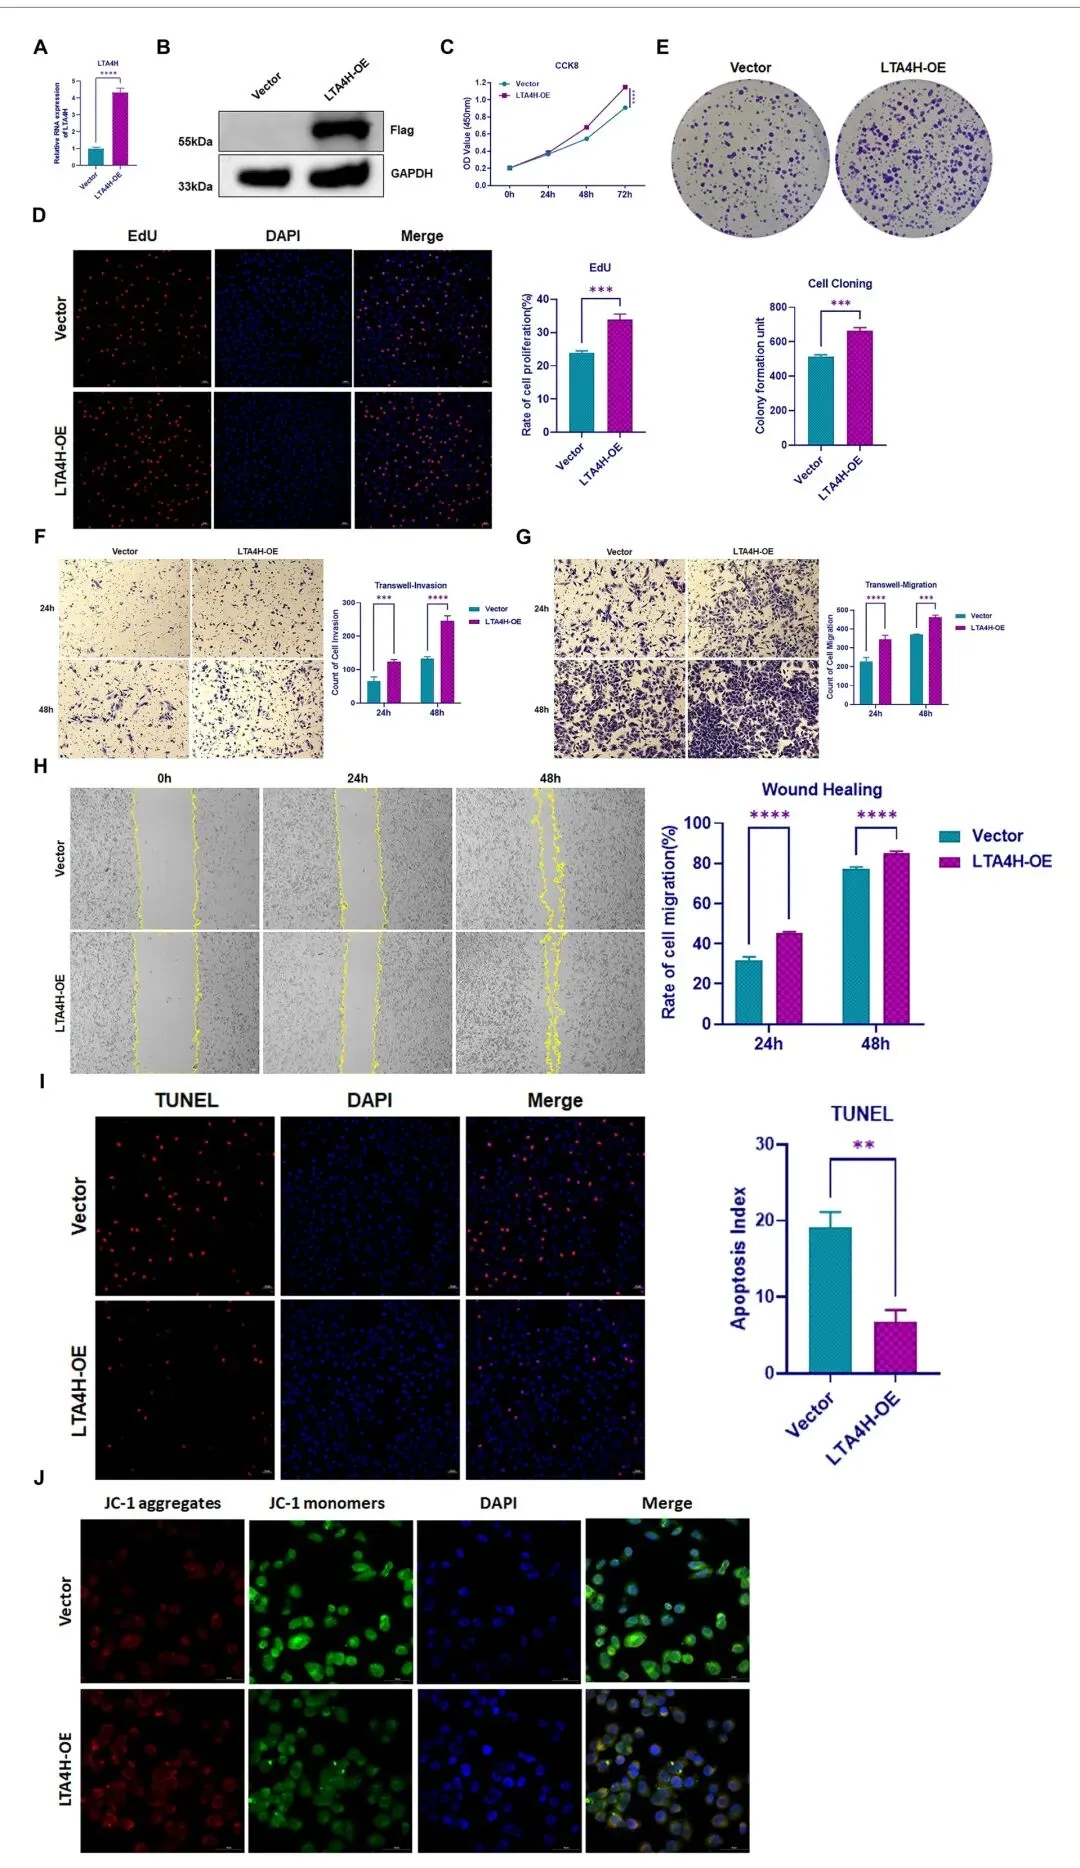
为确定LTA4H如何影响黑色素瘤,我们设计了LTA4H过表达质粒并评估了其对A-375细胞的影响。因此,PCR分析表明LTA4H过表达细胞的mRNA含量显著高于对照细胞(4.32 ± 0.27 vs. 1.00 ± 0.09,P < 0.0001;图4A)。这些发现在蛋白水平上通过western blot进一步得到证实,如图4B所示。CCK8实验也显示这些细胞在长期内增殖更快,表现为更高的OD值(图4C)。结果还显示LTA4H-OE组中Ki-67表达增加(0.34 ± 0.02 vs.
0.24 ± 0.00,P = 0.0005;图4E)。LTA4H-OE组形成的集落数更多(663 ± 19 vs. 514 ± 10, P = 0. 0005;;图4E)。还测量了这些细胞的增殖和迁移能力,通过Transwell实验发现其高于对照细胞(图4F和5G)。划痕实验证实了这些发现,因为LTA4H过表达细胞在培养期后迁移距离大于对照细胞(图4H)。TUNEL分析显示凋亡细胞数低于对照组( 0. 07 ± 0. 02 vs. 0. 19 ± 0. 02; P = 0. 0010 ),如图4I所示。最后,JC-1染色显示LTA4H-OE组线粒体膜电位增加,表现为红色荧光增强和绿色荧光减弱(图4J)。
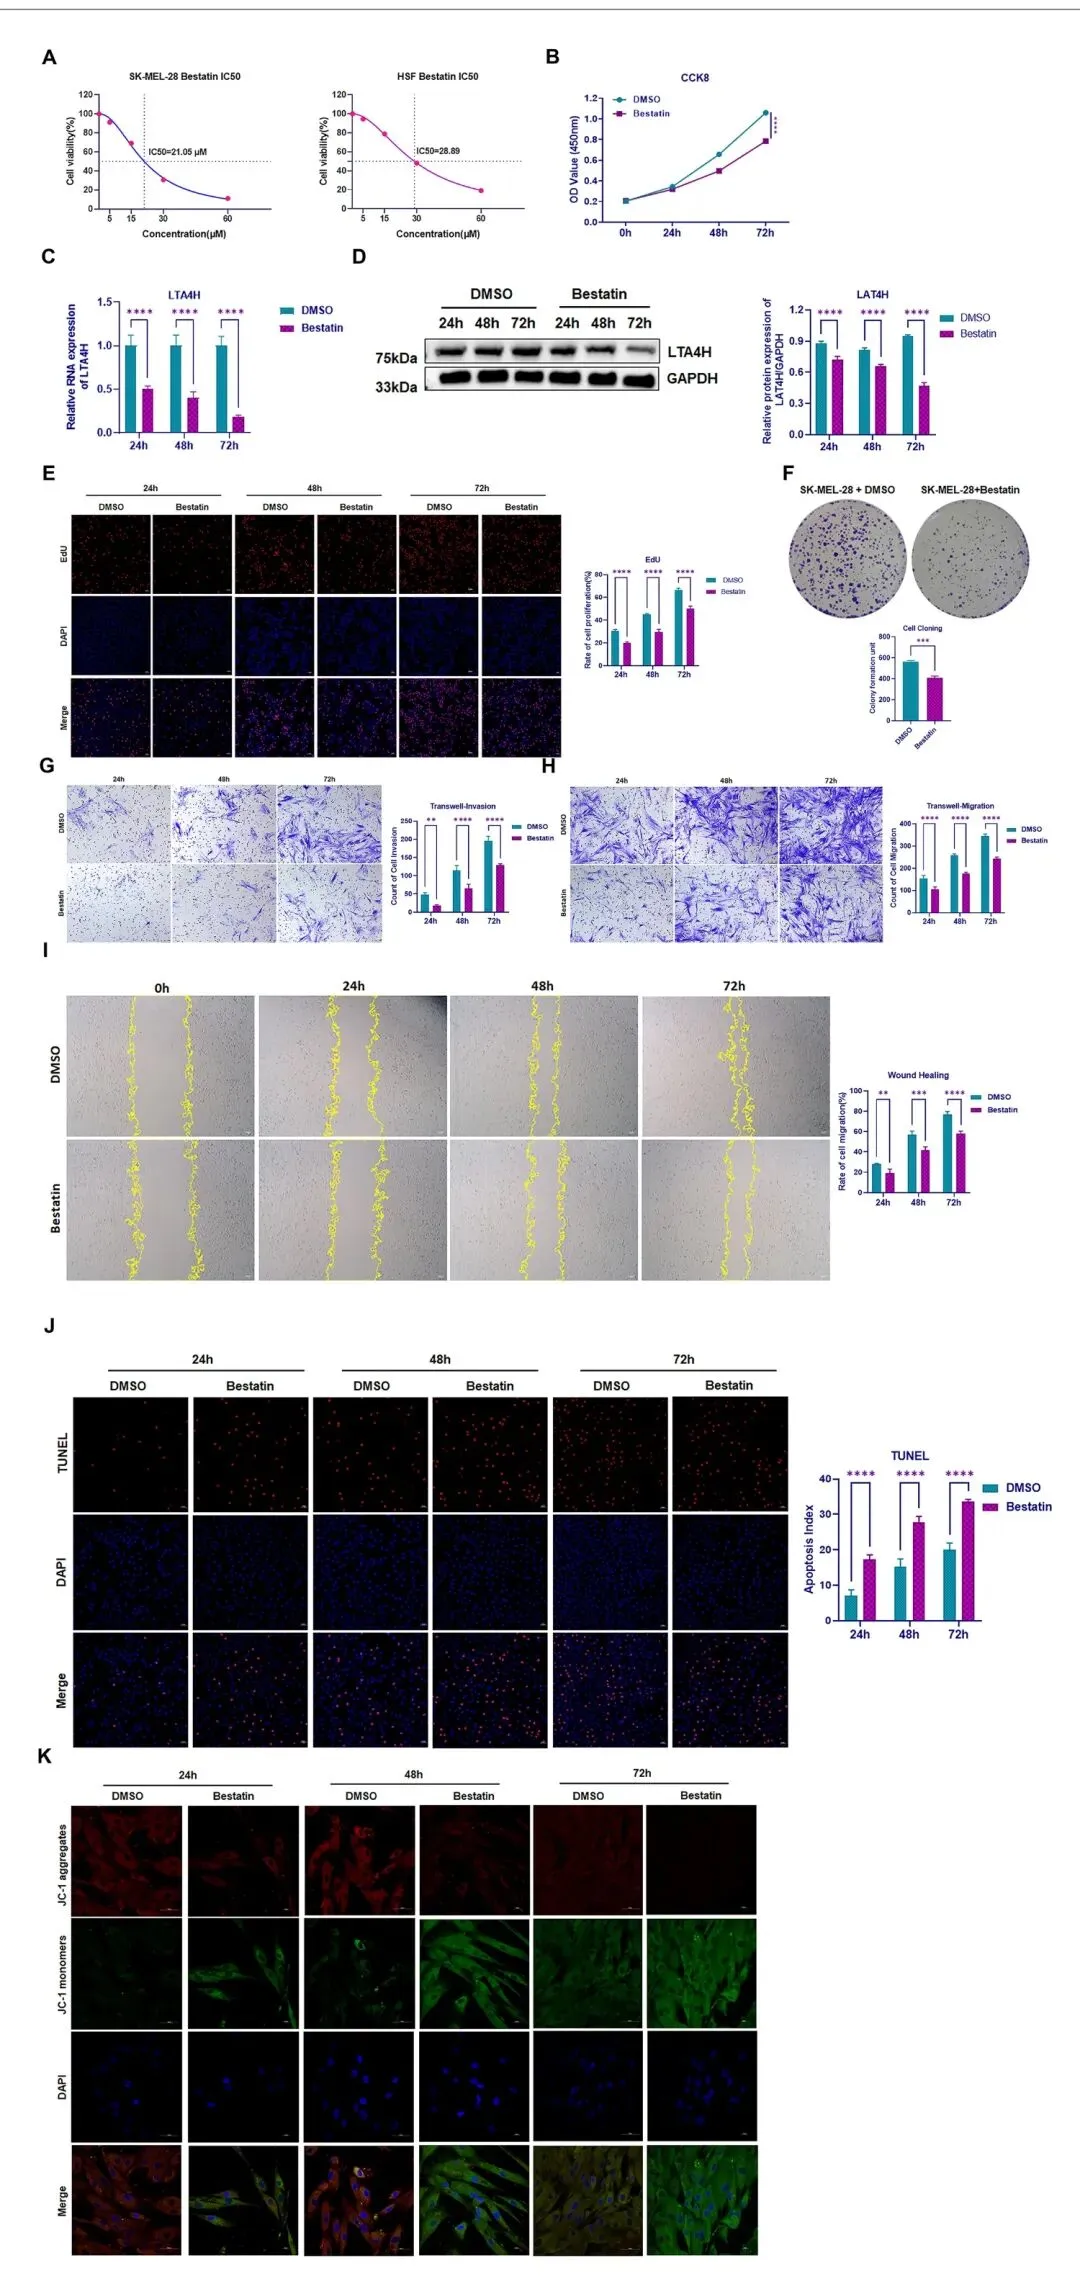
Bestatin对SK-MEL-28细胞增殖、迁移、侵袭、凋亡、线粒体膜电位和LTA4H表达的影响。(A)剂量-反应曲线展示Bestatin对SK-MEL-28细胞和HSF细胞活力的影响。Bestatin对SK-MEL-28的IC50值确定为21.05 mM,对HSF细胞为28.89 mM。(B)采用CCK8实验测量DMSO处理和Bestatin处理组在24小时、48小时和72小时期间的450nm光密度(OD450)。(C)RT-PCR分析DMSO或Bestatin处理不同时间点(24、48、72小时)SK-MEL-28细胞中LTA4H mRNA表达。(D)Western blot分析DMSO或Bestatin处理不同时间点(24、48、72小时)SK-MEL-28细胞中LTA4H蛋白表达。GAPDH用作上样对照。(E)EdU实验显示DMSO或Bestatin处理不同时间点(24、48、72小时)SK-MEL-28细胞的细胞活力。24小时与Bestatin组相比P<0.0001;48小时与Bestatin组相比P<0.0001;72小时与Bestatin组相比P<0.0001。(F)克隆形成实验揭示DMSO或Bestatin处理SK-MEL-28细胞形成的集落数。与Bestatin组相比P<0.001。(G)Transwell侵袭实验展示DMSO或Bestatin处理不同时间点(24、48、72小时)SK-MEL-28细胞侵袭细胞数。24小时与Bestatin组相比P<0.01;48小时与Bestatin组相比P<0.0001;72小时与Bestatin组相比P<0.0001。(H)Transwell迁移实验揭示DMSO或Bestatin处理不同时间点(24、48、72小时)SK-MEL-28细胞迁移细胞数。24小时与Bestatin组相比P<0.0001;48小时与Bestatin组相比P<0.0001;72小时与Bestatin组相比P<0.0001。(I)划痕愈合实验显示DMSO或Bestatin处理不同时间点(24、48、72小时)SK-MEL-28细胞划痕愈合面积百分比。24小时与Bestatin组相比P<0.01;48小时与Bestatin组相比P<0.001;72小时与Bestatin组相比P<0.0001。(J)TUNEL实验表明DMSO或Bestatin处理不同时间点(24、48、72小时)SK-MEL-28细胞的凋亡。24小时与Bestatin组相比P<0.0001;48小时与Bestatin组相比P<0.0001;72小时与Bestatin组相比P<0.0001。(K)JC-1实验揭示DMSO或Bestatin处理不同时间点(24、48、72小时)SK-MEL-28细胞的线粒体膜电位。
使用10–100 mM浓度梯度的bestatin通过CCK-8实验评估其对SK-MEL-28和HSF细胞的细胞毒性。SK-MEL-28的IC50值为21.05 mM(95% CI:19.2–22.9),HSF为28.89 mM(95% CI:26.1–31.7),表明其对黑色素瘤细胞具有选择性抑制作用(图5A)。
时间过程实验结果显示,与DMSO对照相比,bestatin处理细胞在24、48和72小时的OD450显著降低(P < 0.0001;图5B)。RT-qPCR分析显示,与DMSO组相比,bestatin组中LTA4H mRNA表达随时间逐渐降低(图5C)。同样,western blot分析显示bestatin处理细胞中LTA4H蛋白水平逐渐降低(图5D)。
EdU实验显示bestatin处理后24、48和72小时细胞增殖显著减少(图5E)。Bestatin组集落形成也显著受到抑制(图5F)。Transwell侵袭实验显示bestatin组在所有时间点侵袭细胞均较少(图5G),迁移实验同样表明24和48小时细胞迁移减少(图5H)。划痕愈合实验进一步证实了bestatin处理细胞迁移受损(图5I)。
TUNEL染色显示,与DMSO对照组相比,bestatin组在24、48和72小时凋亡增加(图5J)。JC-1免疫荧光染色显示bestatin处理细胞中红色荧光减弱和绿色荧光增强,反映线粒体膜电位降低(图5K)。
为进一步验证bestatin在调节黑色素瘤中LTA4H活性中的作用,使用RT-PCR定量LTA4H mRNA水平。结果显示LTA4H-OE组中LTA4H mRNA表达显著高于载体对照组(3.40 ± 0.12 vs. 1.00 ± 0.08,P < 0.0001)。重要的是,bestatin处理显著降低了LTA4H-OE组中LTA4H的表达(2.95 ± 0.09 vs. 3.40 ± 0.12,P = 0.0003)(图6A)。Western blot分析进一步证实,与载体对照组相比,LTA4H-OE组中LTA4H蛋白水平显著升高(1.06 ± 0.01 vs. 0.61 ± 0.07,P < 0.0001),而bestatin显著抑制了这一增加(0.78 ± 0.03 vs. 1.06 ± 0.01,P = 0.0006)(图6B)。
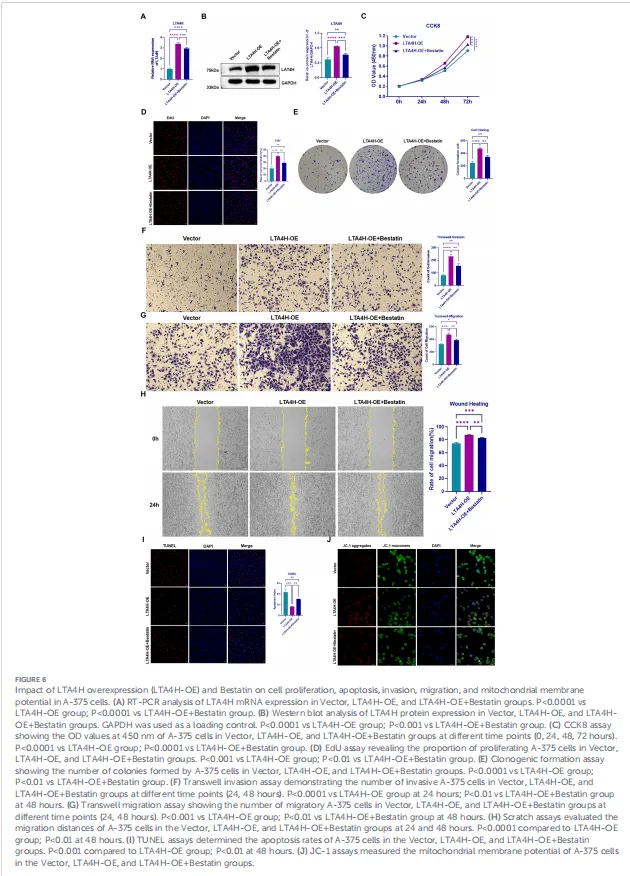
CCK-8实验显示,以24小时、48小时和72小时OD450值反映的细胞活力在LTA4H-OE组中显著高于载体对照组。相反,bestatin处理在所有时间点明显降低了LTA4H-OE细胞的OD值,表明细胞活力降低(图6C)。EdU实验显示,与载体对照组相比,LTA4H-OE组增殖率显著增加( 0. 40 ± 0. 01 vs. 0. 20 ± 0. 03, P < 0. 0001 ),而bestatin减弱了这一效应(0.29 ± 0.02 vs. 0.40 ± 0.01,P = 0.0016)(图6D)。集落形成实验同样显示,与载体对照组相比,LTA4H-OE组集落数显著增加(472 ± 14 vs. 246 ± 26,P < 0.0001),而bestatin显著逆转了这一效应(343 ± 24 vs. 472 ± 14,P = 0.0010)(图6E)。
Transwell侵袭实验显示,LTA4H-OE组在24小时和48小时的侵袭细胞数均显著多于对照组,而bestatin抑制了这一增加(图6F)。同样,Transwell迁移实验显示LTA4H-OE组迁移活性增强,而bestatin处理后显著降低(图6G)。划痕实验进一步支持这些结果:LTA4H-OE组的迁移距离显著大于载体对照组(0.87 ± 0.01 vs. 0.75 ± 0.01,P < 0.0001),与单独LTA4H相比,bestatin缩短了迁移距离(0.83 ± 0.01 vs. 0.87 ± 0.01,P = 0.0045)(图6H)。
TUNEL凋亡实验证实bestatin通过抑制LTA4H促进A-375细胞凋亡。LTA4H-OE组凋亡细胞百分比显著低于载体对照组(0.08 ± 0.00 vs. 0.22 ± 0.03,P = 0.0002),而LTA4H-OE + bestatin组显著高于LTA4H-OE组(0.15 ± 0.00 vs. 0.08 ± 0.00,P = 0.0068)(图6I)。JC-1免疫荧光染色显示,LTA4H-OE组线粒体膜电位升高,表现为红色荧光增强和绿色荧光减弱。相反,LTA4H-OE + bestatin组显示绿色荧光增强和红色荧光减弱,反映线粒体膜电位降低(图6J)。

更多结果和补充图表:
PMID:42582114
DOI:10.3389/fimmu.2026.1901844
不想做实验,没数据,还想要快速发表文章,没问题的!公共数据库就是我们的数据宝藏!没思路不用担心,作为专业的生信团队,我们很乐意为您效劳,提供研究路线设计和数据挖掘分析,扫码联系我们吧!
可向下滑动发掘更多科研秘籍!