ARTICLE · 1058412
3区3分!外显子+罕见变异负担+AI结构验证:三近亲家系锁定IBD关键蛋白LILRB1/PRSS为炎症性肠病发病机制的潜在关键蛋白
还在为复杂疾病的遗传谜题头疼吗?这篇来自Frontiers in Medicine的研究,用三个近亲结婚的沙特家系外显子数据,通过罕见变异负荷分析,锁定了LILRB1和PRSS3两个潜在关键蛋白,为炎症性肠病的遗传机制提供了新线索!
真正开启不学R语言时代!!!关注本号私信“资料”两字,免费领取>5篇0代码云平台复现5-15分公共数据库挖掘SCI全文教程!轻松入门生信分析!秒变生信分析大神!

新鲜出炉!今天给大家深度剖析一篇2026年发表在《Frontiers in Medicine》上的文章,题目为:三个近亲家系外显子罕见变异负荷分析揭示LILRB1和PRSS3为炎症性肠病发病机制的潜在关键蛋白
Rare variant burden analysis from exomes of three consanguineous families reveals LILRB1 and PRSS3 as potential key proteins in inflammatory bowel disease pathogenesis.
本研究对三个患有多名炎症性肠病兄弟姐妹的沙特近亲家系进行全外显子测序,结合人工智能与生物信息学多维分析,发现LILRB1和PRSS3基因的罕见变异通过影响先天性和适应性免疫通路及中性粒细胞脱颗粒,可能参与炎症性肠病的发病。
影响因子:3
发表期刊:Frontiers in Medicine
团队成员合影(位于上海陆家嘴中心,可随时预约参观)



聚焦近亲家系罕见变异: 选取三个近亲结婚且多名兄弟姐妹患炎症性肠病的沙特家系,利用全外显子测序挖掘高外显率罕见变异。
罕见变异负荷分析策略: 鉴于经典孟德尔分离模型未能识别出符合常染色体隐性、复合杂合或新发突变模式的单一因果变异,转而寻找基因层面的罕见变异聚集负荷。
多维度计算验证体系: 整合功能富集分析、转录表达分析、免疫细胞表达分析、开放靶点表型鉴定及先天免疫系统生物学等多种人工智能与生物信息学工具。
锁定两个关键蛋白: 从八个共享罕见变异基因中,最终优先锁定LILRB1和PRSS3,二者与先天免疫系统密切相关。
蛋白结构层面的致病性验证: 通过氨基酸保守结构域定位、三维结构建模及稳定性分析,确认关键变异对相应蛋白结构特征具有负面影响。


首次将PRSS3与炎症性肠病关联: 这是首次通过三个沙特家系的共享罕见变异负荷分析,报道PRSS3基因与迟发型炎症性肠病的潜在新角色。
提出炎症性肠病遗传解析新策略: 将家系全外显子测序数据与计算多维生物学数据分析相结合,为经典孟德尔分离模型难以解释的复杂疾病提供新思路。
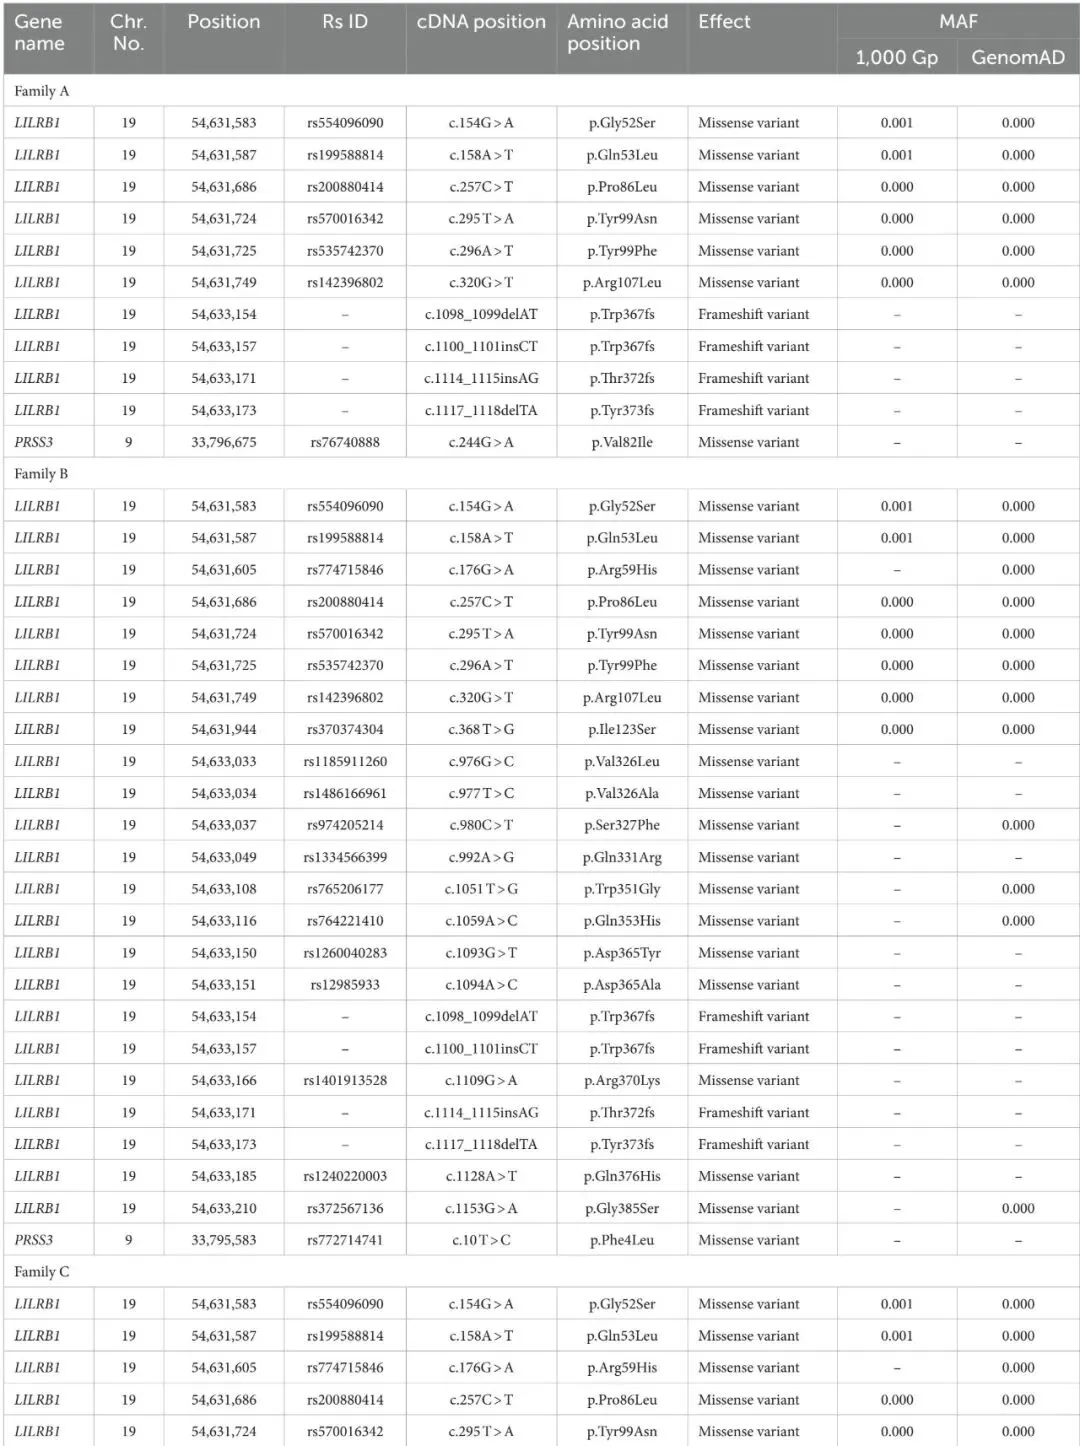
发现LILRB1罕见变异聚集: 三个家系共享10个LILRB1罕见变异(6个错义和4个新移码变异),另有两个家系间共享11个独特错义变异。
揭示PRSS3家系间变异差异: 家系A和C共享PRSS3错义变异(c.244G>A; rs76740888),家系B存在另一错义变异(c.10T>C; rs772714741)。
多工具一致性验证: 八个基因均在至少两种工具中显示显著,其中七个基因在炎症性肠病组织、正常组织及多种免疫细胞中均有表达。


炎症性肠病是一种以肠道严重炎症和黏膜破坏为特征的慢性自身免疫性疾病,主要包括克罗恩病和溃疡性结肠炎。全基因组关联研究已发现200多个常见风险位点,但多数为内含子变异。罕见且高外显率的变异通过人群特异性队列或家系研究,对解析炎症性肠病等复杂疾病具有巨大潜力。阿拉伯人群近亲结婚率高,沙特炎症性肠病患者近亲结婚率高达32.6%,近亲结婚是多种常染色体隐性免疫疾病的先决风险因素。然而,已发表的阿拉伯炎症性肠病家系遗传学信息有限,迟发型炎症性肠病具有多基因病因,环境因素决定易感性和发病年龄,单一基因模型往往无法解释其复杂分子病因。


家系招募与样本采集: 在阿卜杜勒阿齐兹国王大学医院消化内科招募三个无亲缘关系的沙特近亲家系,家系A有2名患病兄弟姐妹,家系B和C各有3名,采集外周血并构建三代 pedigree。
全外显子测序: 使用Illumina HiSeq2000平台进行测序,Agilent SureSelect V7.0捕获试剂盒富集外显子区域,测序reads比对到GRCH38.p12参考基因组。
变异过滤与分离分析: 按深度、质量、等位基因频率等标准过滤变异,并在常染色体隐性、复合杂合和新发等遗传模型下进行分离分析。
罕见变异负荷基因鉴定与功能富集: 通过Venny工具识别三家系共享的罕见变异基因,利用ClueGo进行免疫通路功能富集分析。
计算功能验证: 使用Expression Atlas、DICE、Open Targets、InnateDB、GeneMANIA等数据库进行基因表达、免疫细胞表达、表型关联、先天免疫系统生物学及基因互作网络分析。
蛋白结构与稳定性分析: 利用CDD定位保守结构域,AlphaFold和I-TASSER构建三维结构,SWISS-MODEL生成突变体模型,YASARA计算RMSD,MAESTRO预测稳定性变化。


临床表现与家系特征: 家系A先证者27岁,22岁确诊克罗恩病,其弟20岁,17岁确诊;家系B父母为同一阿拉伯部落远亲,3名兄弟姐妹患病;家系C父母为表亲,3名男性兄弟姐妹患病,其中两名为同卵双胞胎。
外显子测序变异产出: 家系A、B、C分别平均获得97,242、98,011、96,297个变异,过滤后分别保留3,498、3,721、3,679个罕见编码变异,大多数为错义类型。
功能富集分析: 家系A、B、C分别有180、114、116条免疫相关通路,其中23、21、29条显著富集。三家系共享95个GO术语,关联163个基因,最终仅8个罕见变异基因在三个家系中共同存在。
转录表达分析: 8个基因中7个在结肠和黏膜组织中差异表达,ZDHHC11和PRSS3下调,LILRB3、LILRA2、LILRB1、PRSS2和LILRA1上调。PRSS3在小肠和结肠中高表达。
免疫细胞表达: LILRB1、LILRB3、LILRA1和LILRA2在单核细胞和自然杀伤细胞中高表达,LILRB3在经典和非经典单核细胞中平均表达量分别为175.84和152.3 TPM。
开放靶点表型鉴定: 8个基因中仅4个与胃肠道或免疫系统疾病表型关联评分大于0.1,KMT2C与溃疡性结肠炎共享表型,总体关联评分大于0.37。
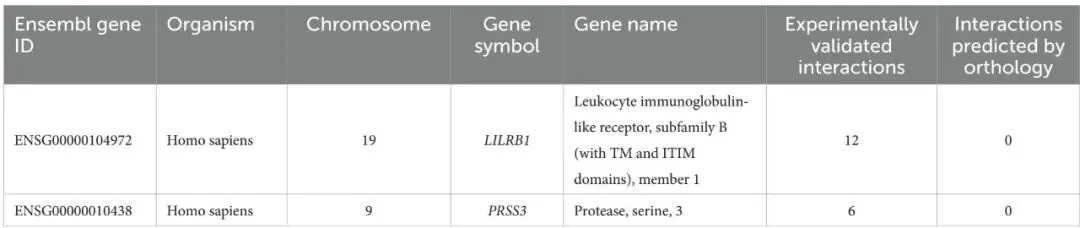
先天免疫系统生物学: 8个基因中仅LILRB1和PRSS3与人类先天免疫应答存在物理互作或关联。LILRB1定位于19号染色体,有12个实验验证的互作;PRSS3与6个其他基因互作。
共享罕见变异通路分析: LILRB1连接适应性免疫系统、免疫系统及淋巴与非淋巴细胞间免疫调节互作三条通路;PRSS3参与中性粒细胞脱颗粒、先天免疫系统、抗菌肽等10条通路。
基因网络分析: PRSS3的多个物理互作伙伴与LILRB1的互作伙伴共调控和共表达,这些蛋白间间接失调的互作可能触发炎症性肠病炎症。
保守结构域与蛋白稳定性: LILRB1含免疫球蛋白超家族结构域(28-419位氨基酸),PRSS3含胰蛋白酶样丝氨酸蛋白酶结构域(38-256位)。16个LILRB1变异中5个(Q53L、Y99N、W351G、D365Y、D365A)对蛋白有去稳定作用,2个PRSS3变异(F4L和V25I)同样具有去稳定效应。


结论:本研究提出了一种通过结合家系全外显子测序与计算多维生物学数据分析来理解炎症性肠病遗传复杂性的新策略。研究发现LILRB1和PRSS3两个潜在关键蛋白中的罕见和新变异,可能通过先天性和适应性免疫系统通路及中性粒细胞脱颗粒等多种重要免疫通路参与炎症性肠病发病。LILRB1的罕见变异可能失调适应性免疫等通路,PRSS3的罕见变异可能扰动先天免疫系统和中性粒细胞脱颗粒等通路,这些通路缺陷可能损害自身免疫,导致炎症性肠病等自身免疫相关疾病的发生。
讨论:大多数炎症性肠病遗传研究集中于通过全基因组关联研究识别效应较小的常见变异,而通过人群特异性队列或家系研究识别的罕见高外显率变异对复杂疾病具有巨大潜力。本研究未发现符合经典孟德尔分离模式的因果罕见变异,这与迟发型炎症性肠病作为复杂多因子疾病的特点一致。研究存在一定局限性:仅限三个家系,需更多家系验证;计算方法的预测结果需后续生物学实验验证;LILRB1和PRSS3遗传变异对肠道细胞系和动物模型的作用有待进一步研究。

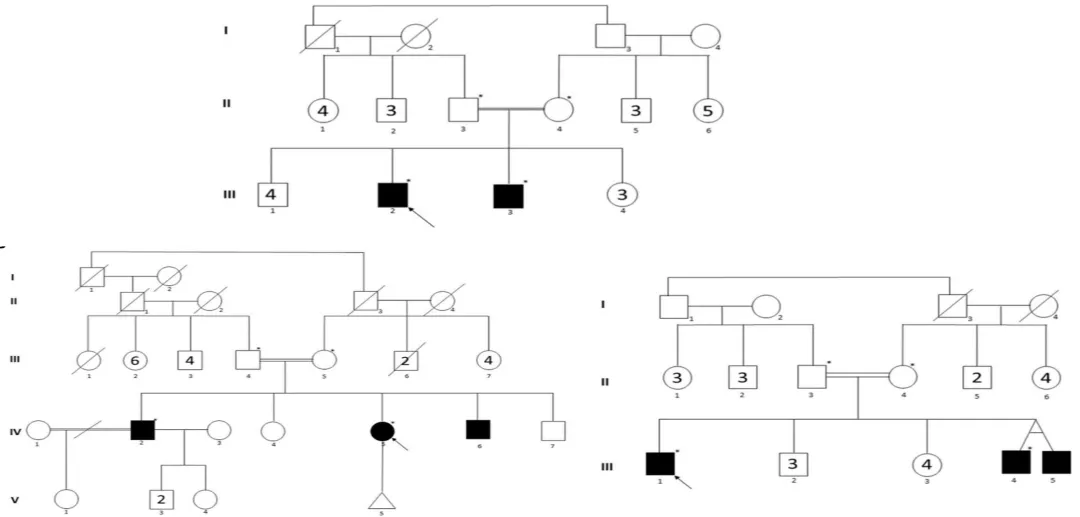
在家族A(图1A)中,先证者(III.2),27岁,为一级表亲近亲婚配的后代,无炎症性肠病家族史。他于22岁时首次被诊断为克罗恩病,出现恶心、厌食和盗汗等多种症状。其内镜检查结果证实了克罗恩病的诊断,表现为食管黏膜糜烂、点状白斑以及出血性胃病(图2)。他目前正在接受Pentaza(美沙拉秦)治疗,这是一种5-氨基水杨酸衍生物,以及Imuran(硫唑嘌呤AZA),一种免疫抑制药物。他的弟弟(III.3),现年20岁,于17岁时首次被诊断为克罗恩病。他具有相似严重的症状,包括嗜睡、头晕和厌食。起初,他被诊断为结核病并接受了9个月的治疗。此后,在进行确诊性内镜检查时发现胃肠道炎症复发。内镜检查结果为末端回肠紧密、发炎以及肠结肠瘘。然后,2年后进行了第二次内镜检查,发现升结肠和盲肠存在严重炎症,伴有解剖结构扭曲,其特征为血管纹理改变、充血(水肿)、红斑和假性息肉。与之前的检查相比,这些发现更为严重
与之前的检查相比(图2)。他目前正在接受Remicade(英夫利昔单抗)治疗,这是一种嵌合单克隆抗体,用于治疗包括IBD在内的多种自身免疫性疾病。
在家族B(图1B)中,父母是来自同一阿拉伯部落的健康远亲。在该家族中,一名女性和两名男性同胞被诊断为克罗恩病。先证者(IV.2)在25岁时被诊断,目前正在服用Humira(单克隆抗体)。他的姐姐(IV.5)在近30岁时被诊断,她接受了结肠切除术和造口术。他的弟弟(IV.6)在25岁时被诊断,并接受Remicade(英夫利昔单抗)治疗2年。
在家族C(图1C)中,父母为一级表亲且健康,但母亲有一些肠道炎症。有趣的是,在三个受累的男性同胞中,两个为同卵双胞胎。先证者(III.1)于3年前被诊断,现在32岁。自诊断以来,他一直每2个月接受一次Remicade单克隆抗体治疗。双胞胎(III.4和III.5),现年29岁,均在6年前被诊断,分别在26岁和24岁时接受了结肠切除术。
对许多家族成员进行的全外显子组测序在家族A、B和C中分别平均提供了97,242、98,011和96,297个变异。通过排除3'和5' UTR变异、保守性和破坏性框内缺失或插入、同义、基因间和内含子变异、高等位基因频率(>0.01)的编码变异以及Phred分数<30的低质量变异,进一步过滤了这些大量的变异。纳入罕见编码变异后,家族A得到3,498个变异(位于1,455个基因中),家族B得到3,721个变异(位于1,571个基因中),家族C得到3,679个变异(位于1,668个基因中)。所有三个家族中的大多数编码变异均为错义类型(表1)。对各自IBD家族中变异的分离分析未检测到任何遵循经典AR、CH(复合杂合子)或新生遗传模式的单一罕见变异。因此,我们寻找了会增加这些家族中基因负荷状态的罕见变异聚集。
对来自各个家族的罕见变异基因进行功能富集分析,结果显示家族A、B和C分别有180、114和116条免疫相关通路。在家族A、B和C中,分别有23、21和29条免疫通路显著富集(p = <0.05)。
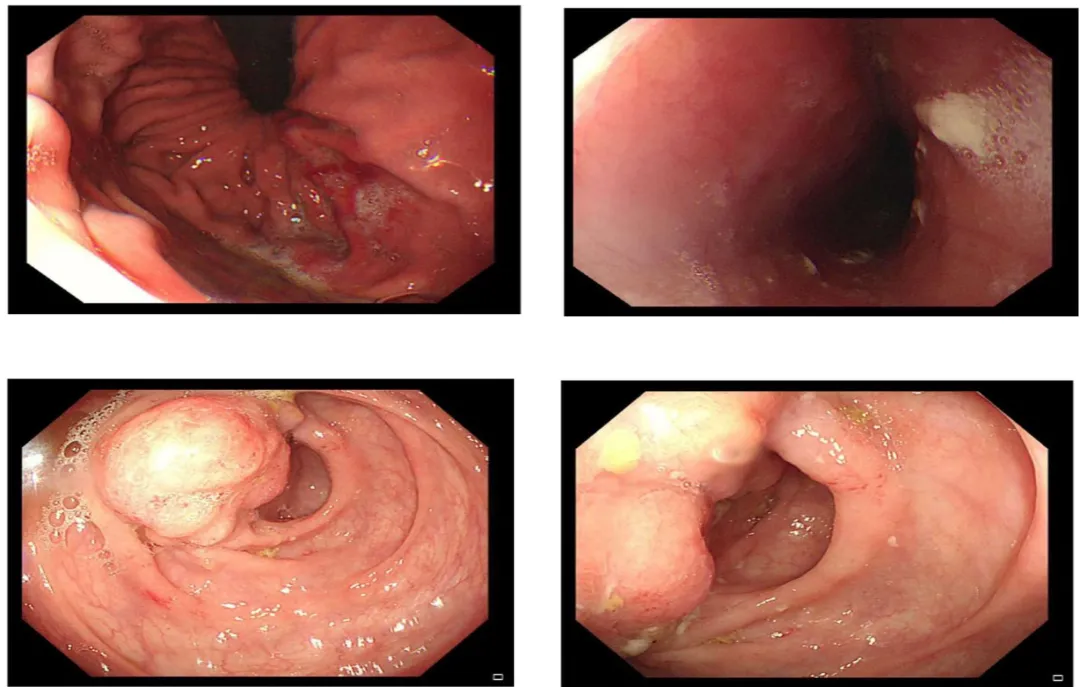
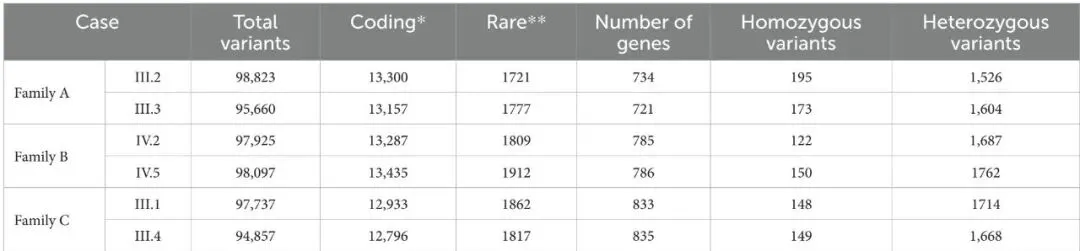
表2列出了每个家族中前五位显著免疫通路。
共有95个(61.3%)GO术语被三个家族共享,并使用VENNY工具进行分析。排除人类白细胞抗原(HLA)复合体基因家族(因其已知参与多种自身免疫性疾病)后,这些GO术语与163个基因相关。当我们分析所有163个基因时,仅发现8个具有罕见变异的基因在三个家族中均存在(图3A,B)。
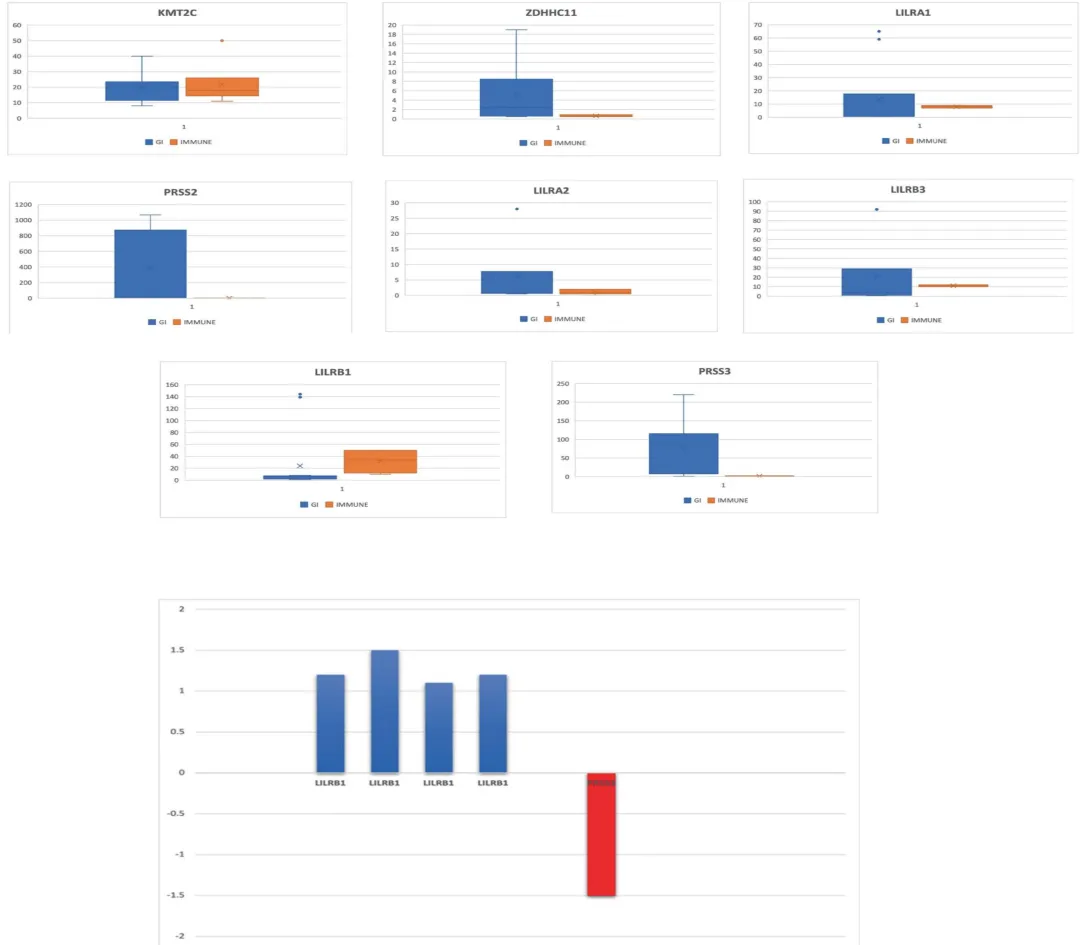
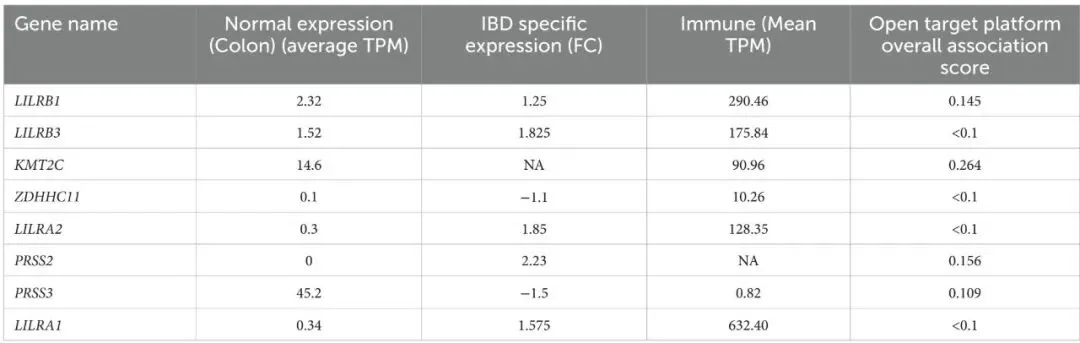
在八个罕见变异基因中,有七个基因在结肠和黏膜组织中差异表达。其中,两个(ZDHHC11和PRSS3)下调(FC: <−1.1),五个(LILRB3、LILRA2、LILRB1、PRSS2和LILRA1)上调。上调基因(FC: >1.1)的表达展示于
基于RNA测序数据,我们研究了八个优先基因的免疫细胞类型代表性,
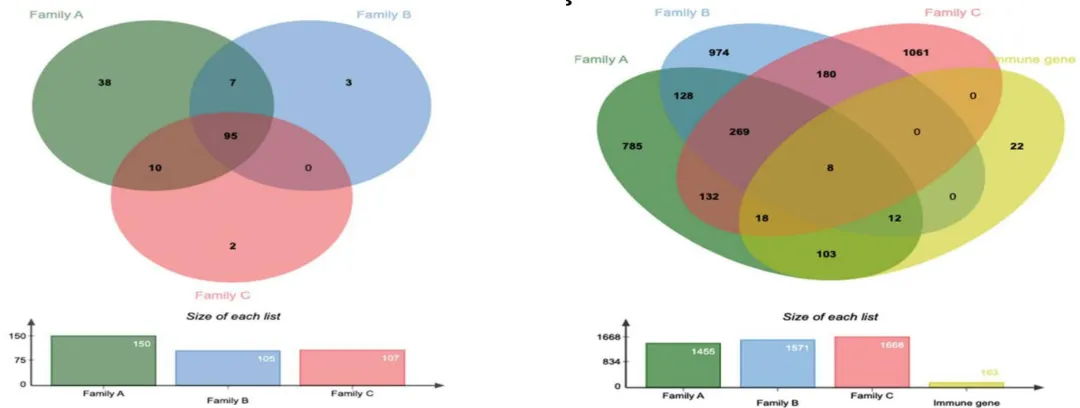
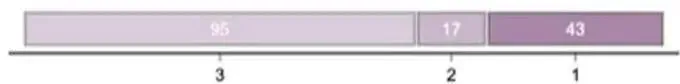
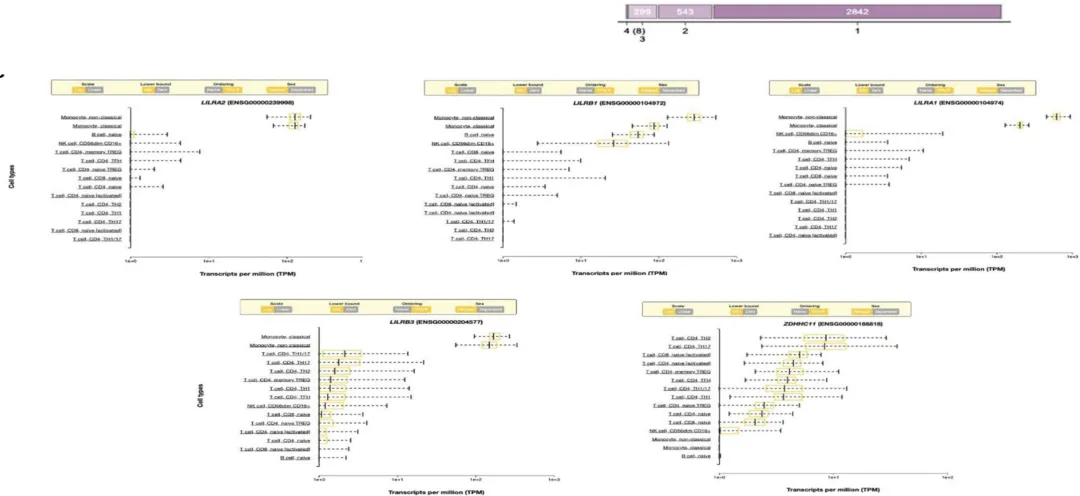 图3 (A)维恩图显示三个IBD家族之间共享的免疫GO术语。(B)维恩图显示三个家族之间具有罕见变异的共享基因。(C)具有罕见变异基因的前沿免疫细胞基因表达模式。
七个基因在各种免疫细胞中具有显著表达,log FC为0.4(图4A)。白细胞免疫球蛋白样受体基因(LILRB1、LILRB3、LILRA1和LILRA2)在免疫细胞如单核细胞和自然杀伤(NK)细胞中高表达。LILRB3基因在经典和非经典单核细胞中高表达,平均值分别为175.84 TPM和152.3 TPM。然而,该基因在T细胞中几乎不表达,平均TPM<2.73。此外,LILRB1、LILRA1和LILRA2在非经典单核细胞中高度富集,平均值分别为290.46、632.40和128.35,而经典单核细胞中平均值分别为87.91、204.29和123.98。KMT2C也在非经典单核细胞中高表达,平均值超过90 TPM(表3)。
从WES罕见变异负荷分析中鉴定出的八个基因中,只有四个基因与胃肠道或免疫系统疾病表型的关联评分>0.1。KMT2C基因与UC共享表型,总体关联评分>0.37(表4)。
我们使用Venny工具寻找同时存在于IBD和正常健康组织表达分析、免疫细胞限制性表达分析以及开放靶点平台分析中的基因。在八个基因中,七个(90%)在IBD组织、正常健康组织(GI、免疫器官)以及不同免疫细胞类型
如单核细胞和NK细胞中表达。此外,四个基因(50%)与胃肠道和免疫系统疾病表型显示出强关联(>0.1评分)。然而,所有八个基因——LILRB1、LILRB3、LILRA2、LILRA1、KMT2C、ZDHHC11、PRSS2和PRSS3——在至少两种工具中均显示显著(表3)。
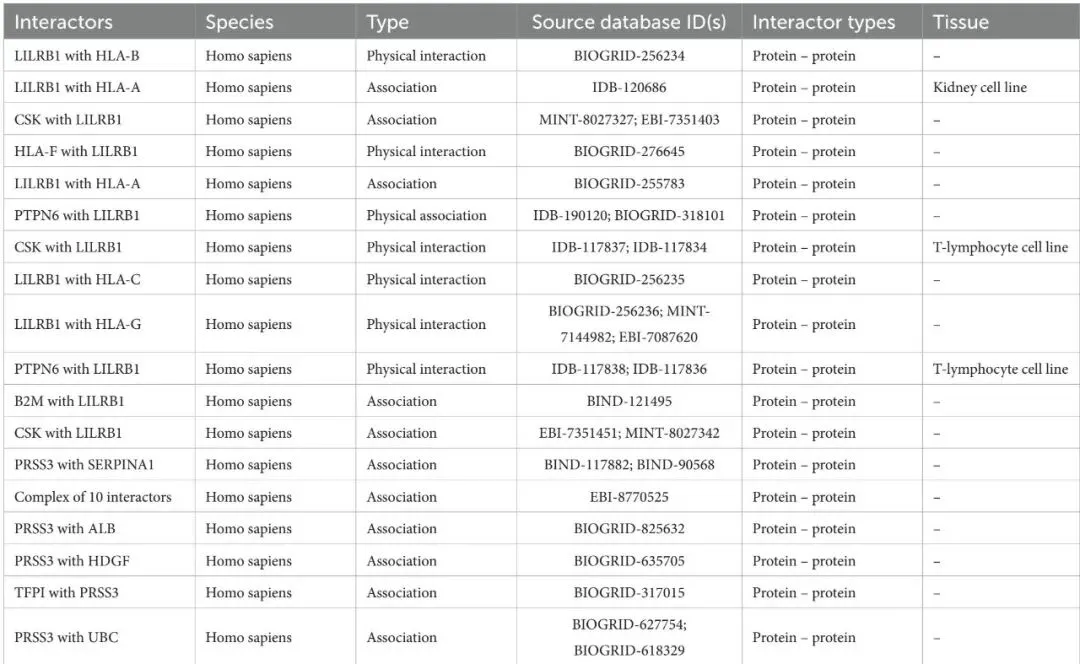
在前述步骤中获得的八个基因中,只有LILRB1和PRSS3与人类先天免疫反应具有物理相互作用或关联。LILRB1定位于19号染色体,与其他基因有12个经实验验证的相互作用。大多数相互作用伙伴来自HLA基因家族,如A、C、G和F。PRSS3基因与其他六个基因相互作用(表4)。
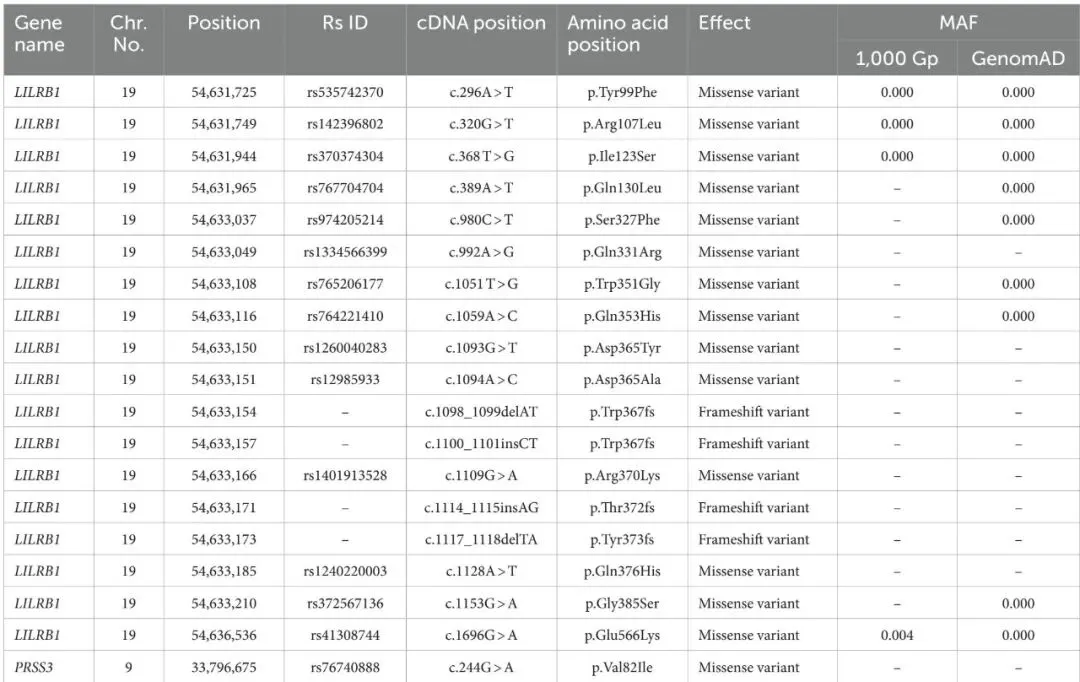
这三个家族共享LILRB1(ENST00000324602.12)的10个罕见变异,包括六个错义变异和四个新移码变异。然而,11个独特错义变异仅在家族B和C之间共享。此外,在家族B和C中分别观察到两个独特错义变异。家族A和C共享PRSS3(ENST00000379405.4)中的一个错义变异(c.244G>A; rs76740888),家族B在PRSS3中有一个额外的错义变异(c.10T>C; rs772714741)(表5)。
这两个基因LILRB1和PRSS3被独立研究以映射与其相关的生化通路。我们的发现表明LILRB1连接三条通路,即适应性免疫系统、免疫系统以及淋巴样细胞与非淋巴样细胞之间的免疫调节相互作用。PRSS3基因参与10条不同通路,即中性粒细胞脱颗粒、先天免疫系统、抗菌肽、维生素和辅因子代谢、水溶性维生素和辅因子代谢、α-防御素、防御素、免疫系统以及钴胺素(Cbl,维生素B12)转运和代谢。
PRSS3的许多物理相互作用伙伴(如TCN1、DEFA4、DEFA1、DEFA5、DEFA3、DEFA6、PRSS2、SPINK1和CBLIF)与LILRB1的相互作用伙伴(HLA-B、LILRA1和LILRA3)共调控和共表达。这些蛋白质之间许多间接失调的相互作用可能触发IBD炎症(表6)。
确定致病蛋白核苷酸序列、蛋白质结构与功能之间关系的关键步骤是映射保守氨基酸结构域。根据CDD分析,LILRB1蛋白包含一个位于28至419个氨基酸位置之间的免疫球蛋白(Ig)超家族结构域(四个结构域)。PRSS3蛋白包含一个位于38至256个氨基酸之间的胰蛋白酶样丝氨酸蛋白酶结构域。我们排除了位于保守结构域区域之外的变异(表7)。
(续)
预测的3D蛋白质结构从Alphafold(DeepMind开发的最先进AI系统)和I-TASSER获取。人类LILRB1蛋白A链结构的总长度(650 aa),模型置信度(pLDDT >70),以PDB文件下载。人类PRSS3蛋白A链的全长(247 aa)结构模型以PDB文件下载,模型置信度评分(C-score为-0.54),估计TM评分为0.64 ± 0.13 Å,估计RMSD = 6.9 ± 4.1 Å。然后使用SWISS-MODEL通过同源建模,利用能量最小化的天然蛋白质结构对LILRB1(p.Gln53Leu、p.Tyr99Asn、p.Trp351Gly、p.Asp365Ala和p.Gln376His)和PRSS3(p.Phe4Leu和p.Val25Ile)进行建模。
致病性氨基酸替换可导致自由能值变化,从而直接影响蛋白质稳定性。我们通过MAESTRO分析了16个LILRB1(G52S、Q53L、R59H、P86L、Y99N、Y99F、R107L、Q130L、S327F、Q331R、W351G、Q353H、D365Y、D365A、Q376H和2 G385S)和PRSS3(F4L和V25I)变异对蛋白质稳定性的影响。MAESTRO是一个稳健的工具,通过提供预测的自由能变化(ΔΔ G)值和相应的预测置信度估计(cpred)来预测点突变后的稳定性变化。对于LILRB1蛋白,在16个变异中,只有五个对蛋白质具有去稳定效应(Q53L、Y99N、W351G、D365Y和D365A),ΔΔ G分别为0.074、0.85、0.380、0.083和0.086。cpred评分分别为0.088、0.923、0.875、0.885和0.872。两个PRSS3(F4L和V25I)变异具有去稳定效应,ΔΔ G分别为0.016和0.799,cpred分别为0.885和0.857(表8)。我们使用YASARA工具分析天然和突变型LILRB1和PRSS3结构,以评估其结构漂移(以残基和全蛋白水平的RMSD表示)。RMSD值用于量化两个原子坐标叠加时的结构相似性。当多肽链水平存在差异时,可以确定替换突变对氨基酸结构的影响。对于LILRB1蛋白,五个具有去稳定效应的替换(Q53L、Y99N、W351G、D365Y和D365A)在残基水平的RMSD分别为1.8395、2.0688、1.5186、2.0098和2.0351。两个具有去稳定效应的PRSS3(F4L和V25I)变异在残基水平的RMSD分别为2.1465和2.0270(图5和表9)。

更多结果和补充图表:
PMID:37215724
DOI:10.3389/fmed.2023.1164305
不想做实验,没数据,还想要快速发表文章,没问题的!公共数据库就是我们的数据宝藏!没思路不用担心,作为专业的生信团队,我们很乐意为您效劳,提供研究路线设计和数据挖掘分析,扫码联系我们吧!
可向下滑动发掘更多科研秘籍!