文档文本内容
核心考点 DAY  04
姓名:                  日期:                        班级:
《遗传和进化》专题
遗传
的基
本规
律
符号
符号
含义
定义
P
亲本
亲本指通过交配繁殖后代的个体,包括父本和母本
♂
   本
供应精子的个体叫作父本
♀
   本
接受精子的个体叫作母本
F1
子一代
杂交后产生的第一代叫子一代,子一代交配获得的第二代叫做子二代(F2)
×
杂交
杂交指基因型不同的个体间交配
⊗
自交
自交指基因型相同的个体间交配
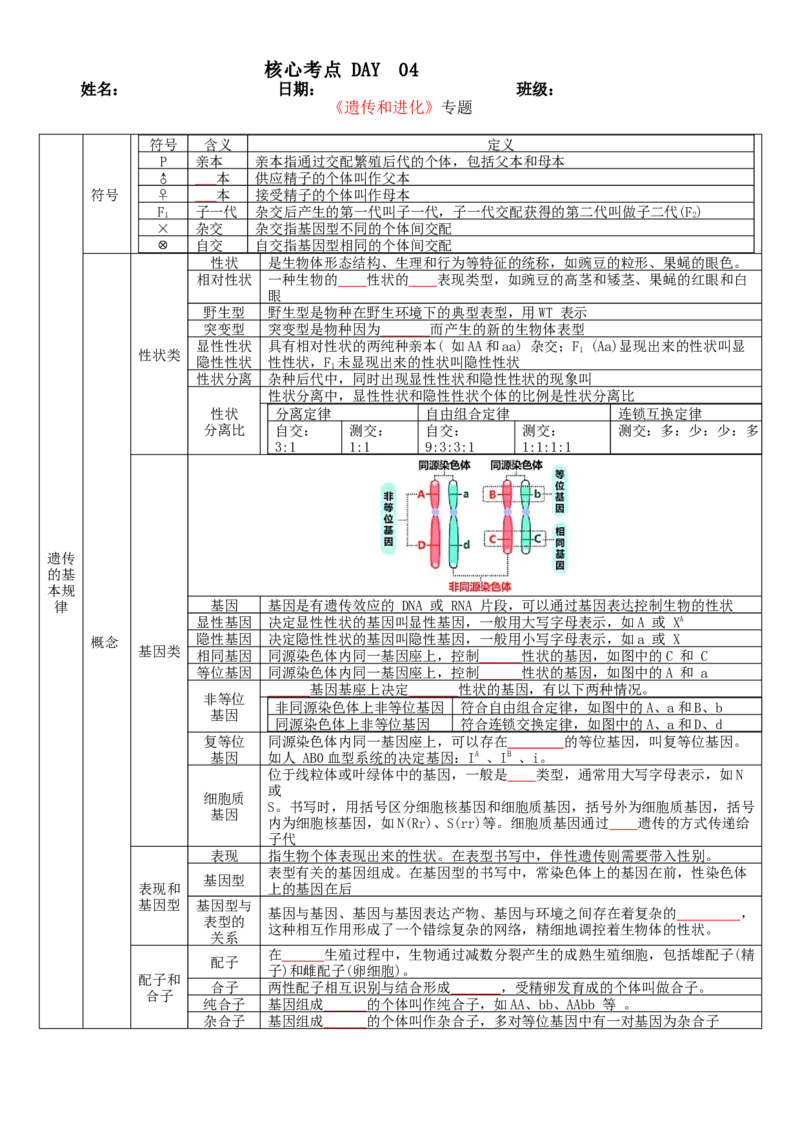
概念
性状类
性状
是生物体形态结构、生理和行为等特征的统称,如豌豆的粒形、果蝇的眼色。
相对性状
一种生物的    性状的    表现类型,如豌豆的高茎和矮茎、果蝇的红眼和白
眼
野生型
野生型是物种在野生环境下的典型表型,用WT 表示
突变型
突变型是物种因为       而产生的新的生物体表型
显性性状
隐性性状
具有相对性状的两纯种亲本( 如AA 和aa) 杂交;F1 (Aa)显现出来的性状叫显
性性状,F1未显现出来的性状叫隐性性状
性状分离
杂种后代中,同时出现显性性状和隐性性状的现象叫
性状
分离比
性状分离中,显性性状和隐性性状个体的比例是性状分离比
分离定律
自由组合定律
连锁互换定律
自交:
3:1
测交:
1:1
自交:
9:3:3:1
测交:
1:1:1:1
测交:多:少:少:多
基因类
基因
基因是有遗传效应的 DNA 或 RNA 片段,可以通过基因表达控制生物的性状
显性基因
决定显性性状的基因叫显性基因,一般用大写字母表示,如A 或 XA
隐性基因
决定隐性性状的基因叫隐性基因,一般用小写字母表示,如a 或 X
相同基因
同源染色体内同一基因座上,控制      性状的基因,如图中的C 和 C
等位基因
同源染色体内同一基因座上,控制      性状的基因,如图中的A 和 a
非等位
基因
      基因基座上决定       性状的基因,有以下两种情况。
非同源染色体上非等位基因
符合自由组合定律,如图中的A、a 和B、b
同源染色体上非等位基因
符合连锁交换定律,如图中的A、a 和D、d
复等位
基因
同源染色体内同一基因座上,可以存在        的等位基因,叫复等位基因。
如人 AB0 血型系统的决定基因:IA 、IB 、i。
细胞质
基因
位于线粒体或叶绿体中的基因,一般是    类型,通常用大写字母表示,如N
或
S。书写时,用括号区分细胞核基因和细胞质基因,括号外为细胞质基因,括号
内为细胞核基因,如N(Rr)、S(rr)等。细胞质基因通过    遗传的方式传递给
子代
表现和
基因型
表现
指生物个体表现出来的性状。在表型书写中,伴性遗传则需要带入性别。
基因型
表型有关的基因组成。在基因型的书写中,常染色体上的基因在前,性染色体
上的基因在后
基因型与
表型的
关系
基因与基因、基因与基因表达产物、基因与环境之间存在着复杂的         ,
这种相互作用形成了一个错综复杂的网络,精细地调控着生物体的性状。
配子和
合子
配子
在      生殖过程中,生物通过减数分裂产生的成熟生殖细胞,包括雄配子(精
子)和雌配子(卵细胞)。
合子
两性配子相互识别与结合形成       ,受精卵发育成的个体叫做合子。
纯合子
基因组成      的个体叫作纯合子,如AA、bb、AAbb 等 。
杂合子
基因组成      的个体叫作杂合子,多对等位基因中有一对基因为杂合子
遗传
的基
本规
律
概念
交配方
式及作
用
原理
遗传实验中的作用
育种中的作用
杂交
(×)
基因型     的个体
间交配
可判断性状的显隐性
通过杂交将不同优良性状
集中一起,得到新品种
自交
(⊗)
基因型     的个体
间交配
①判断性状的显隐性
②判断纯合子、杂合子等
不断提高种群中       的
比例
测交
个体与隐性纯合子
交配
①测定F 的基因组成
₁
②验证基因分离定律等规律
③判断纯合子、杂合子等
正交
和
反交
合称互交,正交中
的父方和母方是反
交中的母方和父方
判断遗传是否和     有
关,如伴性遗传、从性遗
传、显性遗传等
子一代和两个亲本
的任一个进行交配
可以做为测交(即与亲本中
的 aa 交配)
加强
          。
遗传
学材
料的
选择
要求
①具有易于区分的性状   ②遗传上纯种且能稳定遗传   ③繁殖上后代较多便于统计
材料
豌豆
优点
①有多对易于区分的相对性状
②       、       ,自然状态下是
③豌豆花是两性花,花大,容易操作
杂交
操作
①     :先去除未成熟的花的全部雄蕊,
作为母本。
②     :套上纸袋,等待雌蕊发育成熟。
③     :待雌蕊成熟时,采集另一植株的
花粉,涂(撒)在去雄花的雌蕊的柱头上 。
④     :套上纸袋,防止其他花粉污染。
果蝇
优点
①有多对易于区分的相对性状
②易饲养、繁殖快、后代多,方便统计
③染色体组成比较简单,容易分析
杂交
操作
将成年实验果蝇的父本和母本放在同一个培养瓶内,即可杂交获得后
代,为了增加后代数量方便统计,一般每组实验放3-5 对果蝇。
知识
延伸
①     性花不用去雄,如玉米,有雄性花和雌性花,杂交时对未成熟雌花套袋,等雌性花
成熟后,再传粉和套袋。
②小麦和水稻的花小,不易去雄,通常构建          ( 即雄蕊败育,不能产生正常花粉
的株系)防止自交,方便杂交操作。
遗传
图解
定义
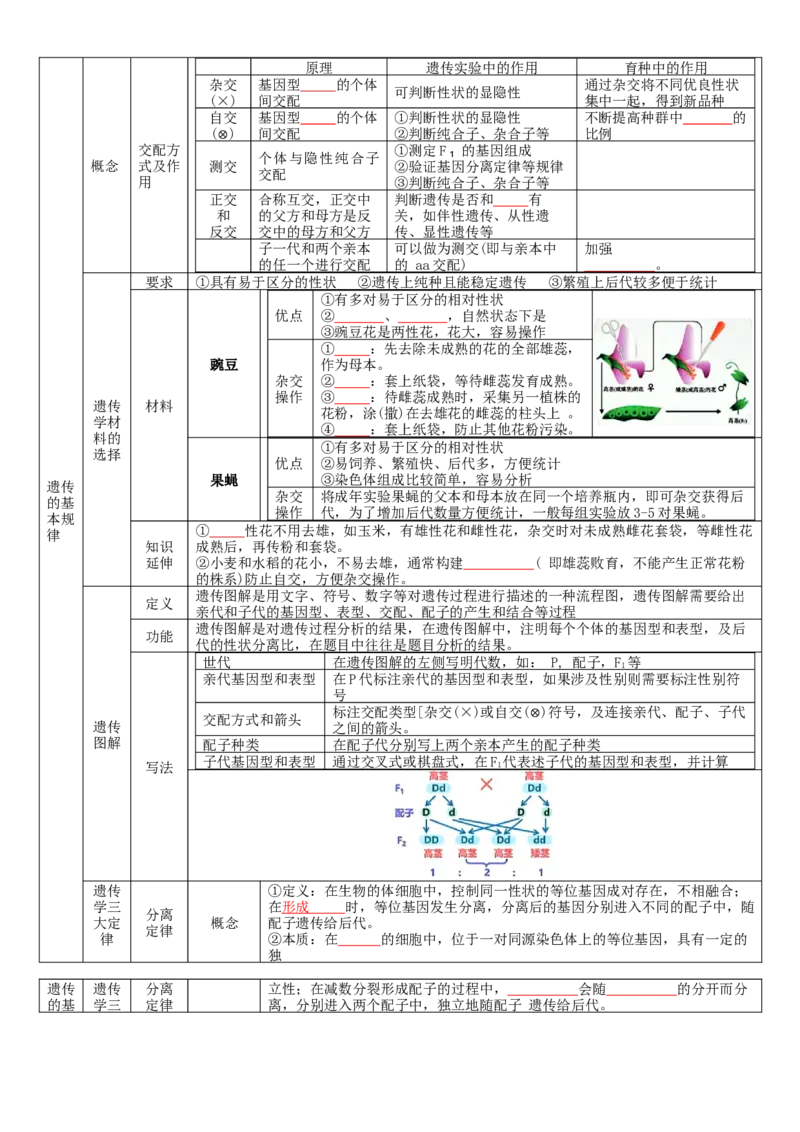
遗传图解是用文字、符号、数字等对遗传过程进行描述的一种流程图,遗传图解需要给出
亲代和子代的基因型、表型、交配、配子的产生和结合等过程
功能
遗传图解是对遗传过程分析的结果,在遗传图解中,注明每个个体的基因型和表型,及后
代的性状分离比,在题目中往往是题目分析的结果。
写法
世代
在遗传图解的左侧写明代数,如: P, 配子,F1等
亲代基因型和表型
在P 代标注亲代的基因型和表型,如果涉及性别则需要标注性别符
号
交配方式和箭头
标注交配类型[杂交(×)或自交(⊗)符号,及连接亲代、配子、子代
之间的箭头。
配子种类
在配子代分别写上两个亲本产生的配子种类
子代基因型和表型
通过交叉式或棋盘式,在F1代表述子代的基因型和表型,并计算
遗传
学三
大定
律
分离
定律
概念
①定义:在生物的体细胞中,控制同一性状的等位基因成对存在,不相融合;
在形成


 时,等位基因发生分离,分离后的基因分别进入不同的配子中,随
配子遗传给后代。
②本质:在      的细胞中,位于一对同源染色体上的等位基因,具有一定的
独
遗传
的基
遗传
学三
分离
定律
立性;在减数分裂形成配子的过程中,          会随          的分开而分
离,分别进入两个配子中,独立地随配子 遗传给后代。
本规
律
大定
律和
伴性
遗传
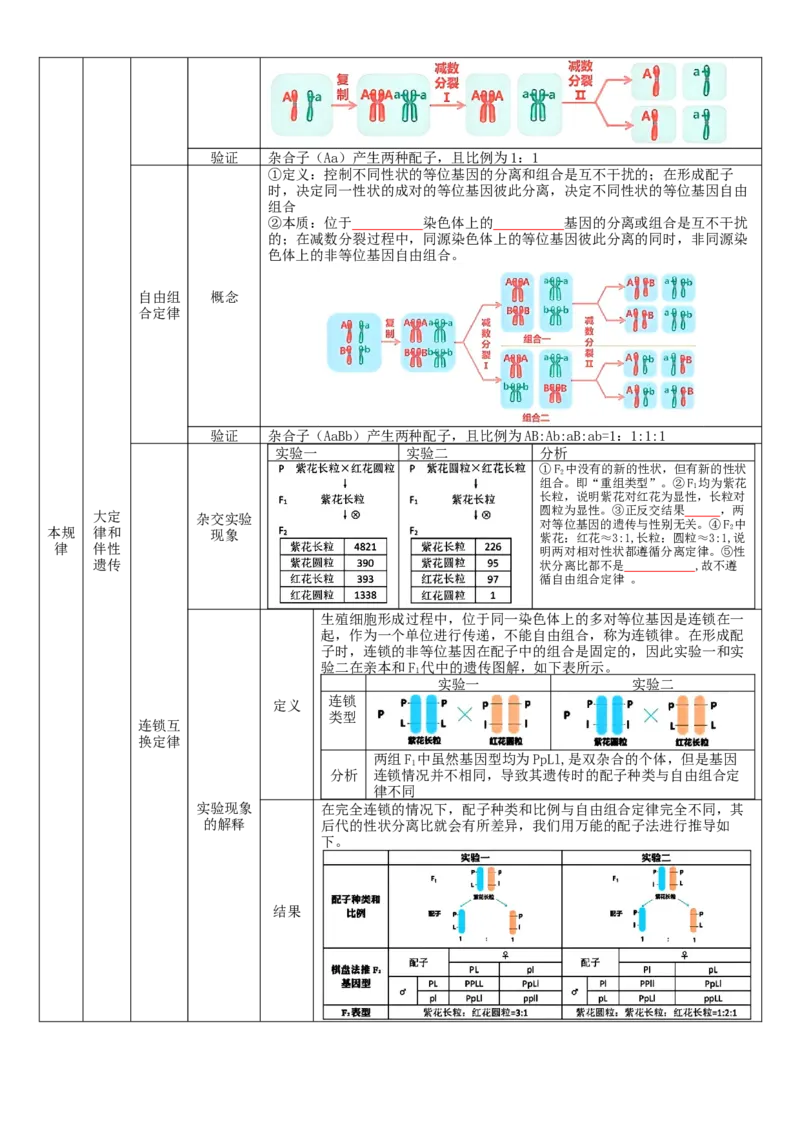
验证
杂合子(Aa)产生两种配子,且比例为1:1
自由组
合定律
概念
①定义:控制不同性状的等位基因的分离和组合是互不干扰的;在形成配子
时,决定同一性状的成对的等位基因彼此分离,决定不同性状的等位基因自由
组合
②本质:位于          染色体上的          基因的分离或组合是互不干扰
的;在减数分裂过程中,同源染色体上的等位基因彼此分离的同时,非同源染
色体上的非等位基因自由组合。
验证
杂合子(AaBb)产生两种配子,且比例为AB:Ab:aB:ab=1:1:1:1
连锁互
换定律
杂交实验
现象
实验一
实验二
分析
①F2中没有的新的性状,但有新的性状
组合。即“重组类型”。②F1均为紫花
长粒,说明紫花对红花为显性,长粒对
圆粒为显性。③正反交结果     ,两
对等位基因的遗传与性别无关。④F2中
紫花:红花≈3:1,长粒:圆粒≈3:1,说
明两对相对性状都遵循分离定律。⑤性
状分离比都不是          ,故不遵
循自由组合定律 。
实验现象
的解释
定义
生殖细胞形成过程中,位于同一染色体上的多对等位基因是连锁在一
起,作为一个单位进行传递,不能自由组合,称为连锁律。在形成配
子时,连锁的非等位基因在配子中的组合是固定的,因此实验一和实
验二在亲本和F1代中的遗传图解,如下表所示。
实验一
实验二
连锁
类型
分析
两组F1中虽然基因型均为PpLl,是双杂合的个体,但是基因
连锁情况并不相同,导致其遗传时的配子种类与自由组合定
律不同
结果
在完全连锁的情况下,配子种类和比例与自由组合定律完全不同,其
后代的性状分离比就会有所差异,我们用万能的配子法进行推导如
下。
遗传
的基
本规
律
遗传
学三
大定
律和
伴性
遗传
连锁互
换定律
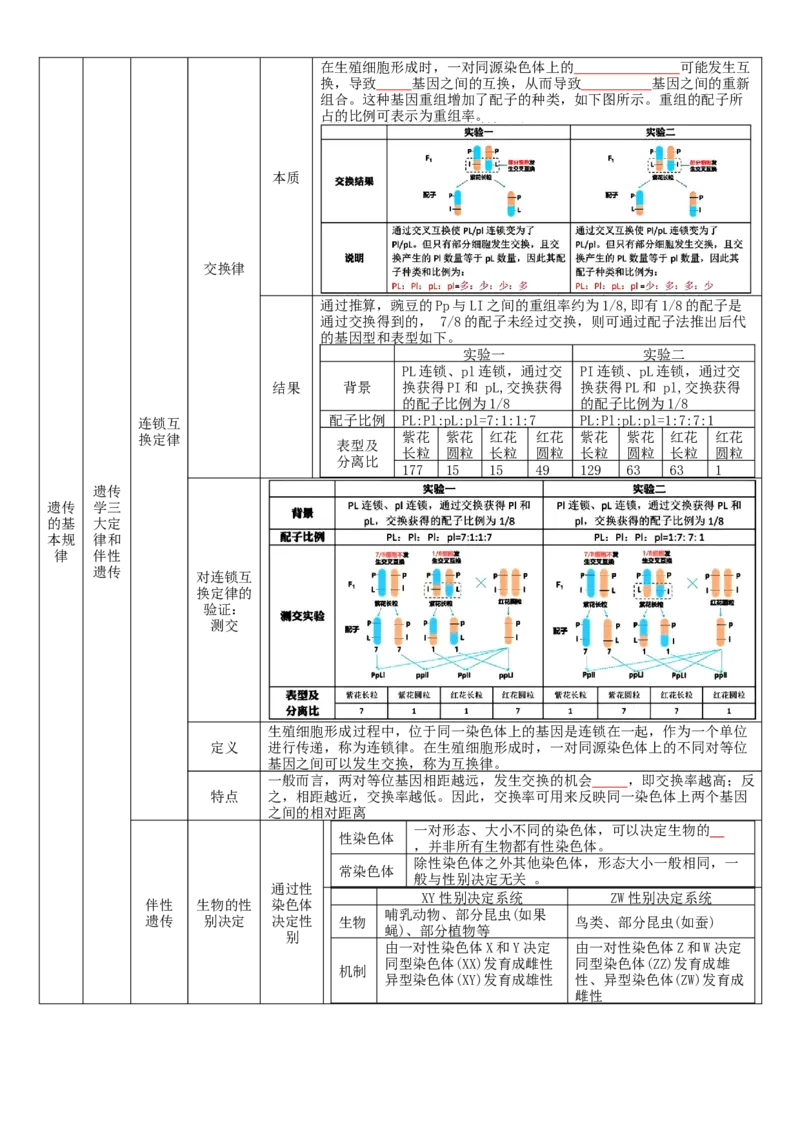
交换律
本质
在生殖细胞形成时,一对同源染色体上的               可能发生互
换,导致     基因之间的互换,从而导致          基因之间的重新
组合。这种基因重组增加了配子的种类,如下图所示。重组的配子所
占的比例可表示为重组率。
结果
通过推算,豌豆的Pp 与LI 之间的重组率约为1/8,即有1/8 的配子是
通过交换得到的, 7/8 的配子未经过交换,则可通过配子法推出后代
的基因型和表型如下。
实验一
实验二
背景
PL 连锁、pl 连锁,通过交
换获得PI 和 pL,交换获得
的配子比例为1/8
PI 连锁、pL 连锁,通过交
换获得PL 和 pl,交换获得
的配子比例为1/8
配子比例
PL:Pl:pL:pl=7:1:1:7
PL:Pl:pL:pl=1:7:7:1
表型及
分离比
紫花
长粒
紫花
圆粒
红花
长粒
红花
圆粒
紫花
长粒
紫花
圆粒
红花
长粒
红花
圆粒
177
15
15
49
129
63
63
1
对连锁互
换定律的
验证:
测交
定义
生殖细胞形成过程中,位于同一染色体上的基因是连锁在一起,作为一个单位
进行传递,称为连锁律。在生殖细胞形成时,一对同源染色体上的不同对等位
基因之间可以发生交换,称为互换律。
特点
一般而言,两对等位基因相距越远,发生交换的机会     ,即交换率越高;反
之,相距越近,交换率越低。因此,交换率可用来反映同一染色体上两个基因
之间的相对距离
伴性
遗传
生物的性
别决定
通过性
染色体
决定性
别
性染色体
一对形态、大小不同的染色体,可以决定生物的

,并非所有生物都有性染色体。
常染色体
除性染色体之外其他染色体,形态大小一般相同,一
般与性别决定无关 。
XY 性别决定系统
ZW 性别决定系统
生物
哺乳动物、部分昆虫(如果
蝇)、部分植物等
鸟类、部分昆虫(如蚕)
机制
由一对性染色体X 和Y 决定
同型染色体(XX)发育成雌性
异型染色体(XY)发育成雄性
由一对性染色体Z 和W 决定
同型染色体(ZZ)发育成雄
性、异型染色体(ZW)发育成
雌性
遗传
的基
本规
律
遗传
学三
大定
律和
伴性
遗传
伴性
遗传
生物的性
别决定
通过基
因决定
性别
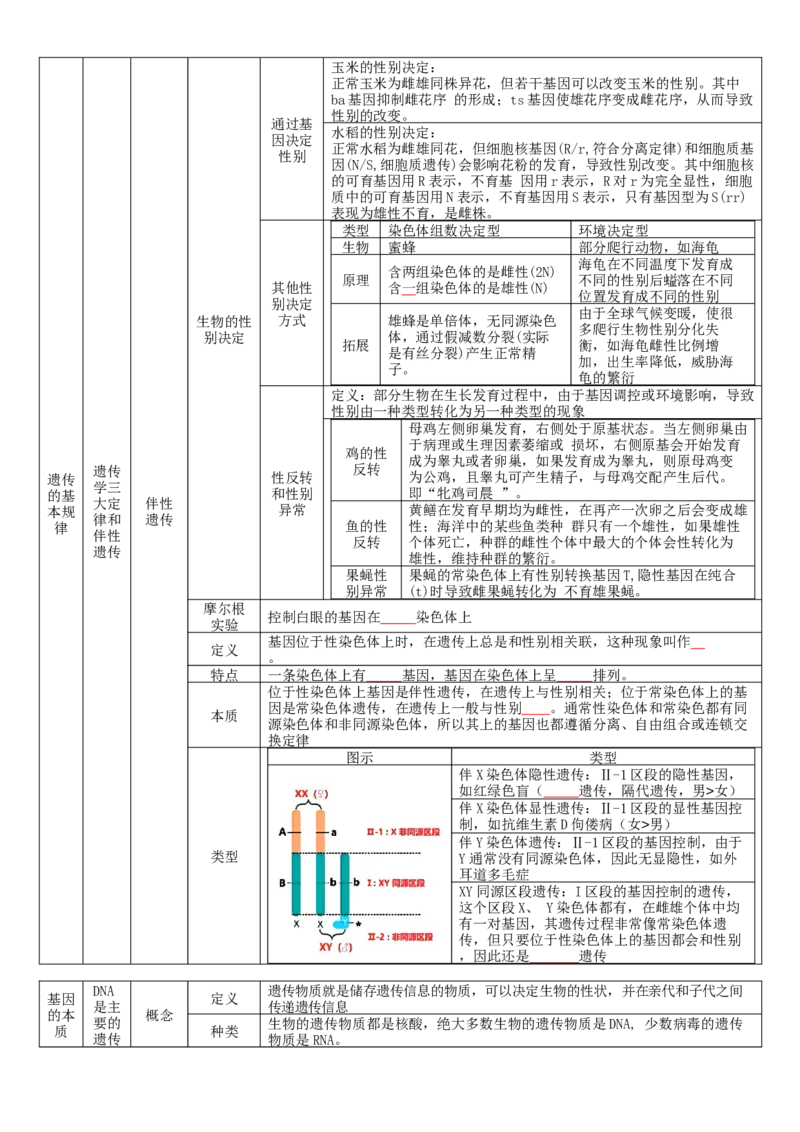
玉米的性别决定:
正常玉米为雌雄同株异花,但若干基因可以改变玉米的性别。其中
ba 基因抑制雌花序 的形成;ts 基因使雄花序变成雌花序,从而导致
性别的改变。
水稻的性别决定:
正常水稻为雌雄同花,但细胞核基因(R/r,符合分离定律)和细胞质基
因(N/S,细胞质遗传)会影响花粉的发育,导致性别改变。其中细胞核
的可育基因用R 表示,不育基 因用r 表示,R 对r 为完全显性,细胞
质中的可育基因用N 表示,不育基因用S 表示,只有基因型为S(rr)
表现为雄性不育,是雌株。
其他性
别决定
方式
类型
染色体组数决定型
环境决定型
生物
蜜蜂
部分爬行动物,如海龟
原理
含两组染色体的是雌性(2N)
含一组染色体的是雄性(N)
海龟在不同温度下发育成
不同的性别后螠落在不同
位置发育成不同的性别
拓展
雄蜂是单倍体,无同源染色
体,通过假减数分裂(实际
是有丝分裂)产生正常精
子。
由于全球气候变暖,使很
多爬行生物性别分化失
衡,如海龟雌性比例增
加,出生率降低,威胁海
龟的繁衍
性反转
和性别
异常
定义:部分生物在生长发育过程中,由于基因调控或环境影响,导致
性别由一种类型转化为另一种类型的现象
鸡的性
反转
母鸡左侧卵巢发育,右侧处于原基状态。当左侧卵巢由
于病理或生理因素萎缩或 损坏,右侧原基会开始发育
成为睾丸或者卵巢,如果发育成为睾丸,则原母鸡变
为公鸡,且睾丸可产生精子,与母鸡交配产生后代。
即“牝鸡司晨 ”。
鱼的性
反转
黄鳝在发育早期均为雌性,在再产一次卵之后会变成雄
性;海洋中的某些鱼类种 群只有一个雄性,如果雄性
个体死亡,种群的雌性个体中最大的个体会性转化为
雄性,维持种群的繁衍。
果蝇性
别异常
果蝇的常染色体上有性别转换基因T,隐性基因在纯合
(t)时导致雌果蝇转化为 不育雄果蝇。
摩尔根
实验
控制白眼的基因在     染色体上
定义
基因位于性染色体上时,在遗传上总是和性别相关联,这种现象叫作

。
特点
一条染色体上有     基因,基因在染色体上呈     排列。
本质
位于性染色体上基因是伴性遗传,在遗传上与性别相关;位于常染色体上的基
因是常染色体遗传,在遗传上一般与性别    。通常性染色体和常染色都有同
源染色体和非同源染色体,所以其上的基因也都遵循分离、自由组合或连锁交
换定律
类型
图示
类型
伴X 染色体隐性遗传:Ⅱ-1 区段的隐性基因,
如红绿色盲(     遗传,隔代遗传,男>女)
伴X 染色体显性遗传:Ⅱ-1 区段的显性基因控
制,如抗维生素D 佝偻病(女>男)
伴Y 染色体遗传:Ⅱ-1 区段的基因控制,由于
Y 通常没有同源染色体,因此无显隐性,如外
耳道多毛症
XY 同源区段遗传:I 区段的基因控制的遗传,
这个区段X、 Y 染色体都有,在雌雄个体中均
有一对基因,其遗传过程非常像常染色体遗
传,但只要位于性染色体上的基因都会和性别
,因此还是       遗传
基因
的本
质
DNA
是主
要的
遗传
概念
定义
遗传物质就是储存遗传信息的物质,可以决定生物的性状,并在亲代和子代之间
传递遗传信息
种类
生物的遗传物质都是核酸,绝大多数生物的遗传物质是DNA, 少数病毒的遗传
物质是RNA。
物质
生物类型
核酸种类
核酸种类
遗传物质
实例
细胞
真核生物
DNA 和
RNA
豌豆、果蝇、人等
原核生物
大肠杆菌、蓝细菌、支原体
病毒
DNA 病毒
DNA
DNA
大部分噬菌体
RNA 病毒
RNA
RNA
HIV、烟草花叶病毒等
遗传物
质的探
究历程
20 世纪20 年
代
大多数科学家认为,蛋白质是生物体的遗传物质
20 世纪30 年
代
人们认识到DNA 是由许多脱氧核苷酸聚合而成的生物大分子,但对DNA
的结构没有清晰的了解,认为蛋白质是遗传物质的观点仍占主导地位
1928 年
格里菲思通过肺炎链球菌体内转化实验,证明转化因子的存在
20 世纪40 年
代
艾弗里和他的同事通过肺炎链球菌体外转化实验,证明DNA 才是使R 型
细菌产生稳定 遗传变化的物质
1952 年
赫尔希、蔡斯通过T2 噬菌体侵染实验,证明     是噬菌体的遗传物质
烟草花叶病毒侵染实验证明RNA 是遗传物质
总结
综合以上实验,证明核酸是遗传物质,其中DNA 是“     的”遗传物
质
基因
的本
质
基因通常是具有遗传效应的     片段;有些病毒的遗传物质是     ,对这类病毒而言,基因就是
有遗传效应的     片段。
①基因可以是一段DNA,但一段DNA 不一定是基因。②基因在真核生物中存在于染色体、线粒体和叶
绿体中,且在染色体上呈线性排列;基因在原核生物中存在于拟核、质粒的DNA 中;基因在病毒中
存在于DNA 或RNA 中。
基因
的表
达
基因
指导
蛋白
质的
合成
转录
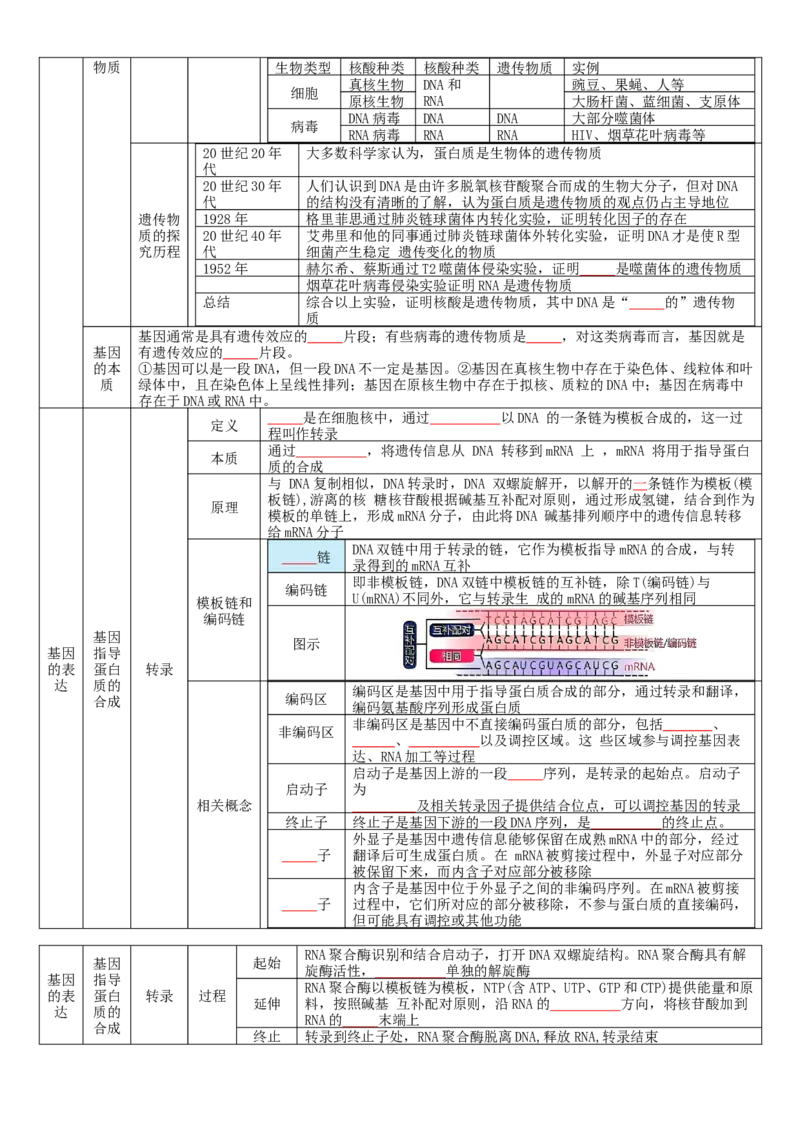
定义
     是在细胞核中,通过          以DNA 的一条链为模板合成的,这一过
程叫作转录
本质
通过          ,将遗传信息从 DNA 转移到mRNA 上 ,mRNA 将用于指导蛋白
质的合成
原理
与 DNA 复制相似,DNA 转录时,DNA 双螺旋解开,以解开的一条链作为模板(模
板链),游离的核 糖核苷酸根据碱基互补配对原则,通过形成氢键,结合到作为
模板的单链上,形成mRNA 分子,由此将DNA 碱基排列顺序中的遗传信息转移
给mRNA 分子
模板链和
编码链
     链
DNA 双链中用于转录的链,它作为模板指导mRNA 的合成,与转
录得到的mRNA 互补
编码链
即非模板链,DNA 双链中模板链的互补链,除T(编码链)与
U(mRNA)不同外,它与转录生 成的mRNA 的碱基序列相同
图示
相关概念
编码区
编码区是基因中用于指导蛋白质合成的部分,通过转录和翻译,
编码氨基酸序列形成蛋白质
非编码区
非编码区是基因中不直接编码蛋白质的部分,包括       、
      、          以及调控区域。这 些区域参与调控基因表
达、RNA 加工等过程
启动子
启动子是基因上游的一段     序列,是转录的起始点。启动子
为
         及相关转录因子提供结合位点,可以调控基因的转录
终止子
终止子是基因下游的一段DNA 序列,是          的终止点。
     子
外显子是基因中遗传信息能够保留在成熟mRNA 中的部分,经过
翻译后可生成蛋白质。在 mRNA 被剪接过程中,外显子对应部分
被保留下来,而内含子对应部分被移除
     子
内含子是基因中位于外显子之间的非编码序列。在mRNA 被剪接
过程中,它们所对应的部分被移除,不参与蛋白质的直接编码,
但可能具有调控或其他功能
基因
的表
达
基因
指导
蛋白
质的
合成
转录
过程
起始
RNA 聚合酶识别和结合启动子,打开DNA 双螺旋结构。RNA 聚合酶具有解
旋酶活性,          单独的解旋酶
延伸
RNA 聚合酶以模板链为模板,NTP(含ATP、UTP、GTP 和CTP)提供能量和原
料,按照碱基 互补配对原则,沿RNA 的          方向,将核苷酸加到
RNA 的     末端上
终止
转录到终止子处,RNA 聚合酶脱离DNA,释放RNA,转录结束
特点
               ,全保留转录
结果
获得了一条和模板链序列互补,与对应编码链序列相同的mRNA 链(编码链上的T 在
mRNA 上是U),遗传信息转移到了mRNA 上。也能产生rRNA 和tRNA 等其他类型的RNA
翻译
原理
定义
游离在细胞质中的各种氨基酸,以     为模板合成具有一定氨基酸顺序
的
本质
通过密码子的对应关系,将遗传信息从mRNA 中碱基的排列顺序转化为肽
链中氨基酸的排列顺序,最终合成具有一定空间结构的蛋白质
密码子
       上3 个相邻的碱基决定1 个氨基酸,每3 个这样的碱基叫作1 个
密码子,密码子共有64 种,其中决定氨基酸的密码有62 种(含特殊情况
的UGA),理论上反密码子数量和密码子数量相等,但由于摇摆碱基的存
在,反密码子一般不到62 种
工具
结构
         是小的单链RNA 分子,经过折叠形成三叶草结构,
上端3'末端结合氨基酸,下端具有与密码子互补配对的反密
码子
功能
tRNA 携带的氨基酸与其       识别的       对应,从而形
成多种不同的tRNA,将密码子序列转化为氨基酸序列
特点
反密码子含有摇摆碱基次黄嘌呤(1),可以与三种碱基配对(I-
U、I-A、-C),导致一种反密码子识别多种密码子
结构
核糖体由大、小两个亚基组成,每个亚基都含rRNA 和蛋白
质,其中rRNA 具有催化活性,可以催化氨基酸脱水缩合形成
多肽。真核细胞的核糖体和原核细胞的核糖体大小不同
功能
核糖体内有三个tRNA 的容纳位点(E、P、A),可以容纳三个
tRNA,并把P 位点和A 位点上的氨基酸和多肽链脱水缩合
特点
核糖体是分布最广泛的细胞器,除特殊细胞外,都含核糖体
过程
第1
步
第一个tRNA 占据核糖体上的P 位,第二个tRNA 进入核糖体上的A 位,
tRNA 的反密码子与mRNA 的密码子互补配对
第2
步
第一个氨基酸被转移到第二个氨基酸的位置,在核糖体的作用下脱水缩
合,形成肽键
第3
步
核糖体向右移动一个密码子,P 位的tRNA 移动到E 位并脱离核糖体,A
位的tRNA 携带二肽移动到 P 位,A 位结合新的tRNA,重复第2 步操作
结束
直到核糖体遇到终止密码子,核糖体脱离mRNA,释放多肽链
特点
    性
除甲硫氨酸和色氨酸外,一个氨基酸都有几个密码子,这一现象称作
密码子的简并,可以增加容错性
    性
不同的生物密码子基本相同,说明生物具有共同的起源
方向性
翻译过程读取mRNA 上的密码子的方向为5’端到3'端
高效性
一个mRNA 分子上可以相继结合多个核糖体,形成多聚 核糖体,每个
核糖体独立合成一条多肽链。因此,少量的mRNA 分子可以迅速合成大
量相同的蛋白质
结果
通过反应产生多肽链,多肽链经过折叠形成具有空间结构的成熟蛋白质
延伸
场所
原核生物、线粒体、叶绿体
边转录边翻译
真核生物细胞核基因
先转录后翻译
方向
核糖体 内部
长→短
核糖体 外部
短 →长
性状
的关
系
直接
途径
机理
实例
镰状细胞贫血、囊性纤维化病
间接
途径
机理
实例
白化病、豌豆的粒形
基因
的表
达
基因
的选
择性
表达
基因的
种类
管家
基因
     细胞中都表达的基因,指导合成的蛋白质是维持细胞基本生命活动所必需
的,如核糖体蛋白基因、ATP 合成酶基因。
奢侈
基因
只在     细胞中特异性表达的基因, 如卵清蛋白基因、胰岛素基因。
基因表
达的调
控
真核
生物
的调
控:
表观
遗传
概念
生物体基因的碱基序列      ,但基因表达和表型发生      变化的现
象
核心
表观遗传能够使生物体在基因的碱基序列       的情况下发生可遗传的
性状改变
原理
DNA
甲基
在DNA 分子上的胞嘧啶碱基添加甲基(—CH3),主要发生在启动子
区域。 甲基化通常通过     转录因子结合或招募抑制性蛋白质
化
抑制基因表达
组蛋白修饰
非编码RNA 的调控
中心
法则
本质
中心法则描述了遗传信息的
内容
意义
DNA、RNA 是遗传信息的载体,蛋白质是遗传信息的表达产物,ATP 为遗传信息的流动提供
能量,生命是物质、能量和信息的统一体
生物
的变
异
不可
遗传
变异
由于环境因素影响造成的表型改变,不改变遗传物质,一般     传递给子代。
可遗
传变
异
由于遗传物质的          产生的变异,可以传递给子代
基因
突变
基因
突变
的原
理
定义
DNA 分子中发生碱基的     、     或     ,而引起的基因碱基序列
的
本质
通过改变碱基排列顺序,直接改变了基因内的遗传信息,是基因内部
的改变,是产生          的唯一方式
原因
内部
因素
①原因:基因可以自发地产生突变。
②本质:DNA 分子复制偶尔发生错误。
③特点:自发突变具有低频性
外在
因素
①物理因素:紫外线、X 射线、γ 射线及其他高能辐射。
②化学因素:亚硝酸盐、碱基类似物等。
③生物因素:某些病毒的遗传物质,如HPV
特点
    性
一切生物都可以发生基因突变,包括RNA 病毒 (单链 RNA 更容易突变)
    性
生物个体发育的任何时期和部位均可发生,可以发生在细胞内不同的DNA
分子上,以及同一个 DNA 分子的不同部位。若突变时期早(如受精卵突
变),则含有突变基因的细胞更多。
    性
自然状态下,突变频率很低。但由于每个个体含有大量基因,每个种群
又有大量个体,因此每代有大量的基因突变积累。
    性
一个基因可以向不同方向发生突变,产生一个以上的等位基因。基因突
变的方向和环境没有明确的因果关系。
多害
少利性
可能破坏生物体与现有环境的协调关系。但需要注意:有利和有害是相
对的,会随环境改变而改变
诱变
育种
定义
利用物理因素(如紫外线、X 射线等)或化学因素(如亚硝酸盐等)处理生
物,使生物发生基因突变, 可以提高突变频率,创造人类需要的生物新
品种
原理
          ,人工提高基因突变的频率,筛选有利变异。诱变时也可能会
发生
优点
诱变育种可以产生新的基因,获得自然界没有的新性状, 大幅度改良某
些性状,加快育种进程
缺点
有利变异少,需要处理大量实验材料
应用
用辐射方法处理大豆,选育出含油量高的大豆品种;获得高产青霉素菌
株;太空育种等
生物
的变
异
可遗
传变
异
基因
重组
定义
基因重组是指在生物体进行有性生殖的过程中,控制不同性状的基因的重新组合
类型
类型
染色体
时期
减数分裂     期(四分体时期)
减数分裂     期
原因
同源染色体联会,非姐妹染色单
体发生互换导致的基因重组
同源染色体分离,非同源染色体自由
组合导致的基因重组
意义
①基因重组广泛存在,是形成生物多样性的重要原因。
②生物变异的来源之一,有利于生物进化
广义
基因
重组
发生在减数分裂中的基因重组也被看作狭义的基因重组,广义的基因重组还包括细
菌接合、基因工程等过程中的基因重组
杂交
育种
概念
将同一物种的两个或多个品种的优良性状通过交配集中在一起,再经过选
择和培育,获得新品种的方法
原理
优点
操作简单,可以获得优良性状组合
缺点
育种时间一般较长,只能在同一物种内选择,可选择的范围有限。
染色体
变异
染色
体结
构变
异
原理
染色体发生断裂后,在断裂处发生错误连接而导致染色体结构异常
原因
由于物理或化学诱变因素导致染色体结构变异
由于失去端粒或转座子,导致染色体结构变异
类型
染色体的某一片段缺失引起变异
染色体中增加某一片段引起变异
染色体的某一片段位置颠倒引起变异
染色体的某一片段移接到另一条非同源染色体上引起变异
结果
染色体结构的改变,会使排列在染色体上的基因数目或排列顺序发生改
变,导致性状的变异。与基因突变相似,大多数染色体结构变异对生物体
是不利的,甚至导致死亡,所以染色体变异和基因突变又统 称为突变。
染色
体数
目变
异
染色
体组
 (染色体组在细胞分裂模块已有详细讲解,参考本书第112 页)染色体组是
指细胞中的一组完整的       染色体,它们在形态和功能上各不相同,
但又互相协助,携带着控制一种生物生长、发育、遗传和变异的全部遗传
信息
案例
蜜蜂孤雌生殖
染色
体的
整倍
体变
异
类型
一倍体
二倍体
多倍体
单倍体
概念
体细胞中含
有一个染色
体组的个体
体细胞中含
有两个染色
体组的个体
体细胞中含有三
个或三个以上染
色体组
体细胞中含有本
物种配子染色体
数目的个体
染色
体组
一个
两个
≥3
一或多个
发育
起点
特点
一般植株弱
小、高度不
育
几乎全部动
物、多数高
等植物都是
二倍体
茎秆粗壮,叶
片、果实、种子
比较大,糖类、
蛋白质等营养物
质的含量都有增
加
多数是一倍体,
植株弱小、
类型
同源多倍体
异源多倍体
定义
染色体组都来源于同一物种
染色体组来源两个或多个

物种
案例
二倍体西瓜(2N=22)染色体
加倍→四倍体西瓜(4N=44)
如白菜(2N=20)和甘蓝(2N=18)进行
体细胞杂交得到白菜一甘(4N=38)
育性
细胞含有成对的同源染色
体,都能联会和分离,则是
可育的,如小麦(异源六倍
体)
细胞含有偶数对同源染色体时,减
数分裂可以正常联会和分离,个体
是可育的。如四倍体西瓜
如果细胞不含成对的同源染
色体,不能正常联会和分
离,则个体是不育的
含奇数对同源染色体时,会有一组
染色体不能联会,配子染色体组成
混乱,导致高度不育,三倍体西瓜
生物
的变
异
可遗
传变
异
染色体
变异
染色体
数目变
异
染
色
体
的
整
倍
体
变
异
单倍体育种:
原理
单个染色体组加倍的后代都是纯合子
过程
主要经过          和          两个步骤,见右图所示
优点
与连续自交相比,可明显缩短育种年限
缺点
组织培养技术复杂,需与杂交育种配合
提示
I.注意区分单倍体育种不只是花药离体培养,还需要秋水仙素处
理使染色体数加倍。
Ⅱ.这个实验中,由于单倍体高度不育,秋水仙素处理的是

, 而不是萌发的
多倍体育种:
原理
通过秋水仙素处理(或低温处理),抑制          ,使分裂的细
胞染色体数目加倍
过程
直接用秋水仙素来处理萌发的     或
应用
高产作物
四倍体葡萄;四倍体番茄;四倍体甜菜等
原理
三倍体西瓜减数分裂时          ,不能形
成正常的配子
方法
第一年用秋水仙素诱导二倍体西瓜幼苗(或萌
发的种子)成为四倍体,开花后授以二倍体的
花粉,结出含有三个染色体组的种子。 第二
年种植三倍体种子,开花后授以二倍体的花
粉刺激子房,发育成无子西瓜
注意
事项
①只能以四倍体植株作为母本;以二倍体植
株作为母本,种子虽然没有胚乳,但具有较
硬种皮,不能达到无子的目的。
②尽管后代没有种子,但仍要对三倍体西瓜
授粉,提供生长素,保证其果实发育。
③联会紊乱的细胞也有机会获得正常的配
子,使西瓜产生种子,但是概率很低
染
色
体
的
非
整
倍
体
变
异
现象
细胞内个别染色体的增加或减少
原因
由于细胞分裂过程中,染色体分离出现异常导致配子染色体数目
发生变化
类型
类型
概念
三体是指细胞中某特定的同
源染色体存在三条,而不是
正常的两条
单体是指细胞中某对特定
的同源染色体只有一条,
而不是正常的两条
写法
2n+1
2n-1
结果
基因表达过多,影响生物性
状
基因表达过少,影响生物
性状
案例
21 号三体(唐氏综合征
性染色体单体(45,X)为特
纳综合征
人类
遗传
病
定义
由遗传物质     而引起的人类疾病。
类型
单基因遗传病
受     等位基因控制的遗传病
多基因遗传病
受     等位基因控制的遗传病,一般具有累加效应
染色体异常遗
传病
由染色体异常引起的遗传病
遗传病
的检测
和预防
步骤
体检诊断→分析遗传方式→推算后代的再发风险率→提出防治对策和建议
产前诊断
定义
产前诊断是指在胎儿出生前,医生用专门的检测手段,确定胎
儿是否患有某种遗传病或先天性疾病
手段
                                   等手段
基因
检测
基因检测是指通过检测人体细胞中的          ,以了解人体
的基因状况。
基因
治疗
因治疗是指用正常基因     或     患者细胞中有缺陷的基因,从而达到治疗疾病的目
的。
生物
的进
化
生物
共同
的祖
先
地层中
陈列的
证据
— —
定义
化石是指通过自然作用保存在地层中的古代生物的遗体、遗物或生活痕迹等。
位置
大部分化石发现于沉积岩的地层中。沉积岩是指成层堆积的松散沉积物 (沉积物
指陆地或水盆地中的松散碎屑物,如砾石、砂、黏土、灰泥和生物残骸等)固结
而成的岩石。
作用
利用化石可以确定地球上曾经生活过的生物的种类及其形态、结构、行为等特
征。因此,化石是研究生物进化最     、最重要的证据。
结论
已经发现的大量化石证据,证实了生物是由原始的共同祖先经过漫长的地质年代
逐渐进化而来的,而且还揭示出生物由简单到     、由低等到     、由水生到
     的进化顺序。
其他
证据


证据
比较解剖学就是比较不同物种之间的身体构造的学科。物种之间特定的解剖学相
似性蕴含着进化史的证据。 如哺乳动物的上肢或前肢均有相似的结构。


证据
胚胎学是指研究动植物胚胎的形成和发育过程的学科。比较不同动物以及人的胚
胎发育过程, 也可以看到进化的蛛丝马迹。 如脊椎动物在胚胎发育早期都有彼
此相似的阶段。

水平的
证据
不同生物之间具有很大差异。然而,细胞生物学和分子生物学的研究却表明,看
似 截然不同的当今生物之间也有很多相似之处。比如都有能进行代谢、生长和
增殖的细胞,细胞有共同的物质基础和结构基础等,这是对生物有共同祖先这一
论点的有力支持。
自然
选择
适应的
概念
定义
适应一是指生物的          适合于完成一定的     ,二是指生物的形态结构
及其功能适合于该生物在一定的     中生存和繁殖。
与适
应的
形成
特点
适应具有          ,各种生物都能适应特定的环境
适应的
形成
拉马克
适应的形成都是由于         和          ,但这种解释是经验性的、不科学
的
达尔文
适应的来源是          ,适应是          的结果。
种群
的进
化
遗传平
衡定律
概念
(在遗传模块已有详细讲解,见第175 页)遗传平衡定律也叫哈代一温伯格定律,
是指一个群体在理想情况下,经过多个世代,          与          保持恒
定。
本质
在理想条件下,种群的基因频率不变,不发生进化。
进化的
实质
本质
在自然选择的作用下,种群的基因频率会发生
方式
自然选择的对象是生物的       ,通过对表型的选择改变了          频率,
从而引起基因频率的改变。
进化的
过程
          产生
进化的原材料
①类型:可遗传变异来源于突变(基因突变、染色体变异)和基因重
组。
②结果:生物的变异是          的,只提供生物进化的原材料,不
决定生物进化的方向
自然选择决定生
物进化的方向
①原因:不断淘汰不利变异的基因,积累          的基因。
②结果:种群的基因频率发生定向改变
考点
“定向”的
判断
可以说定向的          、定向的进化,但不能说定向的变异
变异和进化
的关系
先有不定向的变异,后有定向的自然选择,而不是自然选择导致定向变异
错误案例
实际过程
杀虫剂诱发了害虫抗药基因
的产生,使害虫产生抗药性
在喷洒杀虫剂之前,害虫种群中就存在各种
基因,包括抗药基因。 喷洒杀虫剂导致抗
药基因频率升高,增加害虫种群的抗药性
物种
的形
成
概念
物种
能够在自然状态下          并且产生          的一群生物。
隔离
基因不能自由交流的现象,分为地理隔离和生殖隔离。


隔离
同种生物由于地理障碍而分成不同的种群,使得种群间不能发生基
因交流的现象,叫作地理隔离。地理隔离不一定形成新物种


隔离
不同物种之间一般不能相互交配,即使交配成功,也不能产生可育
的后代;生殖隔离是判断是否属于不同物种的标准,也是进化产生
新物种的标志
过程
①突变和基因重组产生进化的原材料
②自然选择决定生物进化方向
③长期地理隔离通常导致生殖隔离
知识
延伸
①经过长期的地理隔离而达到          是物种形成比较常见的方式,但物种的形成不一
定都需要经过地理隔离, 如二倍体西瓜染色体加倍形成的四倍体西瓜也是新物种。
②基因频率改变是进化的标志,但不一定导致新物种的产生,比如英国的曼彻斯特地区的
桦尺蛾(其幼虫叫桦 尺蠖)体色的进化;但新物种一旦形成,基因频率必然大幅改变,生物
一定发生了进化
生物
的进
化
生物
的多
样性
协同
进化
定义
                                        在相互影响中不断进化和发展,这
就是          。
案例
收割理论
捕食者往往捕食个体数量多的物种,这样就会避免出现一种或
少数几种生物在生态系统中占绝对优势的局面,为其他物种的
形成腾出空间。捕食者的存在有利于增加
精明的捕食者
捕食者所吃掉的大多是被捕食者中老年、病弱或年幼的个体,
客观上起到了促进          发展的作用
大气的变化
原始大气中是没有氧气的,因此,最早出现的生物都是厌氧
的;最早的光合生物出现,使得原始大气中有了氧气,这就为
好氧生物的出现创造了前提条件
生物
多样性
内容
原因
生物的          是产生生物多样性的原因