ARTICLE · 1191581
刘建全教授特邀综述 | 一般性机制说明了什么?从生殖隔离到同倍杂交成种的遗传逻辑和远缘杂交育种应用
从生殖隔离基因的历史作用出发,讨论二歧和同倍杂交物种形成的遗传机制
刘建全课题组(2021, Molecular Plant)提出了一个同倍杂交物种形成的新机制,并且根据新机制建立了鉴定杂交物种形成关键基因的新方法,后来在若干类群中都发现其存在一般性,并且都鉴定到了关键成种基因。但是,对于很多普通读者来说,包括笔者自己,还有很多概念是模糊的。两个亲本物种能杂交产生新物种,它们是不同的物种吗?对于非有性繁殖为主的类群,生殖隔离标准对于物种划分有何影响?
二歧和同倍杂交物种形成过程中,有很多基因分化参与了生殖隔离,这些基因分化如何产生、什么时候起作用的?如何称呼它们,才能让我们更好理解物种形成?文献中常常出现的杂种和杂交物种,特别是渗入、杂交谱系和杂交成种到底有什么区别?从同倍杂交物种一般性机制获得的育种研究方法,与长期大家都在做的远缘杂交育种实践,从机制、概念和方法上有何联系和不同?
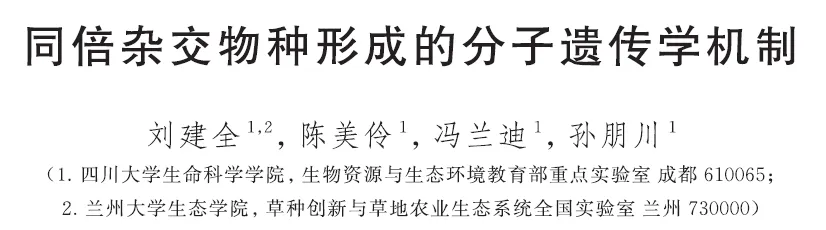
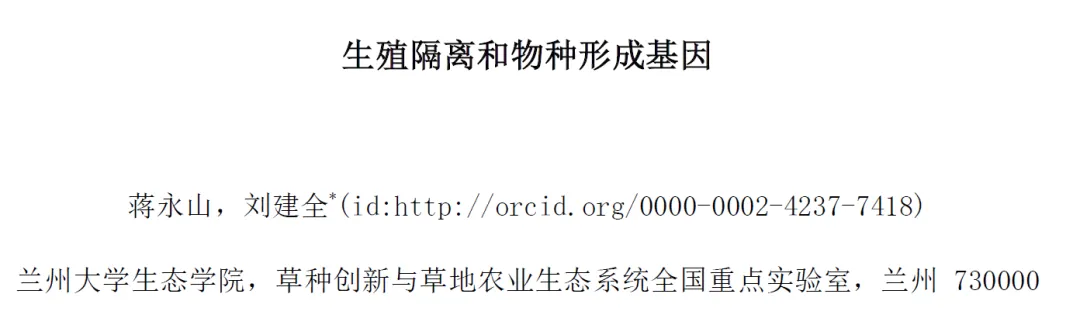
刘建全团队发表在《生物多样性》的《生殖隔离和物种形成基因》与四川大学学报(自然科学版)的《同倍杂交物种形成的分子遗传学机制》的两篇综述,分别从概念辨析和遗传机制进行了讨论,特别强调:物种都在分化路上;生殖隔离不是指完全生殖隔离;驱动物种形成的基因更多是受自然选择表型的基因、且更可能与合子前生殖隔离有关;两个物种杂交不仅导致中性和适应性杂交渗入,而且也导致同倍物种形成;种间亚种间杂交后代会因为具有更多遗传差异位点、出现更多非等位基因重组导致的组合表型、基因互作新表型(包括超亲表型),不仅导致它们直接与亲本生殖隔离,迭代演化为杂交新物种,更是远缘杂交育种中扩大杂交F2代重组群体鉴定此类特殊表型解析分子机制加以间接或直接利用的新材料。
表面上看像孟德尔第二定律,但存在本质区别:同倍杂交成种新机制的创新性
两个具有明显生殖隔离的‘好种‘杂交产生的后代(杂种),不经过染色体加倍,产生第三个物种,即同倍杂交成种。以前提出这一物种形成的遗传机制是染色体结构变异、转座子变异、甲基化和基因表达变化,这是因为杂交F1或F2代都会出现超亲表型个体,它们常具有此类遗传变化,也有很多实验验证;这些超亲性状个体逐渐演化为一个新物种。但这里根本性的时间gap和关键基因鉴定问题没法解决:从杂种到杂交物种,需要若干代迭代演化,这些遗传变化,完全有可能是杂种迭代演化的长时间过程中新产生的,没有办法去说明它们是杂交后代部分个体在自然选择都一直存在;也没有办法在现有杂交物种中去鉴定此类遗传变化就是杂交物种形成的关键物种形成基因,因为与两个亲本物种比较,此类遗传变异太多太多。
两篇综述重点讨论了刘建全(2021)提出的同倍杂交物种“交替继承亲本高分化基因”机制。这里指新杂交谱系在非连锁(如不同染色体)的不同基因位点上,分别保留两个亲本来源的高分化等位基因,它们杂交自由重组,部分个体获得新组合表型或新性状,这些个体迭代演化为同倍杂交新物种。用一个简单的遗传公式表示就是AABBCCDD与aabbccdd杂交,可产生AaBbCcDd的F₁;后续分离和重组则可能产生AAbbCCdd等组合。
根据这一机制,杂交物种就是一个桥梁,能和两个亲本交替比较,鉴定出关键基因,并且也能说明这些分化等位基因重组从杂种到杂交物种都是连续存在的。杂交物种居中虎榛子两个亲本物种,位于不同染色体上的高分化基因,导致了它们花期和高铁土壤耐受能力的生殖隔离,杂交物种的交替继承,使它可以分别在开花时间和生境适应上,与两个亲本拉开距离,从而在杂种时期就可以避开两个亲本数量的干扰,相互杂交繁殖,经过迭代演化并最终形成一个新物种。达尔文雀杂交谱系是交替继承了两个亲本喙、鸣声等非连锁基因,导致杂交物种形成的经典案例之一。
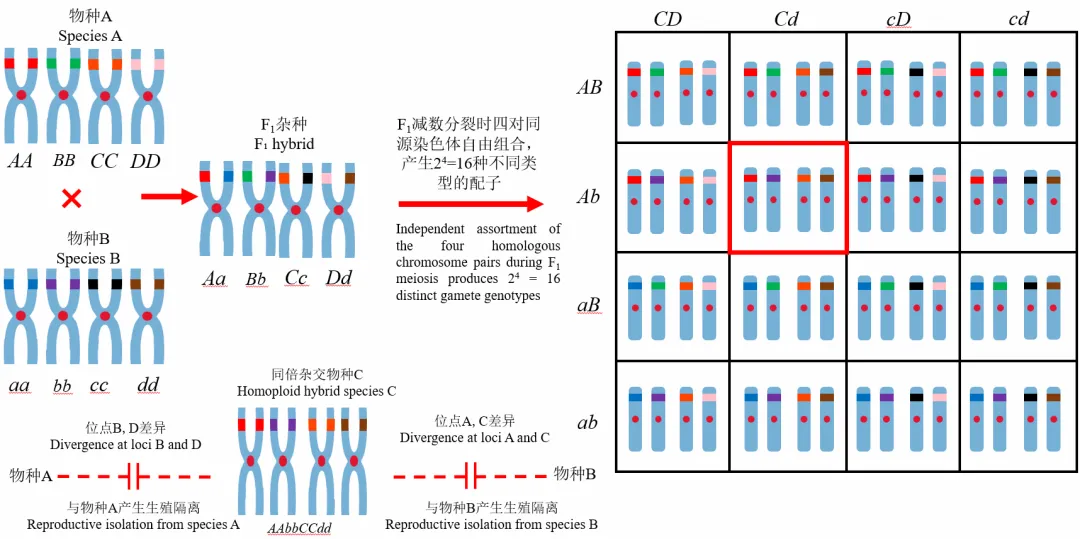
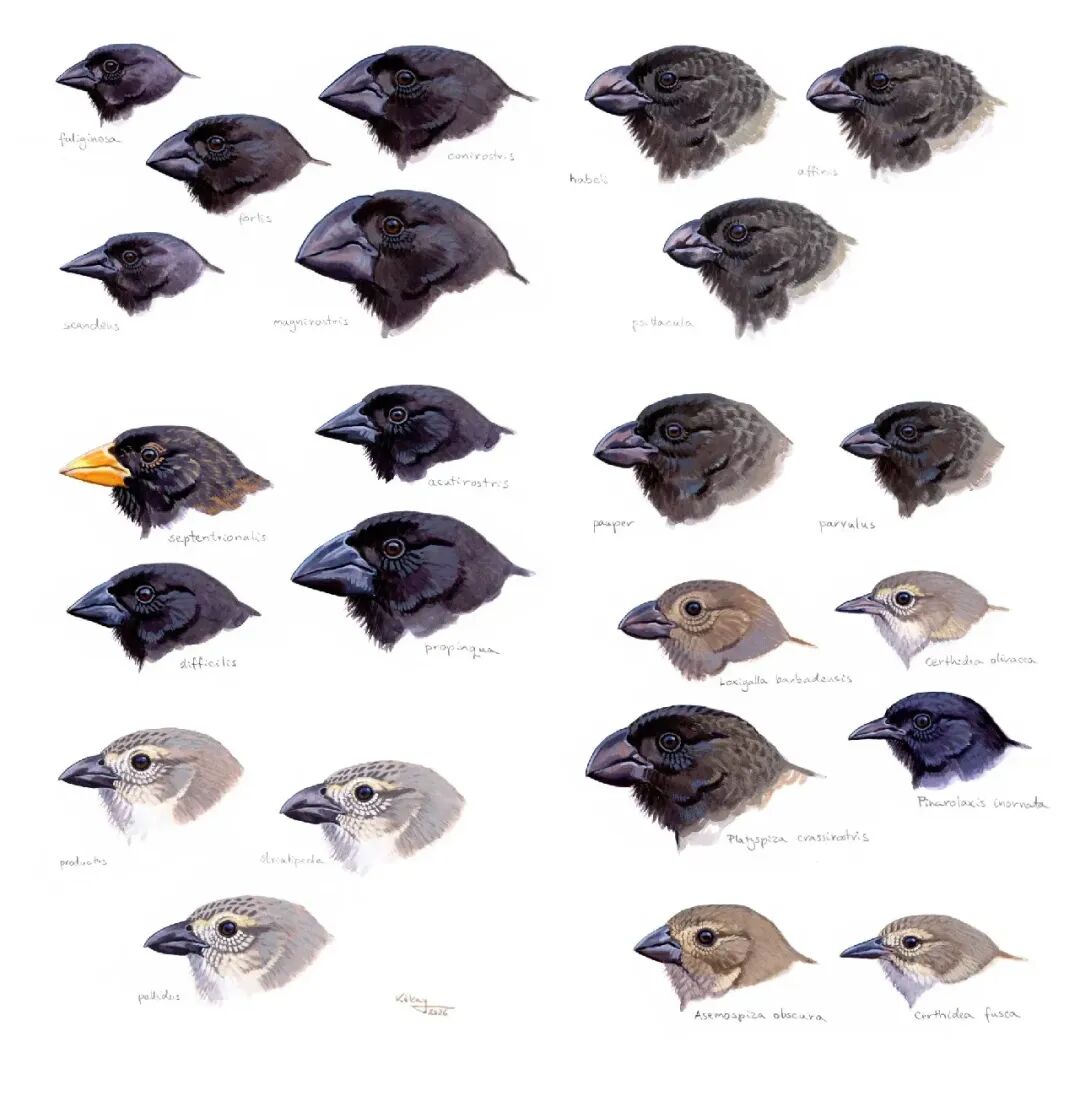
孟德尔第二定律也是讲的非等位基因自由组合,但是最终结果看的是基因型和表型比例。种内基因型杂交,不存在合子后生殖隔离,因此几乎是每个受精卵或组合表型都发育成熟了,因此会出现孟德尔比例。这里看的是群体比例。而种间杂交,很多亲本之间的组合表型不发育,不会存在这些比例。
但是,由于物种间存在更多的基因分化,逻辑上F2代会出现非常多非常多的非等位基因组合,只要群体足够大,不仅会出现新组合表型,而且还会有很多超亲性状或新性状的个体。按达尔文的自然选择理论,自然选择下的物种形成,是在个体基础上考量的。因此这些组合或新表型个体就会与两个亲本有生殖隔离,导致它们相互交配,迭代形成一个杂交新物种。从这个逻辑来看,同倍杂交物种形成的可能性还是较高的。
生殖隔离,贯穿相遇、受精与繁殖的全过程
生殖隔离,应该是只针对通过有性生殖进行基因组重组类群中的物种间生殖隔离。因此,生殖隔离做为一个物种界定标准,主要是针对这些有性繁殖为主的类群。而很多无性繁殖为主的类群,里面的‘物种‘则是完全不同的情况,如竹类物种,很可能一个物种就是一个基因型。即使以有性繁殖为主的类群中,近缘物种之间的生殖隔离,也不是指的完全生殖隔离。它们往往仍能产生杂交后代,生殖隔离可以表现为有效基因交流受到限制,而不要求任何杂交都无法发生。
对于有性繁殖为主的类群,分类学家界定的物种,总生殖隔离程度有大有小,它们大都应该位于物种形成的中后期,都有明显的生殖隔离和形态特征差异,可能少数物种处于物种分化的早中期,但没有办法进行统一标准的界定,因为每个物种都在物种形成的路上,它们与近缘物种的分化在分化时间、有效群体大小、生活史等都不同。本质上,现在命名的生态型、亚种、物种没有区别,只是总生殖隔离和形态特征差异标准不一样,但没有办法统一标准,因为前述原因是没有办法做标准的,只能依靠分类学个人的判断标准。
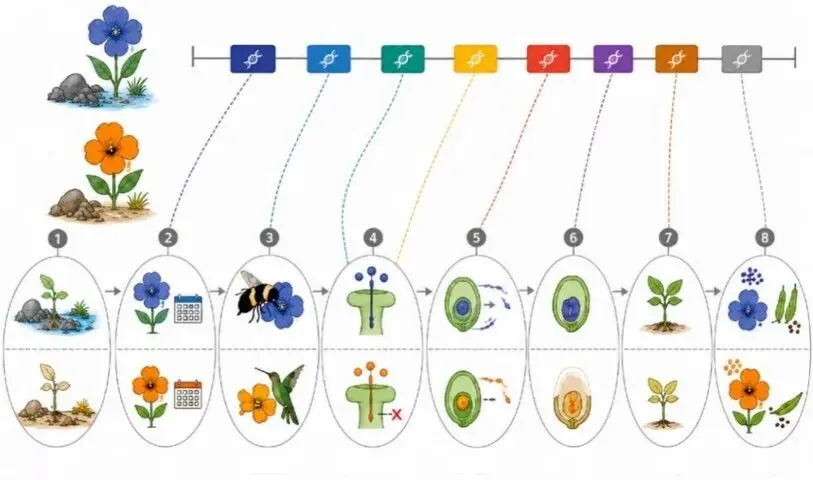
生殖隔离分布在生活史的不同阶段。两个谱系可能偏好不同生境,因而较少相遇;即使长在一起,也可能在不同时间开花;即使花期重叠,传粉者偏好或花粉与雌性组织之间的相容性,仍会影响受精。受精之后,胚胎存活、后代发育和杂种育性又构成新的屏障。
这些屏障按照顺序发挥作用。早期屏障减少进入下一阶段的交配机会,后续屏障则作用于剩余的杂交后代。因此,评估总生殖隔离,需要考虑各阶段的条件和相互影响,不能直接把独立测得的隔离百分比相加。
相应地,生殖隔离基因可以参与不同过程。猴面花的YUP与花色和传粉者差异有关,体现合子形成之前的屏障;果蝇的OdsH与杂种雄性不育有关,体现合子形成之后的屏障。两类基因都能影响谱系间的有效交流,但它们在物种形成历史中的角色,还需要进一步判断。
证明“生殖隔离基因今天有作用”,还要追问“最早何时起作用”
《生殖隔离和物种形成基因》提出了一个强调历史因果的术语框架:把“生殖隔离基因”作为较广的集合,而将“物种形成基因”严格限定为其中最早建立初始隔离、启动谱系独立演化的基因。这一区分对应两种证据。遗传操作或杂交实验,可以证明某个等位变异今天影响花期、杂种存活或育性;要证明它启动了物种形成,还需重建这个变化出现、受到选择并建立隔离的时间,与整个谱系分化过程相联系。
假设两个群体首先因为生境和交配时间的差异而开始分化,随后逐渐积累其他遗传差异,最终出现明显的杂种不育。那么,某个不育基因虽然能强化今天的物种边界,却可能是分化之后形成的结果。按刘老师主张的严格定义,它未必属于最初的成种基因。这一命名方式属于综述提出的概念辨析,相关文献也常把参与生殖隔离的基因广义地称为“物种形成基因”。无论采用何种名称,功能证据与历史证据仍应分别说明,避免将维持现有边界的机制直接当作边界最初形成的原因。
还要区分两个时间维度:合子前和合子后描述的是个体生活史中的先后,启动分化和后期加固描述的是谱系演化史中的先后。一个屏障在受精之前发挥作用,不代表相关基因必然最早发生分化;合子后不兼容也可能参与分化的启动。综述认为,受到生态或性选择的合子前屏障更可能承担早期作用,但仍需检验。
理解合子后生殖隔离,需要考虑Bateson–Dobzhansky–Muller不兼容模型,通常简称BDM模型。其核心是:分别在两个亲本遗传背景中能够正常工作的变化,进入同一个杂种后,可能产生不利的相互作用。因此,某个变异是否造成问题,取决于它与其他位点如何组合。两个亲本各自能够正常繁殖,杂交后代却可能出现发育异常、存活率下降或育性降低。问题可以来自基因之间的不兼容,也可以涉及染色体结构和调控关系的变化。
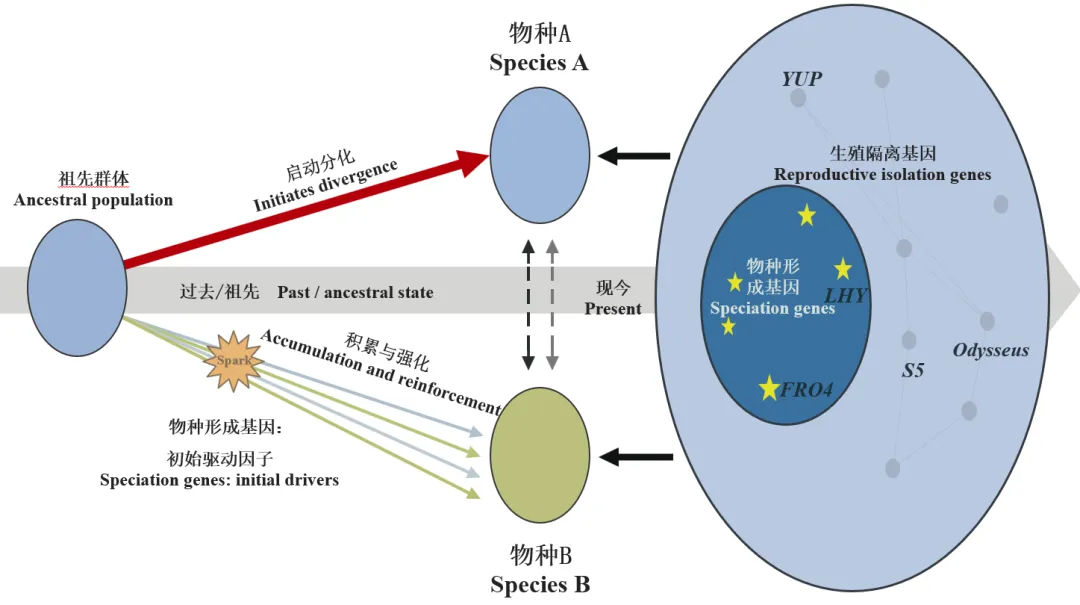
这种不兼容能够在不同历史背景下形成。地理隔离减少基因交流,使不同变化分别积累;没有地理隔离的自然选择也能够推动相邻或同域群体在多个位点上分化,同样产生合子后生殖隔离。地理隔离可以帮助维持和加速差异,但它不是物种形成的必要条件。
综述指出,物种形成基因只是现有物种生殖隔离基因的一个子集,更多可能涉及的是合子前生殖隔离。这也与达尔文物种形成的两个观点是吻合的。首先是变异个体的自然选择物种形成理论,合子前生殖隔离表型才更多表现出自然选择。其次,物种形成应该与完全地理隔离关系不大,因为地理隔离的物种形成理论主要强调遗传漂变驱动了合子后生殖隔离和物种形成。达尔文自己曾说过,他十分怀疑物种形成必须要满足地理隔离这一前提条件。
同倍杂交物种祖源不必各占一半,新性状也可以超出亲本组合
同倍性杂交起源并不要求两个亲本贡献相等比例的遗传成分。《生殖隔离和物种形成基因》讨论了蝴蝶Heliconius elevatus:其大部分祖源与H. pardalinus相连,约1%的遗传成分来自H. melpomene。少量渐渗成分可以具有较大的表型生殖隔离作用。相关原始研究结合群体基因组分析与性状定位,支持生态性状的多位点渐渗参与了这一杂交物种的形成。
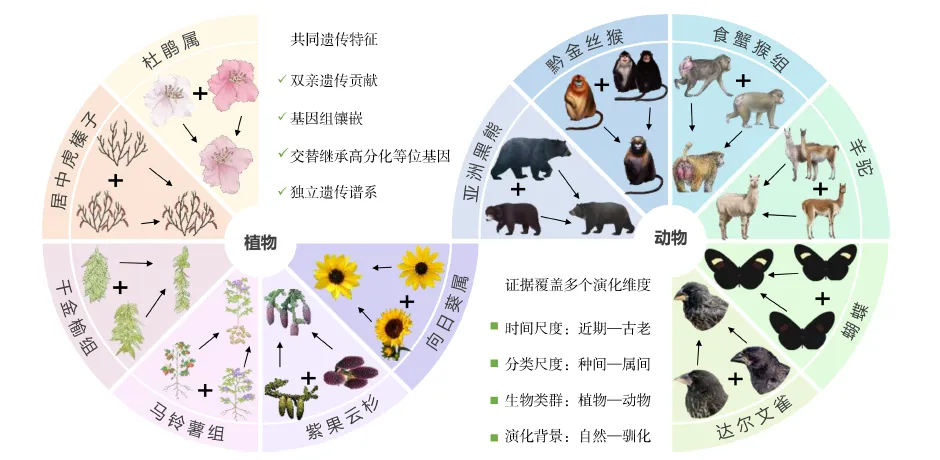
重组也可能产生两个亲本都不具有的性状。四川大学学报综述回顾了马铃薯谱系的案例:研究将其起源追溯至约800万—900万年前的古老杂交,亲本相关谱系均不具有块茎,而杂交后的遗传组合和调控非等位基因新互作参与了块茎性状的形成同样在亚洲黑熊、杜鹃花属等案例展示了相似的遗传机制,也有不同的证据完整度。作者将‘交替继承祖先谱系高分化基因’提出为具有广泛解释力的框架和一般性机制,也是鉴定关键成种基因的基本模型基础,但具体杂交物种形成中的祖源、功能和隔离关系,仍需要分别检验。
杂交谱系、杂交物种形成和杂交渗入
什么是一个杂交谱系?可以是一个物种,也可是一个属、一个科或更高等级的单系分支,更有可能是一个亚种甚至生态型。杂交物种(谱系)的定义实际上更多类似物种的概念,即有更多机会在谱系群体内通过有性生殖繁殖后代,与两个亲本谱系都有生殖隔离,减少基因流。正如分化路上的物种,这种谱系本身也存在或者说不可能找到统一的标准来进行分类等级的界定。但是,一个好种的命名一定是要在物种形成的中后期,无论是形态特征还是合子后生殖隔离都已经非常明显了。
杂交谱系有两个标准:相对独立演化谱系和群体水平上的基因组杂交信号。但是,除了证明杂交谱系外,Molly还提出严格的杂交物种形成还必须证明是杂交本身导致了杂交谱系与两个亲本物种的生殖隔离杂交基因组学:物种边界上的创造与危机动物进化:杂交不是物种边界的失败。实际上,这也是“交替继承亲本谱系高分化基因”与”染色体结构变异、转座子变异、甲基化和基因表达变化“导致杂交物种形成的主要区别地方。前者在杂种形成就已出现,而后者有可能是这个时候出现,也可能在杂种向杂交物种迭代演化中再产生,而且没有办法通过与两个亲本谱系比较拿到表型或生殖隔离关键基因。
让笔者以及很多读者过去感到迷糊的地方,是文献中经常出现的杂交渗入或渗入(introgression)和杂交谱系之间的区别。刘老师在他们以前的文章(Plant Ecology and Diversity)等已经指出,很多文献上的渗入实际上就是杂交谱系,尤其是系统发育分析经常指出的某个属、某个科高级分类单元的杂交渗入,实际上就是不对称的杂交谱系(如从回交一代BC2迭代而成)。PED | 刘建全教授特邀综述:同倍性杂交物种形成:进展与挑战
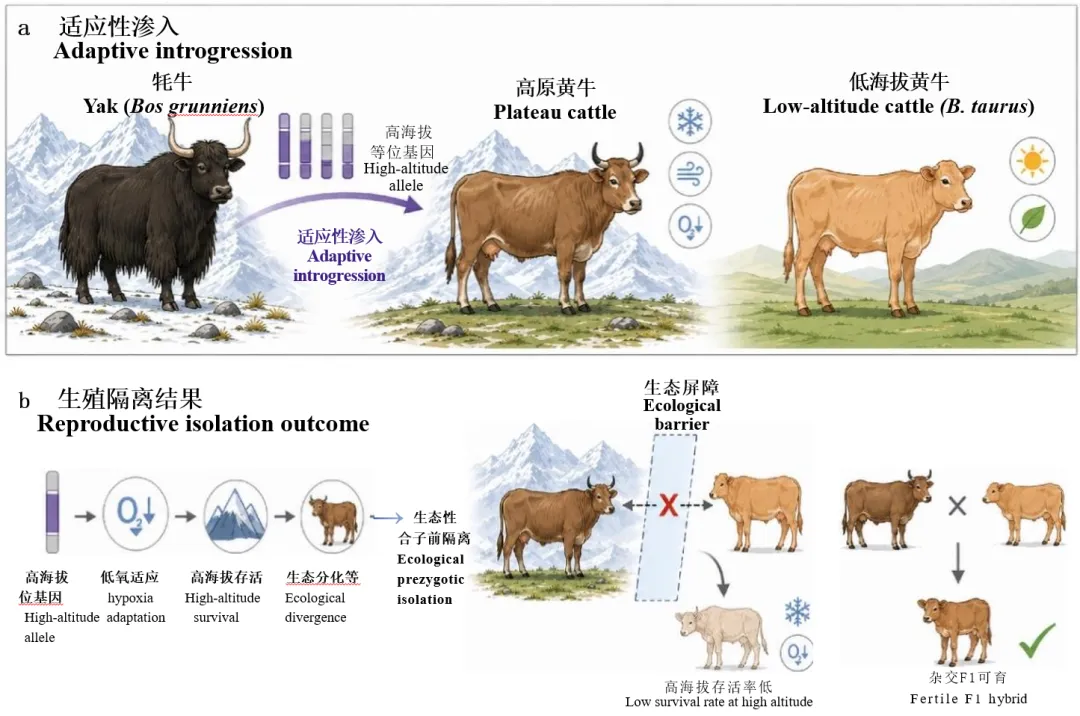
在《生殖隔离和物种形成基因》中,刘老师把这种杂交渗入的过程进行了划分。最早期的,如回交1代(BC1),回交2代(BC2)等归为杂种;而中期的,形成了一个相对独立演化的群体,又归为中性杂交渗入和适应性杂交渗入;适应性杂交渗入(有可能定义品种、亚种等)实际上就是杂交物种形成的早中期了,但要演化到中后期、定义为一个“好物种”,还存在较长的时间尺度。因此,适应性杂交渗入基因,有可能是杂交物种形成基因。而中性杂交渗入是指那些杂交渗入的基因,一开始没有生殖隔离作用,等到环境变化或扩散到新生境时,这些中性渗入基因有可能产生生殖隔离的作用,从而演变为适应性杂交渗入和杂交物种形成基因。实际上,这也与二歧分化过程中祖先多态性转换为物种形成基因有点类似。
祖先来源不对称杂交谱系的时间演化历程是:杂种(BC1, BC2等)迭代演化→适应性(或中性)渗入→早期杂交谱系形成→杂交物种→杂交高级单系群。这个过程可能受环境因素等影响,有些过程可能在某些类群中不存在;但是从现有时间切面看,成熟的杂交谱系中,前面几个过程都不存在,而有些适应性杂交谱系还处于物种形成的前期。有些系统发育分析从野外收集某个物种样品时,有可能采集到杂种,即杂交起源个体(BC1, BC2等,但分类鉴定上仍把它们归于一个亲本),它们没有形成相对独立演化群体,但系统发育分析的时候,这种“杂种”导致的“渗入”和独立演化谱系杂交起源的“渗入”,要在概念和逻辑上有所区别。
种间杂交新组合出现以后,恢复正常有性繁殖和更长时间演化才能形成杂交物种
具有生殖隔离效应的组合或新性状杂交个体出现后,距离稳定的杂交新谱系还有很长的演化时间过程。两篇综述都强调“迭代演化”: 非等位基因重组杂交后代(或杂种)在后续世代中接受与两个亲本物种生殖隔离的自然选择,让它们能相互杂交迭代演化;同时要克服两个亲本合子后生殖隔离导致有性繁殖能力的下降,迭代到完全恢复正常的有性生殖。恢复正常有性生殖后,也要独立演化扩大分布区,出现更多遗传和性状差异,才能成为一个相对成熟的杂交物种。
第一个障碍来自数量。自然杂交区域中,亲本个体往往远多于杂交后代,后者更可能与亲本回交。这样可以形成渐渗,却也可能逐渐稀释原有的新组合。杂交个体能否找到彼此、在同一环境中存活并继续繁殖,关系到谱系能否维持。
第二个障碍是遗传兼容性。后续世代受到BDM不兼容影响。能够存活并留下后代的再组合,可以迭代增加:某些位点可能偏向一个亲本纯化,逐步或快速消除BDM不兼容位点。这一过程并不要求整个基因组完全纯合,也没有适用于所有类群的固定完成代数。
第三个条件是生态与繁殖环境。新的组合需要在现实环境中获得持续存在的机会。生境变化、亲本数量下降或空间分离,可能帮助杂交后代减少反复回交;组合或超亲或创新性新表型的环境适应和交配偏好,则可能进一步维持其独立性。
因此,杂交可以提供遗传组合,组合能否留下,还取决于选择、重组、漂变、群体数量和生态条件。不同谱系完成这一过程的速度,也可能相差很大;实际上从杂种迭代开始,其杂交成种命运还是受到太多的影响因素。上面提到的适应性杂交渗入,从早中期的杂交谱系演化到中后期成熟的“杂交物种”,还存在很多未知数。
未来研究把候选生殖隔离基因连接到物种形成的起点
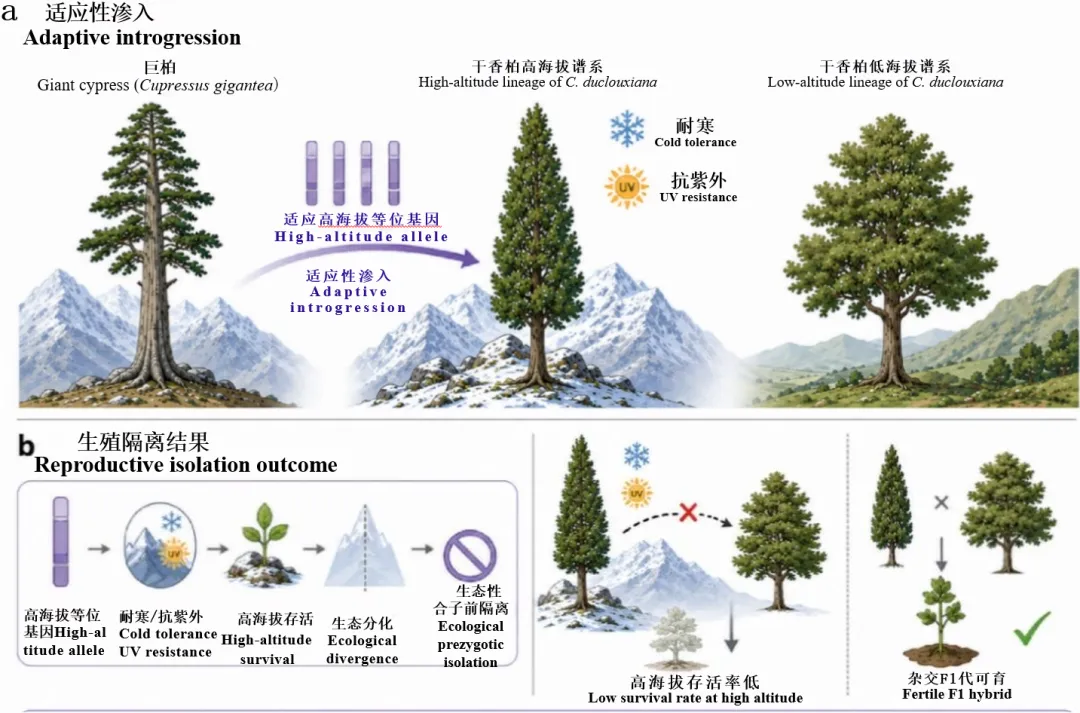
鉴定关键基因需要把功能实验与历史重建结合起来。首先要确定谱系关系,并比较杂交、渐渗、祖先多态性等不同状况,特别是处于物种分化的时间阶段;随后再追踪候选生殖隔离等位基因的来源、选择和固定过程。植物可以比较花期、授粉、种子发育、后代存活和育性;动物则需要结合交配行为、生态差异与杂种有性生殖表现。
二歧物种形成过程的遗传高分化区段可以帮助提出候选位点,但仍须对应到具体表型和繁殖后果。长读长测序、转录组、染色质分析和基因编辑,可以帮助解析结构变异与新的基因调控互作。而模拟、预测模型和人工智能方法可用于鉴别生殖隔离基因分化形成时间和对物种形成的作用。但这些工具主要用于比较历史场景、提出候选机制和提高计算效率;不同历史可能产生相似的基因组格局,仍需要独立数据与功能实验解释。对于被解释为早期分化的生态型、亚种或驯化品系,也应分别说明已经证明的隔离、尚待验证的机制,以及分类上的处理。
杂交成种一般性机制对远缘杂交育种的启发
过去的远缘杂交重点关注:(1)F₁杂种优势,如不以有性生殖为目标的树木或部分果树育种,直接用F1代无性繁殖;或减少生殖隔离遗传冲突,恢复有性生殖,创制高遗传杂合度的F1杂种,如水稻亚种杂交育种;(2) 持续回交转移少量目标基因(类似于杂交渗入少量基因),如小麦杂交育种;(3)利用种间F2代杂交分离群体、利用GWAS来定位两个亲本物种或亚种表型差异之间的关键基因和等位遗传变异,再把这些等位变异用于品种改良。
同倍杂交物种一般性机制的建立,特别是非等位基因重组变异个体自然选择成种,为远缘育种提供了一个值得考虑的思路:在条件允许的类群中,扩大种间或亚种间杂交F2极端分离群体的个体数量,重点是鉴定性状新组合或超亲表型或创新性状的特殊个体,如:多年生与一年生物种杂交F2代,选择交替继承相关分化基因、具有多年生物种多年生性状和一年生物种其他优异性状的个体;或两个一年生物种或亚种杂交,在F2代中选择具有‘创新性状-多年生’的个体。如果种间遗传分化和生殖隔离过大,使F1或F2代个体数量过少,可以先回交、再建立BC1-F2分离群体;依次类推。种间亚种间差异的遗传分化位点非常多、非常大,形成的新组合,特别是非等位基因新互作机会非常多,有可能获得不可想象的超亲或创新性状。
这些特殊个体,有两个途径可以在远缘杂交育种中使用:(1) 把特殊个体迭代繁殖,恢复有性生殖,直接做为育种新材料;(2) 把这类特殊个体,尤其超亲或创新性状个体,与亲本回交,建立性状分离群体,鉴定关键基因和等位变异,再进行各类验证,再把这些等位变异在成熟品种中进行基因编辑或通过分子标记的反复回交转入进去。第二条途径与已有直接利用F2群体GWAS或有超亲性状分子机制鉴定的区别是,这个方法要找的是两个基因位点的等位变异,不是以前方法找的一个基因位点的等位变异(尽管有时也找上位效应的遗传机制),因而更多看的是非等位基因重组和基因新互作。
本文是笔者在刘老师指导下进行的解读,可能还有不准确的地方,请直接和刘老师联系沟通。读完两篇综述,终于理解了同倍杂交物种一般性机制的重要性,感觉比很多发表在主刊/大子刊的文章重要多了,也理解了当时提出和验证该机制的Molecular Plant工作被CNS反复拒稿的原因(好的研究工作不一定都要/都能发表在CNS上),可能是如今很多审稿人和编辑会对物种、生殖隔离等概念感到模糊。
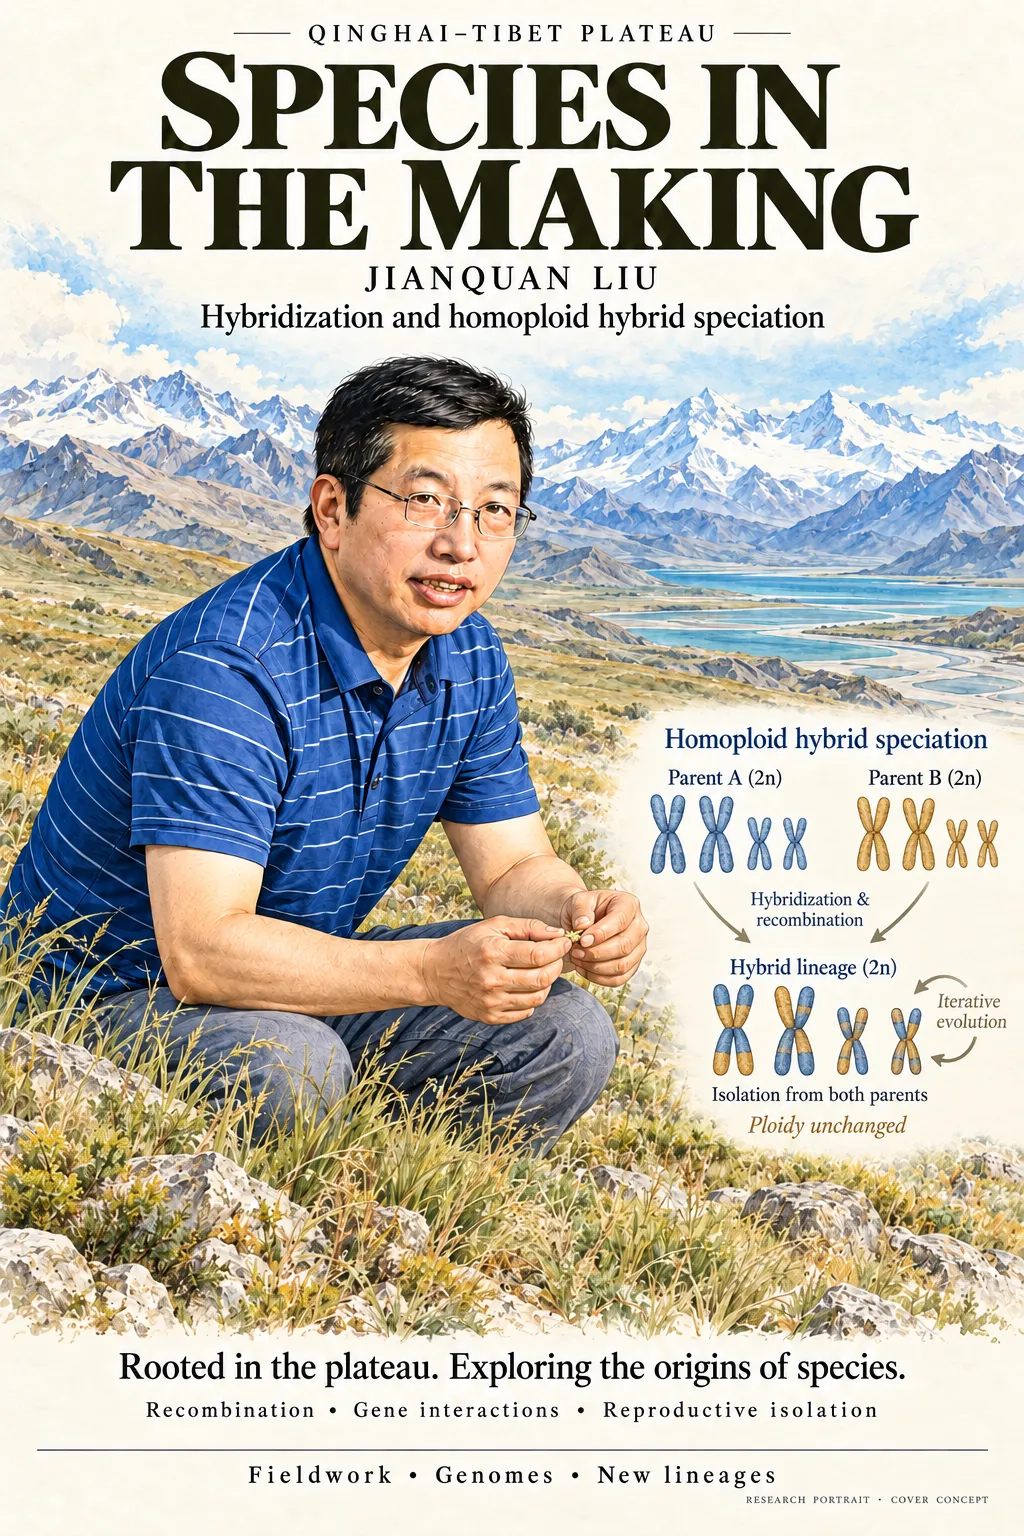
刘建全,兰州大学教授,生态学院院长。1987年9月至1991年7月就读于四川大学,获植物学专业学士位;1996年9月至1999年8月就读于中国科学院研究生院(植物研究所),获植物学专业博士学位。曾在中国科学院西北高原生物研究所、四川大学等工作。长期从事进化生态学研究,先后获得国家自然科学基金杰出青年基金、教育部重要人才计划、国家级重要人才计划、国家自然科学基金重点项目等资助,并荣获全国百篇优秀博士论文奖、中国青年科技奖、国家自然科学二等奖、教育部十大科技进展、教育部自然科学一等奖等奖励,为国际分子生态学奖、国际生物地理学会会士评审委员会等重要学术组织成员,以通信联系人身份(含并列)在Cell(2篇),Science,Nature Ecology & Evolution,Nature Genetics,Nature Plants,PNAS,Nature Communications,Science Advances等发表论文200余篇,被引 2.5万余次,长期为高被引作者。