高中生物疑点通
张胜秦磊主编
中国科学技术大学出版社
~
~
~
二
■
■
■
■
|
田
|细‖
●
●
/00′
↑巳/′“
态
Ⅲ节/′79
〃63
~
~
~
~
~
~
~
~
〃77
27
||
‖
}
】
】
■
≡
■
|
汞
稳
纪
●
〗
◎双缩脉试剂能用于鉴定二肋吗?
/OO2
◎什么是还原糖?
/oo3
◎淀粉遇碘_定变蓝吗?
/oo4
◎甲基绿染液能否单独用于观察I)NA在细胞内的分
布?
/oo5
◎为何糖类是主要能源物质,而脂肪是良好储能物
质?
/oo7
◎红细胞是红色的吗?
/oo8
◎脊椎动物的红细胞都没有细胞核吗?
/o1o
◎人体成熟红细胞`
|‖[小板为什么都没有细胞核?/o11
◎细胞质膜上的蛋∩质有何功能?
/O12
◎胆固醇在细胞质膜中有何作用?
/o16
◎细胞间信息交流的方式有哪些?
/o17
◎细胞间通信常见的化学信号有哪些?
/o19
◎差速离心后细胞器如何分布?
/o22
◎内质网能合成萤白质吗?
/O23
◎高尔基体与细胞壁形成有何关系?
/o25
◎溶酶体是怎样_种细胞器?
/o27
◎液泡仅存在于植物细胞中吗?
/o32
◎只有分泌蛋白合成和分泌需要内质网与高尔基体参
与吗?
/O33
◎纤维素是在高尔基体合成的吗?
/o35
◎哪些物质可以通过核孔运输?
/o36
◎物质以什么方式出人细胞核?
/o37
◎细胞核内的_些物质有何里要功能?
/o4o
◎植物能吸收蔗糖为什么还能用蔗糖观察质壁分离?
/叫2
◎黑藻叶片能用于观察质壁分离的实验吗?
/O43
◎种子萌发过程吸水速率有没有变化?
/o44
◎主动运输需要的能量来源是什么?
/o45
◎影响物质出人细胞的因素有哪些?
/o46
◎丙酮酸是如何进人线粒体的?
/o49
◎单糖进人小肠上皮细胞的方式_样吗?
/O5O
◎小肠上皮细胞吸收葡萄糖的方式是什么?
/o51
◎胞吞和胞吐是不是跨膜运输?
/o52
◎胞吞和胞吐是否属于主动运输?
/O54
◎胞吞和胞吐作用是否只运输生物大分子?
/O55
◎受体在物质运输中的作用是什么?
/o56
◎酶是如何与特定底物识别并结合的?
/o57
◎种子萌发过程酶含量如何变化?
/o58
◎核酶为何物?
/o59
◎蛋白酶和肋酶在水解蛋白质方面有何区别?
/o61
◎ATP和它的“兄弟姐妹”
/o63
◎高能磷酸键是怎样一个化学键?
/o66
◎只有ATP是直接能源物质吗?
/o67
◎ATP的化学能可以转化为热能吗?
/o68
第
一
篇
介
子
与
细
叁
战
●
凹
◎无氧呼吸第二阶段有无肖瞳产牛?有无AIP生成?
/吨
◎种子萌发过程呼吸速率如何变化?
/o71
◎种子萌发过程有机物如何变化?
/o72
◎氧气能抑制哺乳动物成熟红细胞的无氧‖乎吸吗?
/O刀
◎生物体内的能源物质有哪些?
/o74
◎水的光解需要酶吗?
/o76
◎光质如何影响植物的光合作用?
/o77
◎叶绿体能利用外源ATp吗?
/o8o
◎光反应产生的ATP只用于暗反应吗?
/o82
◎着丝点就是着丝粒吗?
/o84
◎细胞分裂后期,是着丝点分裂还是着丝粒分裂?
/o86
◎纺锤丝和星射线在本质上是_问事吗?
/o87
◎碱性染料是碱性的吗?
/o88
◎细胞凋亡与细胞坏死是_回事儿吗?
/o9o
◎什么是端粒?
/o92
◎什么是端粒酶?
/o93
◎端粒酶有什么作用?
/o95
◎癌细胞是如何产生的?该如何预防?
/o97
◎原癌基因是如何成为癌基因的?
/o99
◎病毒致癌因子如何诱导细胞癌变?
/1o1
◎抑癌基因常见的有哪些?
/1O2
◎同位素标记就是放射性同位素标记吗?
/1O4
◎◎
◎
仰M″`0′闷√^|/v巡′`划′`陋/Ⅵ似哪|/v
{l′n〃′√
|‖□高中生物疑点通
|
=■】
…■】
||同试荷‖|能|酣
邪
|「∩||
=
〔】【
↑。腮和双缩腮分别是什么?
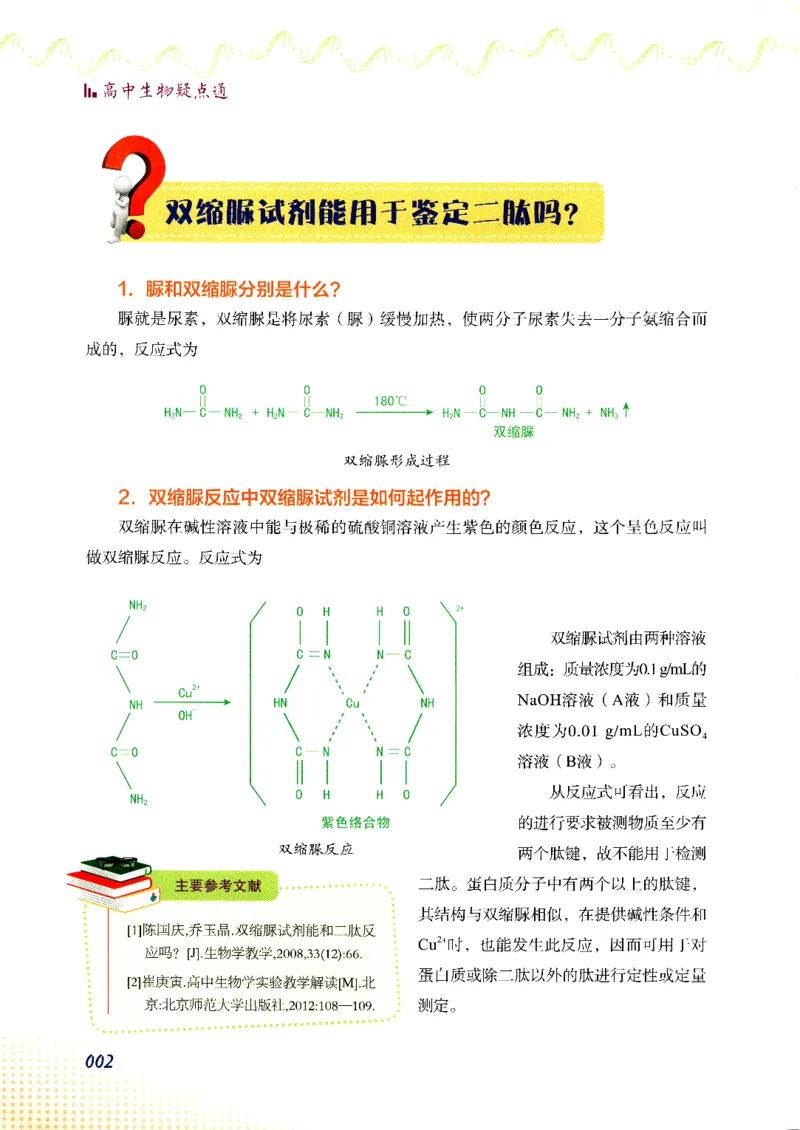
腮就是尿素,双缩腮是将尿素(腮)缓慢加热,使两分子尿素失去_分子氨缩合而
成的’反应式为
0
0
0
O
|
|
|
|
|80℃
|
|
‖
>‖2‖—c—‖‖—0—‖‖z+‖‖3↑
‖2‖—C—‖‖2
+‖2‖—0—‖‖2
双缩腮
双缩脉形成过程
2双缩腮反应中双缩腮试剂是如何起作用的?
双缩腮在碱性溶液中能与极稀的硫酸铜溶液产生紫色的颜色反应’这个呈色反应叫
做双缩腮反应°反应式为
‖
刚
/
/
/
回
`
\
\
川
/
/
/
曰
\
\
\
‖
‖
‖
‖
。
\
\
"
/
/
β
|
。
咋
|
‖
物
回
‖
‖
‖
‖
‖
‖
川
Ⅳ
〃
`
△
口
〃
飞
″
飞
〃
`
∏
屯
醛
应
凹
∩
℃
●
∏飞
〃
"
|
‖
紫
…
℃
″$
〃
‖
|
‖
`
′
~~
。
|
‘
/
‖
\
‘
‖
。
缩
双
‖
/
\
\2←
双缩腮试剂由两种溶液
组成:质量浓度为01g∧nL的
NaOH溶液(A液)和质量
浓度为0.0lg/mL的CuSO4
溶液(B液)
。
从反应式可看出’反应
的进行要求被测物质至少有
两个肤键,故不能用于检测
蛋白质分子中有两个以上的肤键’
0u2+
→
0‖
/
|
二肤。蛋白质分子中有两个以上的肤键’
其结构与双缩腮相似’在提供碱性条件和
Cu2+时’也能发生此反应’因而可用于对
蛋白质或除二肤以外的肤进行定性或定量
测定°
主要参考文献
|………….…
●●
●
[1]陈国庆’乔玉晶双缩脉试剂能和二肋反
应吗? [J]生物学教学`2008’33(12):66
[2]崔庚寅.高中生物学实验教学解读[M].北
京:北京师范大学出版社’2012:108—{09.
●●●●●●●●●●●●●●●■●●●■●■■甲
●●●●●
●
●●●●●●
●
●●●●
002
须
囊
第—篇分子与细胞
■
F
=■■■==草=■■■■■■0■■■
还膘糖?
■■■■■■■■■■0■B■
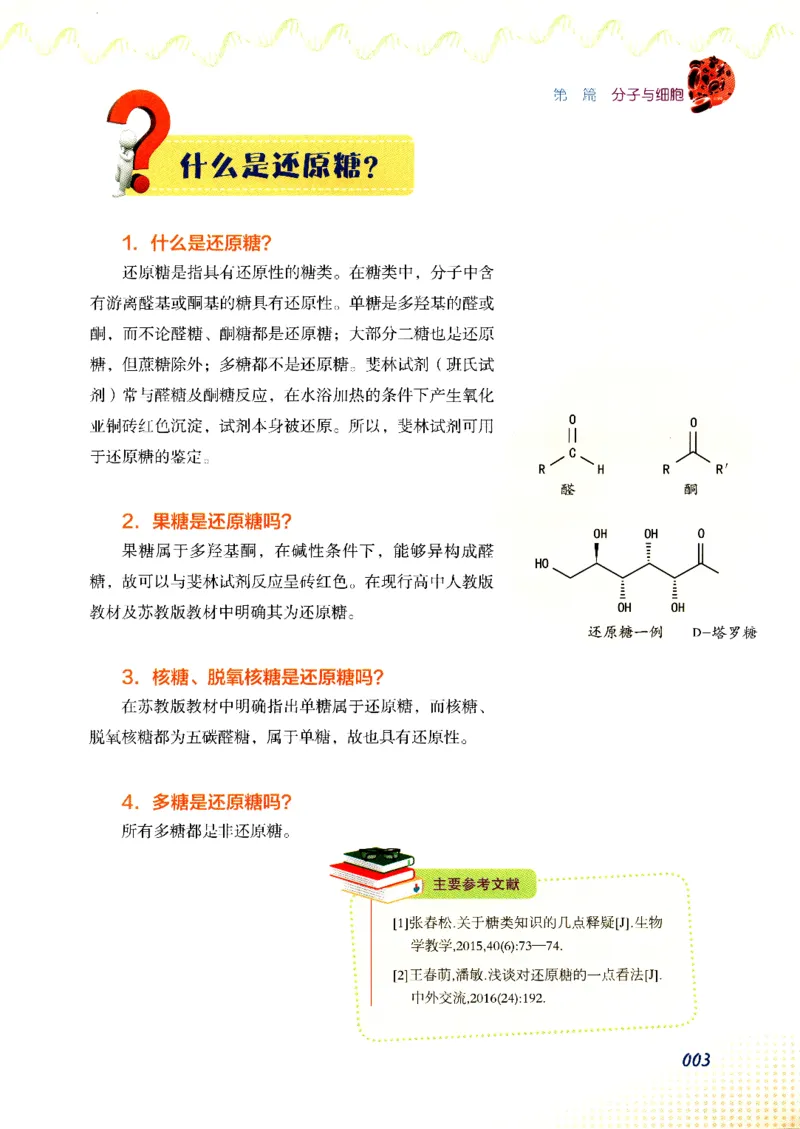
↑.什么是还原糖?
还原糖是指具有还原性的糖类。在糖类中,分子中含
有游离醛基或酮基的糖具有还原性。单糖是多轻基的醛或
酮’而不论醛糖、酮糖都是还原糖;大部分二糖也是还原
糖’但蔗糖除外;多糖都不是还原糖。裴林试剂(班氏试
剂)常与醛糖及酮糖反应’在水浴加热的条件下产生氧化
亚铜砖红色沉淀’试剂本身被还原。所以’裴林试剂可用
于还原糖的鉴定。
‖
~
∩
|
○
/
尺
2果糖是还原糖‖马?
果糖属于多轻基酮,在碱性条件下’能够异构成醛
糖’故可以与裴林试剂反应呈砖红色°在现行高中人教版
教材及苏教版教材中明确其为还原糖。
醛
酮
0‖
0‖
0
\人人人
‖0
二
二
0‖
还原糖一例
三
~0‖
D-塔罗糖
3。核糖`脱氧核糖星还原糖码?
在苏教版教材中明确指出单糖属于还原糖’而核糖`
脱氧核糖都为五碳醛糖,属于单糖’故也具有还原性。
4多糖星还原糖〗马?
所有多糖都是非还原糖。
)主要参考文献‖……
●●●●●●●●●●◆●●●●●●●■
●
[1]张春松.关于糖类知识的几
学教学’2()l5’40(6):73—74.
[2|王春萌’潘敏.浅谈对还原糖
中外交流’2()16(24):192.
潘敏.浅谈对还原糖
点释疑「J|生物
●
●
●
●
●
●
●
●
的
]
什
佑
≡
曰
占
…
GGGGGGNGGGGIGGGGGGGGGGGGGGGGGGGGGGGGGGGGGGIGGGGGGGGGGG
003
■
●
砂
●
●
●
●
●
●
●
●
●
们
斟k′‖
√、
"W
√w
魁||∩`ⅥⅥ
^7′
h′‖
″|
″
『‖
|‖■高中生物疑点通
~
淀粉遇腆一定蛮蕊‖马?
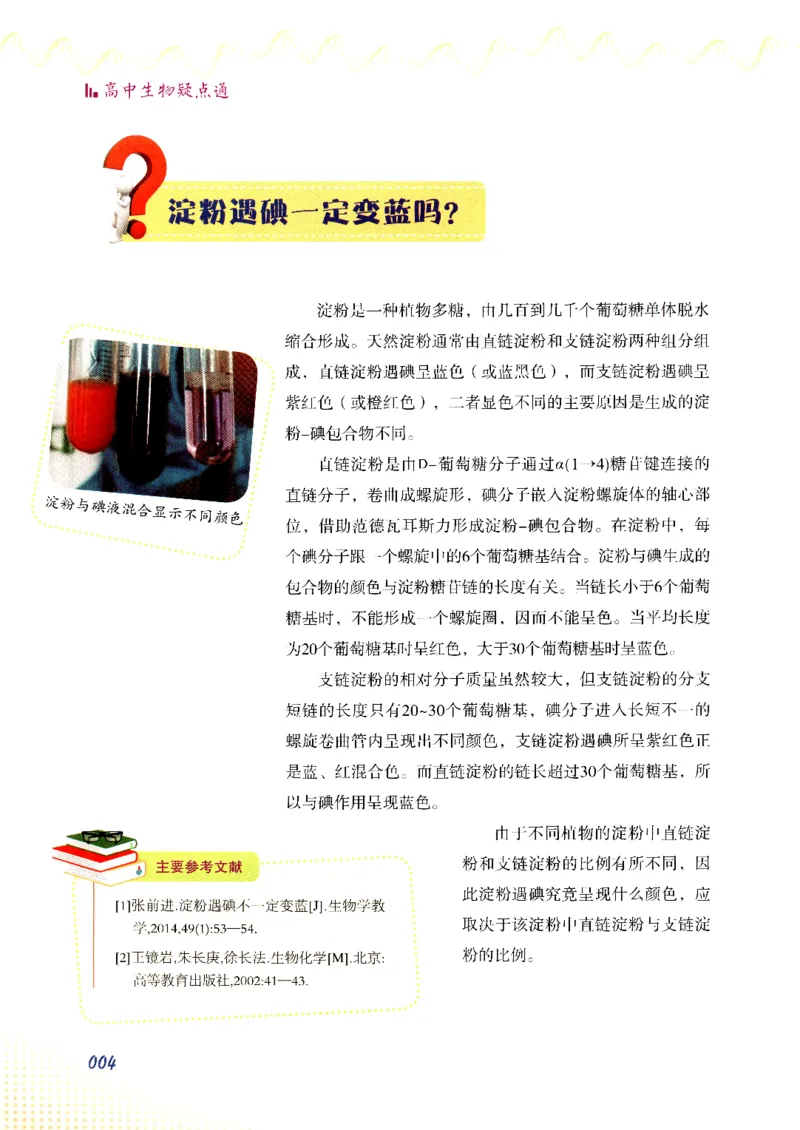
淀粉是—种植物多糖’由几百到几千个葡萄糖单体脱水
缩合形成。天然淀粉通常由直链淀粉和支链淀粉两种组分组
成’直链淀粉遇碘呈贿色(或蓝黑色)’而支链淀粉遇碘呈
紫红色(或橙红色),二者显色不同的主要原因是生成的淀
粉ˉ碘包合物不同。
直链淀粉是由D-葡萄糖分子通过α(l—掺4)糖昔键连接的
直链分子’卷曲成螺旋形’碘分子嵌人淀粉螺旋体的轴心部
位’借助范德瓦耳斯力形成淀粉ˉ碘包合物。在淀粉中’每
个碘分子跟一个螺旋中的6个葡萄糖基结合。淀粉与碘生成的
包合物的颜色与淀粉糖昔链的长度有关。当链长小于6个葡萄
糖基时,不能形成_个螺旋圈’因而不能呈色。当平均长度
为20个葡萄糖基时呈红色’大于30个葡萄糖基时旱荫色。
支链淀粉的相对分子质量虽然较大’但支链淀粉的分支
短链的长度只有20~30个葡萄糖基’碘分子进人长短不_的
螺旋卷曲管内呈现出不同颜色’支链淀粉遇碘所呈紫红色正
是蓝`红混合色°而直链淀粉的链长超过30个葡萄糖基’所
以与碘作用呈现蓝色。
由于不同植物的淀粉中直链淀
粉和支链淀粉的比例有所不同’因
此淀粉遇碘究竟呈现什么颜色’应
取决于该淀粉中直链淀粉与支链淀
粉的比例。
/=文·
|
[|]张前迸淀粉遇碘个
●●●
定变蓝|J]生物学教
学’2()14’49(1):53—54.
[2]王镜岩’朱长庚徐长法生物化
高等教育出版社,2002:41—43.
学[M].北京
●
●
●
●
●
●
■
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
■
004
"〃∏
参
第-篇分子与细胞
■■==■■■=■≡■=二=■…=■≡■==■■=■=■=====■■二==■■■■
】
观察DNA枉绷胞内的分而?
■
『
■
■
匣能否单!Ⅷ|舵
■
=
■
∩
仟’
■■■■■■■■■■■■■■■■■■■
■■■
■■===■■=■■■■■■=■■■■=■■
』■■■
■■■二■=…≈■■■■■■■■
尸
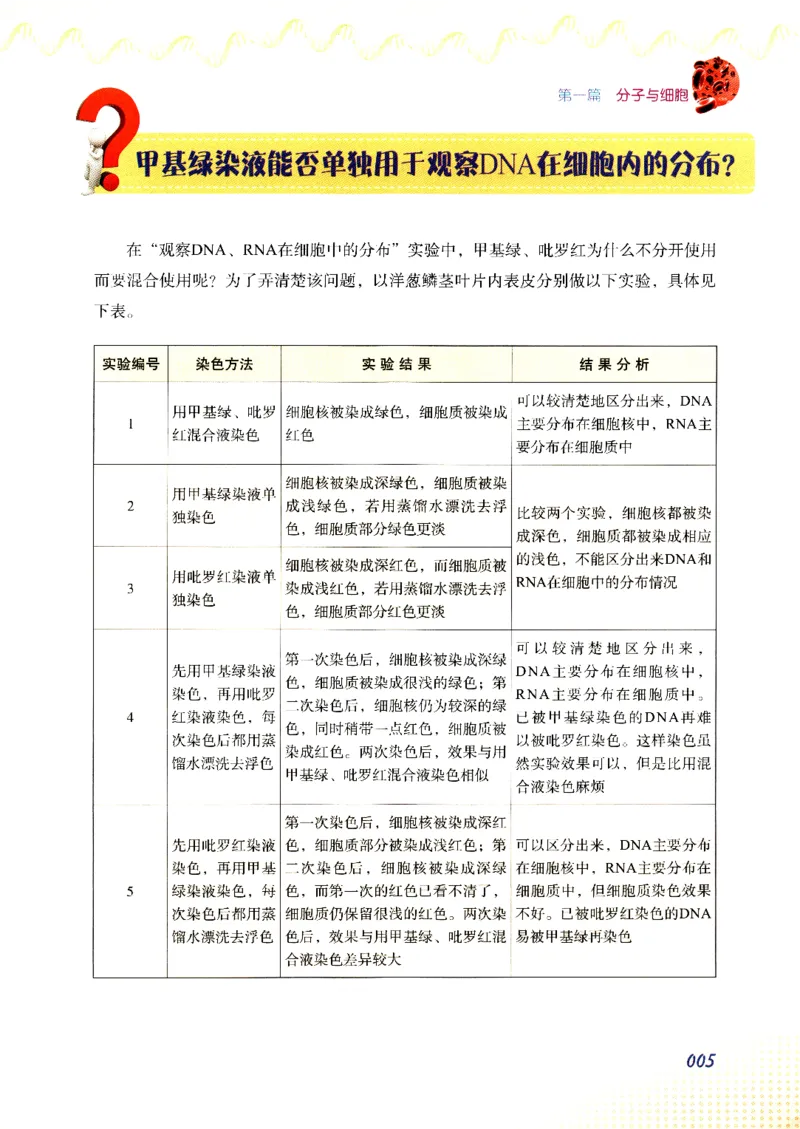
在‘观察DNA`RNA在细胞中的分布”实验中’
甲基绿、毗罗红为什么不分开使用
而要混合使用呢?为了弄清楚该问题’以洋葱鳞茎叶片内表皮分别做以下实验’具体见
下表。
实验编号
染色方法
实验结果
结果分析
可以较清楚地区分出来,DNA
主要分布在细胞核中’ RNA主
要分布在细胞质中
细胞核被染成绿色’细胞质被染成
红色
用甲基绿、毗罗
红混合液染色
l
细胞核被染成深绿色’细胞质被染
成浅绿色,若用蒸馏水漂洗去浮
色’细胞质部分绿色更淡
用甲基绿染液单
独染色
勺
丝
比较两个实验’细胞核都被染
成深色,细胞质都被染成相应
的浅色’不能区分出来DNA和
RNA在细胞中的分布情况
细胞核被染成深红色,而细胞质被
染成浅红色’若用蒸馏水漂洗去浮
色’细胞质部分红色更淡
用毗罗红染液单
独染色
句
〕
可以较清楚地区分出来,
DNA主要分布在细胞核中’
RNA主要分布在细胞质中°
已被甲基绿染色的DNA再难
以被毗罗红染色°这样染色虽
然实验效果可以’但是比用混
合液染色麻烦
第一次染色后’细胞核被染成深绿
色’细胞质被染成很浅的绿色;第
二次染色后’细胞核仍为较深的绿
色’同时稍带_点红色’细胞质被
染成红色°两次染色后’效果与用
甲基绿`‖比罗红混合液染色相似
先用甲基绿染液
染色,再用毗罗
红染液染色,每
次染色后都用蒸
馏水漂洗去浮色
4
第_次染色后’细胞核被染成深红
色,细胞质部分被染成浅红色;第
二次染色后,细胞核被染成深绿
色’而第_次的红色已看不清了,
细胞质仍保留很浅的红色。两次染
色后,效果与用甲基绿、毗罗红混
合液染色差异较大
可以区分出来’DNA主要分布
在细胞核中, RNA主要分布在
细胞质中’但细胞质染色效果
不好。已被毗罗红染色的DNA
易被甲基绿再染色
先用毗罗红染液
染色’再用甲基
绿染液染色,每
次染色后都用蒸
馏水漂洗去浮色
5
005
孤
|
用甲基绿`毗罗红混合液染色时’
甲基绿易与聚合程
度高的DNA结合’而使之染为绿色’毗罗红则易与聚合程
度低的RNA结合’而使之染为红色°甲基绿和毗罗红都易
与DNA结合而将其染成相应的深色’但甲基绿与DNA的
结合能力比毗罗红强且稳定;已被甲基绿染色的DNA难以
再被毗罗红染色,而已被毗罗红染色的DNA易被甲基绿再
染色; RNA与毗罗红的结合能力比DNA强。因此’用甲基
绿、毗罗红混合液染色时, DNA首先与甲基绿结合’使之
染为绿色’而不再与毗罗红结合; RNA则与毗罗红结合’
而使之染为红色。用混合液染色’两种染液基本互不影‖问。
若甲基绿和毗罗红单独使用’则细胞内的DNA和RNA
均可与之结合’结果DNA或RNA均被染为绿色或红色。细胞
核对甲基绿或毗罗红的亲和力比细胞质强,这是由于细胞核
中的核酸比细胞质更密集’因此两种染液都使细胞核染色
深’细胞质染色浅;细胞核被甲基绿、毗罗红混合液染色与
被甲基绿单独染色’存在—定差异,单独染色偏绿—些’混
合液染色偏蓝—些’这说明用混合液染色时细胞核被甲基绿
染色的同时也被毗罗红染色’只不过毗罗红着色很浅’对甲
基绿染色效果影响甚微。
总之’在观察DNA`RNA在细胞中的分布实验时’甲
基绿`毗罗红最好混合使用’否则实验效果不好’或者不能
分辨出DNA和RNA在细胞中的分布情况。
武
′
/奎霉…
[1]王志宏.甲基绿毗罗红」
教学与仪器’2011(9):37
甲基绿毗罗红必
●●●●●●●●●●●●●
须混合使用吗?
[J].实验
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
006
G
I
G
|u′″灿′厕`则′当′‖‖^!′`1Ⅱ
■
第篇分子与细胞
尸抛′
~)
}
■二…■■==乙■■≡======■=≡≡■=■≈■=■乙==■■=……■■■=乙■■■■■■===■■=■■==■=■=■==
■■===■→==】
■F
侧糖类是主要能源物质,Ⅲ脂肪是良好储能物质?
■■■■=■■■=■■■■■■■■■宇■■■■■■■■=■≈=乙■■■■■〗■■甲■■=≡■■■→…=←■■■==■■■■■■■■二■■≡=■■■■=■→<=■■■■■
■■■
■■■■■■0■■→■■■■←■■■■=■■=
糖类在生物细胞内氧化速率比脂肪快’且既可在
有氧条件下也可在无氧条件下进行’因此尽管糖类和
脂肪都可以储存能量,但是糖类是生物体生命活动的
主要能源物质。
脂肪是非极性化合物’能以无水的形式储存在体
内°虽然糖原也是动物细胞内的储能物质’但它是极
性化合物,是高度水合形式的’在机体内储存时所占
的体积相当于同等质量的脂肪所占体积的4倍左右’因
此脂肪是_种很‘经济,’的储备能源。
从单个分子来看:_分子的六碳糖(葡萄糖)
彻底氧化分解产生的ATP分子数为30或32’而_分子
的六碳饱和脂肪酸彻底氧化分解最后产生的ATP分子
除去活化脂肪酸变成脂酷CoA过程消耗的后剩余数为
36。因此—分子的脂肪释放的能量更多。
从质量来看:
lg脂肪在体内氧化分解释放的能
量是38.9lkJ。lg糖类在体内氧化分解释放的能量是
l7.l5kJ°可以看出’等质量脂肪所含能量多`比重
小、所占体积小,对于贮存能量有利。因此脂肪是
良好的储能物质。
翰
富含淀粉的食物
富含脂肪的食物
●●●●●●●●
|主要参考文献
[]]金卫杰.脂肪能量高的原因[J].中学生物
学2010’26(1):3—4.
[2]张春松关于糖类知识的几点释疑[J].生物
学教学’20l5’40(6):73—74.
●
●
●
GGGIGIIGGGGGGGGGGIGGGGGGGGGGGGGGGGGGG
GGGGGGGGGGGGGGGGI
007
(吵′`灿′``、汹W灿|′
|‖口高中生物疑点通
∏
■
■
』
=
■■■■『=■■■■■
■■■■■■■=■■==…=■■■==■■
■■■
■■■■=■■■
■■=<
胞是红色的码?
=■■=■■■■■■■■■■■=■■=0■
■■=■■=■p=→==当乙■■■=≈
人和其他‖甫乳动物的成熟红细胞没有细胞核’而其他低等动物的红细胞具有细胞
核’红细胞含有大量的Ⅲ红蛋白’Ⅲ红蛋白主要由珠蛋白和Ⅲ红素组成°人体Ⅲ红素是
—种含铁的∏卜淋化合物’是珠蛋白的辅基’在生物体中具有运输氧气和氧化还原作用。
每个珠蛋白由四条肤链构成’每条肤链均结合_个Ⅲ红素分子’每个Ⅲ红素分子含—
个Fe2+’可以结合_分子氧气°故—分子Ⅲ红蛋白在氧饱和的情况下可以运输四分子的
O2’呈红色;若四分子的O2脱去’则呈蓝紫色
同颜色及数量比决定了红细胞的颜色。
正是氧合Ⅲ红蛋白和去氧lⅢ红蛋白的不
@
\二二出
尸
■
砸
团
@
α
血红蛋白
00J
◇●$
o●●$
●
●■●
●
●
●
■
●
硼′′‖
{``测刃`
M
`啼≤
划′
订`吮
″「`『`d′v`′
Ⅷ〃
古
≡p
勤ˉ
第—篇分子与细胞
(
l )在流动的Ⅲ液中’红
细胞的新陈代谢正常°在动脉Ⅲl
中,Ⅲ红蛋白和氧结合’红细胞
C‖3
C‖=C‖2
0====0
呈鲜红色;在静脉Ⅲ中’血红蛋
白和氧分离’红细胞呈暗紫色;
‖↑—c≈"/c=‖‖
‖:—!≡≥嗡汇}二!二!‖乙州`盘撒慧:
I素
0‖2
‖c=0
c=0‖
(2)在∏液的临时涂片上’
000‖
0====0
红细胞密集处(涂片起始端)
’
0‖2
0‖3
0‖2
其颜色为红色;红细胞密度小
000‖
处’其颜色为浅红色或摘红色;
涂片边缘部位红细胞呈浅黄色或
懦黄色;而单个孤立存在的红细
胞则为黄绿色。
(3)在血液的固定涂片上’所有l‖l细胞都经过瑞氏染料处理’红细胞呈鲜红色°此
时红细胞都是死细胞,其颜色主要是瑞氏染料中伊红钠盐的颜色°
动物的血液也不都是红色的’红色血液只是其中的_种’Ⅲ液颜色由存在于血浆或
Ⅲ细胞中的Ⅲ色蛋白所结合的金属元素决定’含铜的Ⅲ色蛋白是Ⅲ蓝蛋白’呈现蓝色或
青色;含钒的Ⅲl色蛋白为lⅢ绿蛋白’呈现绿色;含铁的血色蛋白是Ⅲ红蛋白’呈现红
色。蛆蛆|、河蚌`蜘蛛的Ⅲ色蛋白溶于[Ⅲ浆中’而脊椎动物的Ⅲ色蛋白位于血细胞中。
‖幻素
趾
『
鲤
喻
主要参考文献‖…
■●●●●●●●●●●●●●●●●●●●●●●■●●
生物学杂志
[
||张翔升.红纤|{胞是红色的么[J]
l991,44(6):22
●
●
等
—
汀
向
`
泵
北
Ⅷ
[
理
≡
丁
』
、
防
王世强生理学
|2]梅岩艾’王建军’王
教育出版社,2〔)]|
◆
●
l()5—l()6
■
●
■
■
了
■
■
■
■
■
●
●
●
●
●
■
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●■●●■●●●●●●●●T●■●
009
◆
仔
●
●
●
●
●
●
″h
~l〃^
`
、
~~
=
|‖□高中生物疑点通
可
~~~~~~~
旧?
图删没乍
▲
■
=
■
■
■
叮
勺
』
■
■
~
~~
~
』
‖
‖
~
~~
~
~
~
~
~
~
目
可」|‖M|
||
一
一
=
■■=====二】
在哺乳动物(除骆驼和羊驼之外)中’
成熟的红细胞是没有细胞核的’这意味着它
们不含有储存于细胞核中的DNA°相比较而
言,包括鸟类在内的其他几乎所有的脊椎动
物的红细胞都是有核的(除了两栖动物有尾
目的蝶姬)
°
哺乳动物的成熟红细胞也没有线粒体’
它们通过无氧呼吸产生能量。而且红细胞表
面也没有胰岛素受体,因此其葡萄糖摄人不
能被胰岛素所调控。由于缺少细胞核和细胞
器’因此哺乳动物成熟的红细胞不能产生结
构蛋白、修复蛋白或酶’使得其只有有限的
寿命。
哺乳动物的红细胞呈扁平状’且两面中
心都向内凹陷。这种结构可以最大限度地从
周围摄取氧气。哺乳动物的红细胞基本为圆
形’只有骆驼的红细胞为椭圆形。
剖视图
000万
蛋臼分子
I5
‖Ⅷ
俯视图
}
●●●●●●●
●●●●●●●■●●●●●●●●●●●●●
主要参考文献
[1]董明宏.有关血液知‖ (的_些疑问的解答[J]生物
学教学,2013’2:60—62.
[2]武汉大学’南京大学’北京师范大学.普i匣
[M]北京:高等教育出版社,1983:477—478
’北京师范大学.普通
●
动物学
[3|姜乃澄丁平动物学[M]ˉ2版杭)`‖:浙江大学出版
社’2009:147
●●●●●■勺●●●●●●●◆
0′0
■
■
◆
■
●
●
●
●
~~
~~
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
d"
[
\`
厂\
/∏``"^|低
`
吵
ˉm′
u`l’
戮
第
篇分子与细胞
b
nij`稳丙舷翻疆砌胞瞬
■■=二乙■■=→…■■■■■■■==乙■■
0■■=乙=■■■■■=■■■
■■■=■=■■
■■■■■■■
■■■
■■■■■■■
】■■
■■■■=■…■■埠
■■■■
、
■■■■
0■■
这主要与其生成过
程有关。生成各种lⅢ细
胞的原始细胞是人体红
骨髓产生的造」Ⅲ干细
胞,红细胞、Ⅲ小板都
是由它进_步增殖、分
化形成的。
红细胞的生成过程
是:首先由造Ⅲ干细胞分化为原始红细胞’原始红细胞通过有丝分裂和细胞分化’经过
早幼红细胞`中幼红细胞`晚幼红细胞和网织红细胞阶段’最后发育为成熟红细胞。
发盲途径
时期‖
合成核糖体
干细胞
定向细胞
=
时期2
积累血红蛋臼
时期3
排出核
_
瘴_3(
|…·
造血干细胞(成血细胞)
原始红细胞
早幼红细胞
中幼红细胞
窑
◎
…
→
涕
…
扩
姐
哉
扩
夕
『
『
`
\
→
网
■
|
红细胞在分裂、成熟过程中’细胞的体积
由大逐渐变小’细胞核也逐渐浓缩’最后从网
织红细胞阶段开始消失。
Ⅲ小板的生成过程也是由造Ⅲ干细胞开
始’依次分化为原巨核细胞、幼巨核细胞`巨
核细胞’有些巨核细胞的细胞质被分隔成许多
小区’每个小区脱落下来以后’进人Ⅲ液循
环’成为Ⅲ小板。由于Ⅲ小板是巨核细胞脱落
下来的小块物质’所以也没有细胞核。
主要参考文献‖…………
●●●●●●
「1|董明宏.有关血液知识的—些疑问的解
答[J]生物学教学’2()13’2:6()—62
j范大学.普
[2]武汉大学’南京大学’北京师范大学
通动物学[M|北京高等教盲出
社’1983:477—478.
[3]姜乃澄’丁平动物学[M].2版.杭州:浙
大学出版社’20()9:l47.
2版.杭州:浙
●
●
版
江
●●●■●■●●●●●o●
●●●●●●●●●●●●●●●●●●●●●●●●●●●■●
●
●
0′′
、
′
`
仍
渺
℃
‖
″
‖
‖
』
■
■
可
旧
罗
’
]
=
`
Ⅷ
ˉ
隐
丫
~
心
`
~
爪
灿
帆
、
帆′
『
Ⅷ
′
′
|
=
△
飞
喳
、
Ⅷ
√
=≥
|‖□高中生物疑点通
■
p
■■■■■■■■■■■■■■■■■■~■■■■■■■■■→■■
■■■■≡■■■■■■■■■■■■■■■■■■==■≈=■0■■■■■■■■■■■■■
膜止的蛋臼质有侧Ⅲ能?
~
~~
~
■
』
月
口
』
~
~
"|田
■■■■■■■■■■■■≡■■■■■
■■■=0■■■■…~■■←■■■=】■■
■■■■=■■■■=■■=■■■■■■■■■■■■■■■===■
细胞质膜作为细胞系统的边界’无论是在控制物质进}‖、信息交流、细胞代谢还是
免疫方面都有着极其重要的作用。蛋白质在细胞质膜行使功能时起重要作用。那么,细
胞质膜上的蛋白质究竟有哪些功能呢?
细胞外
细胞内
凹
≥
\
`
.〉))
■
●
∏
』
问
巴
《/′
】
|
』
~
@
细胞表面受体
酶
运输
感樱唾
士
心
标
面
表
包
〗
田
诊
=
附着于细胞骨架
细胞间韩附
↑.运输功能—膜转运蛋白
膜转运蛋白分为载体蛋白和通道蛋
白两种°
载体蛋白是多次跨膜蛋白,能与特
定的溶质分子结合’通过自身构象的改
变来介导溶质分子跨膜转运’载体蛋
白分别在协助扩散和主动运输中发挥
作用。
●
●
●
●
●
田
●
●
●
●
●
@
G
|
载体蛋白
通道蛋白
0′2
■
●
砂
●
■
●
●
●
■
″′渺‖\`』M/灿′``、趣hu
』
0′′
=√
`』例|`M′′|
``
目前发现的通道蛋白有l00多种’可分为水通道蛋白和离子通
道蛋白两类。以离子通道蛋白为例’其特点有二:_是离子选择
性’只允许特定—种离子通过;二是门控性’在对特定刺激(如
电、压力`配体等)反应时才瞬间开放°
2·识别功能—受体蛋白
对于多细胞生物而言’细胞间的通信方式以分泌化学信号分
进行信息交流最为普遍。信号分子(配体)根据其溶解性可以分为
类:亲脂类信号分子(笛类激素和甲状腺激素’可穿越细胞膜)
亲水类信号分子(神经递质`生长因子`多数激素,不可穿越细胞
膜)。因此’用以识别这些信号分子的膜受体蛋白亦可相应分两类
细胞表面受体和细胞内受体(后者存在于细胞质或细胞核中)。受
多为糖蛋白,通过与配体的特异性结合’将胞外信号转变为胞内化
或物理信号’以启动_系列过程’最终表现为某种生物学效应。
子
两
和
质
体
学
津.受体蛋白
3.催化功能—酶
原核生物由于没有复杂的细胞器’因此许多功能都是由细胞
膜来承担的。在其细胞质膜上往往分布有各种代谢所需要的酶’
如参加电子传递与氧化磷酸化的酶系’可行使相当于真核细胞线
体的部分功能;而合成细胞壁成分的酶’可行使相当于真核细胞
尔基体的部分功能;细胞色素酶,磷脂及脂肪酸生物合成的酶’
行使相当于真核细胞内质网的部分功能;另有—些与核糖体共同
行合成分泌蛋白的酶’等等。可见膜蛋白赋予原核细胞质膜功能
的多样化是区别于真核细胞的—个显著的特征。
对于真核生物来说’由于内膜系统的复杂性’细胞质膜上酶
种类较原核细胞少。如钠钾ATP酶’可催化ATP的水解进而促进
质跨膜运输;腺昔酸环化酶’在蛋白质肋类激素及大多数氨基酸
生物类激素与细胞质膜上的特定受体结合之后’激活此酶的活性
促使细胞内的AIP转化为‘第二信使”环腺芹—磷酸(cAMP)
°
质
例
粒
I
△
『=丁
回
‖
|
可
执
上
汪.
`~
酶
≡
≡
的
物
衍
(徊
0′3
·
■
■
·
■
●
●
●
●
●
●
●
●
砂
●
■
白
●
●
●
●
●
●
■
●
但
●
●
●
感
●
●
■
〃`』′
〃v铡′``′
扒
|‖□高中生物疑点逾
4保护功能—糖蛋白
细胞质膜上的糖类’除少数与磷脂结合外’多数与
蛋白质结合形成糖蛋白°由于糖蛋白的高黍占度性’可以
成为细胞表层的润滑剂’防止蛋白水解酶的水解作用;
同时’也可以防止细菌`病毒的侵袭。因此’得名‘糖
被’’ 。事实上,糖蛋白的功能是多样化的’前面提及的
载体蛋白、受体蛋白往往也是糖蛋白。除此以外’_些
糖蛋白还是细胞Ⅲ型物质的基本成分、免疫识别的分子
基础。
|}||{|!}|
糖蛋白
5。连接功能
细胞质膜
膜通道
细胞质
紧密连
细胞间隙
紧密连接
锚定连接
通讯连接
通过_些特定膜蛋白’将相邻细胞的细胞质膜相互联系’协同作用’主要有三种方
式:—是紧密连接’通过排列成串的跨膜蛋白(如封闭蛋白)形成“焊接线’’
’使相邻
的细胞质膜紧紧靠在—起’没有间隙’以阻止可溶性物质甚至水分子沿细胞间隙进人体
内’起重要的封闭作用。如小肠上皮细胞之间的紧密连接可将体液和小肠内容物隔离
开。二是锚定连接’如桥粒蛋白在两个细胞间形成纽扣式的结构以将相邻细胞连在_
起’进而使细胞群体`组织和器官保持高度有序、坚挺。三是通讯连接’如动物细胞质
膜上的连接子(由6个跨膜蛋白环绕而成)’中心形成直径约为l.5nm的孔道’即细胞质
通道’可使相邻细胞之间的离子、核昔酸等小分子通过’从而实现通讯联系°
0′4
咖
`‖翅l〗
抓Ⅶ购′
■叮
哑
籍—橇分子与细瞩隆
6.运动功能—微筐蛋白
由微管蛋白构成的鞭毛和纤毛作为细胞表面的特化结
构’可使细胞运动’或通过促进细胞表面液体的流动’摄取
食物或清除细胞表面的异物。较长(l50~200|lm)且数目较
少者称鞭毛’较短(5~l0‖m)且数目较多者称纤毛。鞭毛和
纤毛主要存在于单细胞生物中’也存在于—些高等动物细胞
中’如人的呼吸道上皮细胞表面有纤毛。鞭毛和纤毛外围细
胞质膜的主体部分都是由微管形成的“9+2’’结构’即每根鞭
毛(或纤毛)都由中央的两根相互平行的完全微管和外围的9
个二联体微管组成°
′
~
]
」
■■●●白●●●●●●■●●●●●●●●●●●●●●●●●
|主要参考文献
●
[1]张万明.细胞膜蛋白及其功能[J].生物学教学,
20l1(11):69—70.
●
●
●
■
●
●
[2]杨京举’费中余膜蛋白与物质的转运[J].生物学
教学’2()15(10):63—64.
[3]何立松,杨京举话说糖蛋白[J]生物学教学’
2013(4):70—71.
●●●●●
●●●●■
■●●●●●●
二▲▲■■●●●●●●●●●■■●U●■≡
●
●
●●●●●●●●●●●●●●●●●●
0′5
●
●
●
●
●
●
●
■
●
●
扮
●
●
●
I
●
●
●
●
●
$
●
●
●
●
●
●
●
●
●
G
腑
、Ⅶ′
|〔山
叮
御
`赴
翅
灿
b
\
b
|‖□高中生物疑点通
■■■■■■■■■■■
】■●■0■■=■■■■≈■■■=■■
0■■■■■■■■■■■■=■■■■■
■■0
l■■■■=■■■■■■■■■■■■■■■■■■■■■■=■■■■
■■■■■■■■≡■■≡≡
胆圃醇任绷胞质膜巾有何作俐?
==■■■■■■=≈空==■■==■==≈≈■■■■■■=============■■=■■■■■■■→======■■■
■■■==■■■■
糖链ˉ
疏水尾部
胆固醇
胆固醇是动物细胞质膜特有的成分’对动物
细胞质膜的流动性起到了重要的调节作用°
_方面’胆固醇分子与磷脂分子相结合,限
制了磷脂分子的热运动;另—方面’又将磷脂分
子相隔开使其更易流动’其最终效应是上述两种
效应的综合结果。
在温度较高`磷脂分子运动较强时’胆固醇
可以降低膜的流动性;在温度较低、磷脂分子运
动较弱时’又可以提高膜的流动性’使细胞质膜
在很大温度范围内保持相对稳定的半流动状态。
}
●●●●●●●●●
|主要参考文献
●
●
[
]]尉青.胆固醇在细胞膜
中的作用[J].生物学通
报’2015(3):25—27.
[2|王冰胆同醇对生物膜流动性
的影响[J]广西医科大学学
报’1997(1):38_41.
●●●●●●■●●●●●●
≡二=▲●●●●●
‖
0 ■■■■■
●
●
●
●
●
■
●
●
G
G
GGGGGGGGGGG
0′6
●
●
●
●
●
●
●
●
●
●
●
●
●
●
母
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
◇
●
●
●
■
●
●
台
●
\
“∏
‖
′
〗
_
■
^
′
匿
\
■
抓
`
『
【
巴
`
『
『
γ
司
\
√
″
"
‖
∏
』
‖
灿
]
`
=
pˉ
第—篇分子与细胞
■=■======■=≈==…≈==…=~≡■=……≈≈===■≡===→■≡→==■==乙■=====】
胞间信息交流的万式有"‖些?
■===■=■=====■==■===≡==■==■======■=■→■=≈乙■==■■===≈=■■】
细胞通信最常见的有三大类:
(l )细胞通过分泌化学信号物质进行细胞间通信:这是多细胞生物普遍
采用的通信方式。
(2)细胞间接触依赖性通信(contactˉdependentsignaling):细胞间直接
接触’通过信号细胞跨膜信号分子(配体)与相邻靶细胞表面受体相互作用。
(3)动物相邻细胞间形成间隙连接(gapjunction)`植物细胞间通过胞
间连丝(plasmodesma)使细胞间相互沟通:通过交换小分子来实现代谢偶联
或电偶联’从而实现功能调控。
细胞间信息交流方式具体表现为以下五种情形(如下图所示)
:
内分泌细胞
D
了
分泌细胞
靶细胞
≡`
远程靶细胞
(b)
\
‖
/
刨
′
‖
`
(a)内分泌:
由内分泌腺产生的
激素,分泌进入血液循环’
作用于相应的靶器官。
(b)旁分泌:信号细胞分泌局
部化学介质释放到细胞外液
中,作用于邻近的靶细胞,
其作用距离只有几微米°
(C)神经元与靶细胞之间的化学
突触通信(突触结构电镜照
片来自人脑杏仁体°
)
突触间隙
神经递质
憾‖>. 〕////
、.〈/争′
′沁
′汾《渺
带户
}/;爹{窗{』〈蚤
‖虹|‖‖\
突触′」
突触前膜突触后膜
(C)
不同的细胞通信方式
0′7
●●●■●
●
●●●◆0
●●●●
●
●●●●●●0
●●●●■0
●
●
■
●
●
●
●
●
●
●
●
●
日
●
●
●
●
■
◆
●
●
●
●
●
●
●
■
●
●
●
亡
●
‖/v、M{L′′′
′|
『》
、山
刚
`
}
Ⅷ机
√、
\M『v`√
〃M∩D侧
叭
狮、d.
灿
′叼\
Ⅷ
|‖□高中生物疑点通
(d)自分泌:细胞对其自身分泌的
信号分子起反应。
(e)细胞间接触依赖性通信:信号
细胞质膜上结合蛋白(信号分
子)直接与相邻靶细胞的表面受
体相互作用。细胞间接触依赖
性的信号传递需妥细胞质膜与
细胞质膜之间彼此直接接触。
●
■
●
、
`
`
可
·
ˉ
·
/
赣
飞
●
~
~
+·
靶细胞
信号细胞
(d)
(e)
不同的细胞通信方式
细胞间的信息交流除以上模式外’还存在通过外泌体
进行细胞间信息交流的方式。
雨…″厂
■
《;;r郴
先仆
p
白
熊~
■
嚼
]
自,
o
外泌体是细胞分泌的40~l00nm级别的膜性小泡’在
20世纪80年代初就已经被发现’但其在细胞间所起到的信
息交流作用’直至最近才开始为人们所认识。外泌体可由
B细胞`T细胞、树突细胞`成纤维细胞`内皮细胞和肿
瘤细胞等多种细胞释放°正常生理状态下’Ⅲ液`尿液`
乳汁、羊水中都能分离出外泌体’其内含有蛋白质`核
酸`脂质等分子。由于外泌体具有囊泡结构’其进行细胞
间信息交流的方式与上述典型模式不同。外泌体参与细胞
间信息交流有三种主要方式’包括膜表面信号分子的直接
作用`膜融合时内容物的胞内调节以及生物活性成分的释
放调节。外泌体的发现使得细胞间的信息交流更加精细和
全面’外泌体的发现揭示了存在于机体自身的RNA胞间
转移途径’
由于具有安全有效的靶向运输能力’在基因治
疗领域有望成为理想的基因治疗载体。
\≡
‖
●●●●
主要参考文献
[l]金术超.有关细胞间
信息交流知识的拓
展[J|.生物学教学’
2()16(11):64—65.
[2|刘儒涛’王世伟’刘晶.细
胞间信息交流的新
载体:外泌体[J]生物
化学与生物物理进
展2013(8):719—727.
●
●
●
●
●
●
●
■
●
●
●
●
●
●
■
GGGGGGGGGI
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
0′『
●●
′
疵
勿
纠卯
、
~
吵`、
』
`Ⅶ』
↑、』MW`
ⅦⅣ
″
蝉
夕灿
■山=
丑=
第—篇分子与细胞
■■■■■■==■■■■■■■===■■■
■■■=■■■■…■■■■==■■■■=■■■==字■■■■■=■■■■■==■■■■■■■■■■■==■■■』■·
〗■■
"‖些?
□
百
=■===≡■■■■■■乙=→=■≈===■■■=■■===■■■=→======~→=■■==■==字≈乙≈■■■…=■====■■
血液运输的激素
…
…
^
驻
缀
嘘
屯
ˉ
…
々
…
=
神经递质
0
O
轴突
~醚…
内分泌腺
=
靶细胞
受体
臼
细胞外间隙
旁分泌
}
…`
』
■
铀
几种不同类型的化学信号
根据化学信号作用的对象不同’可将其分为
细胞间通信和细胞内通信信号分子。最主要的细
胞间通信信号分子有激素、神经递质、细胞生长
因子以及气体信号分子等四类°
0′9
o
O
●0●●
●●巴
●
,Ⅷ′`u/∏`、Mv》`′叫||Ⅷ″|`u/「}`\Mw√`
′『‖划′`‘』/『|``l′γ`/[``
b
…彦
|‖□高中生物疑点通
■
~厂
—细胞质膜
七学信号
=
接收
匙
田胞间液
答
▲
转录激活因子
细胞质
核膜弓
细胞
0‖∧
化学信号发挥作用的过程举例_调控基因表达
↑。激素
激素是生物体产生的对靶细胞具有特殊刺激作用的微量物质’其对代谢过程或生理
过程起调控作用°激素与靶细胞特异受体的结合和转换`激素的失活和排除以及各种激
素之间的相互协调作用`拈抗作用等构成了复杂而精致的激素系统’从而对细胞组织生
长`分化`繁殖以及生物体各种生理过程的“恒稳定’,和生理周期现象’甚至对情绪行
为都起着准确而有效的调控作用。
2。神经递质
神经递质是神经元之间或神经元与效应器之间传递信息的化学物质°在神经系统
中’神经细胞与其靶细胞之间形成突触结构’神经细胞产生的神经递质在突触前膜释放
并作用于突触后膜上的受体。
神经递质的种类有:胆碱类’如乙酷胆碱;氨基酸类’如γ-氨基丁酸`甘氨酸`天
冬氨酸、谷氨酸;单胺类’如去甲肾上腺素`多巴胺`5—轻色胺°近年来’发现的众多
神经肤也具有神经递质的许多特征°
020
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
伯
◆
●
●
●
●
份
怂
司
▲
●
●
l
′l
」「「|`、
Ⅷ``、
M\`
蚀
第-篇分子与细胞
″′′M「``、
ˉ
`—′′`o/「``、″`/`
3。生长因子和细胞因子
常见的生长因子有表皮生长因子`成纤维细胞生
长因子`神经生长因子等’大多是分子质量不大的可溶
性多肤’因而也叫作多肤生长因子°生长因子来自不同
种类的细胞’通过旁分泌`
自分泌和内分泌等途径’对
靶细胞的增殖`运动`收缩`分化和组织的改造起调控
作用。有些生长因子作用于多种类型的细胞’有些则只
对特异的靶细胞起作用°生长因子通过与靶细胞卜牛长
因子受体的特异性结合而发挥作用。
机体的免疫细胞和部分非免疫细胞能合成和分泌
小分子的多肤类因子’它们调节多种细胞生理功能’
这些因子统称为细胞因子。细胞因子包括淋巴细胞产
生的淋巴因子和单核巨噬细胞产生的单核因子等。
目
前已知白细胞介素`干扰素`肿瘤坏死因子`转化生
长因子等均是免疫细胞产生的细胞因子’它们在免疫
系统中起着非常重要的调控作用’在异常情况下也会
导致病理反应。
4气体信号分子
内源性NO的发现开创了气体分子作为生物信息分
子的先例。此后’ CO和H2S也被认为是气体信号分子’
它们组成了体内不可缺少的气体信号分子调节体系’在
细胞信号转导中具有特殊的意义。
气体信号分子具有高度膜穿透性’极容易以自分泌
或旁分泌等方式传递信号,是机体稳态调节中最活跃的
_类物质°气体分子能够以多种途径与蛋白质相互作用
发挥生物学效应’包括与蛋白金属辅基共价结合’或与
蛋白质某些区域非共价结合以调节蛋白功能°
庄…耐.
~
~
~
G
|1|李江肃.多细胞生
?
物细胞间的通信
:
万式[J]生物学教
;
学’2()12(l):71—72.
|2]张小云,刘小玲’曾
8
美霞’等.气体分子
:
的信号转导作用研
;
究|J]生命科学研
:
究’2()()4(S1):80—83.
·
●G●●●●■●■●●
二■●●●●■
0■
尸
●
●
●
●
●
GGGGGGGGGG
02′
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
佰
白
●
●
●
GI
G
β●Q●
′》
乞
≯…
\
→
|‖□高中生物疑点通
∏
们
刮
□
■
■■=■=≡≡≡=■■■■■■…■■■=■■
‖■■
■■=■■■■=■■=→=■■=■■■=■■■■■
;心后绷胞器如侧分布?
珊
v=
【=
■
=■■■====中==■■===■■■■==■■■■=■■=』■■=…=≡~==■■
0■■=■=
用低渗匀浆`超声波破碎或研磨等方法可使细胞质
膜破损’形成细胞核`线粒体`叶绿体、内质网`高尔
基体`溶酶体等细胞器和细胞组分组成的混合匀浆,再
通过差速离心’即利用不同的离心速度所产生的不同离
心力’将各种质量和密度不同的亚细胞组分和各种颗粒
分开’分离结果见下图°
≡
2000g
20盯{∩
伊
÷
p
叮
■
‖
‖
●
■
■
□
心
户
…
…
°
妒
…
℃
·
…
…
·
·
●
·
●
■
●
…
◎
…
…
·
″
●
●
●
>
≤
℃
℃
●
铲
●
●
◆
■
●
·
●
·
α
●
·
·
=
●
●
·
●
◆
●
●
●
●
ˉ
|000g
|0们|∩
80000g
°…。· ·°
:
…
|50000g
|
』".
|
∩
:!;.:::蜕;
:·°:?:》·:.;
—·
·
p
·
··
厂
~
←
线粒体`溶酶体`
过氧化物酶体
核糖体`大分子复合物
或病毒
细胞匀浆
细胞核
微体`高尔基体`
囊泡
用差速离心法分离细胞匀浆中的各种细胞组分
图中显示’随着离心
(g)大小和离心时间不
’各种细胞组分沉淀在不
的离心管中。
力
●●●
)主要参考文献
同
同
[1]翟中和’王喜忠丁明孝
高等教育出版社’20l1.
细胞生物学[M]ˉ4版.北京
●
●
●
●
●
●
●
●
■
■
●
●
●
●
●
●
●
■
●
●
●
●
■
●
●
●
●
●
●
●
●
●
$
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
但2
●
●
●
●
●
●
β
●
β
e
′硼′
卜、则
′`d′v慰砒Ⅷ
‖
函
第—篇分子与细胞
〗
内质网根据其上是否附有
核糖体’可分为光面(滑面)
和粗面(糙面)内质网°粗面
内质网是核糖体与内质网共同
组成的复合机能结构。所以’
粗面内质网的功能是合成`加
工并转运蛋白质。
核糖体
囊泡
体
糖
核
~
\
\
∧
‖
∩
●
●
|ˉ多肋_边在核糖体上合
成’—边进入内质网并进
行加工’通常会被加上—
个或多个糖基团(图中红
点所示)
^
巴二
●
迅
〃
2蛋白质
入到高尔
通过小泡排出内质网,进
基体的‖|页面膜囊
3ˉ蛋曰质进入高尔基体并进行加工
4蛋白质诵过囊泡离开高尔基体,
移动到细胞质膜
细胞质膜
5ˉ蛋白质从细胞分泌
023
|‖□高中生物疑点通
在粗面内质网上合成的蛋白质主要有三类:
(
‖ )分泌蛋白即在细胞内合成后’分泌到细胞外起
作用的蛋白质’如胰腺细胞分泌的酶’浆细胞分泌的抗体’
内分泌腺分泌的多肤类激素等。这类蛋白质合成后经过加
工,通过胞吐作用输送到细胞外。
(2)生物膜蛋白包括细胞质膜上的膜蛋白和内质
网、高尔基体`溶酶体膜上的膜蛋白等。这些膜蛋白在内质
网上合成时就已经确定了其方向性’并在以后的转运过程中
能有目的地定向运输。
(3)部分细胞器中的可溶性驻留蛋白这些蛋白
质需要与其他细胞组分严格隔离’如溶酶体蛋白与植物液泡
中的酸性水解酶类’在合成后进人内质网’能与其他细胞组
分进—步区分’也有利于对它们的加工和合成。
≡
■
|=文献`………………
{
[l|陆忠华内渍网的蛋门渍合成功能[J{生』
学’2()16(2):75.
●
●
:
:
[2]吴涛胀耀洲.内质网膜上的转运使者—
●
相关蛋白(TRAP)[J].中国生物化学与分子
报’2008(2):95—100·
Q
物
].中国生物化学与分子生
●●◆●●●●●●
学教
●
易位子
物学
●
●
●
●●●●●●●●●●●●●●●●●●●●●●●●●■■■叮■●●●●●■●●●●■●■●●●●●●●●●●●■●●
●
●
归4
●
■
●
●
●
●
■
●
■
●
●
●
蛔′′′
■
_
0
■
‖
微管
细胞板
|
‖
久
盟
芭
操蝇
``
《P醚
溯
■
呵
酗
b ■空■
蹦
■
Ⅺ
翻.
刮
葡
b"
"
;
【
可
嚼
些
』
hq
F(
嗡
翱獭
呼p
5
ll川
由
蹦
搬
■■■■■■■■
瓤"幽旷γ酗…
擞
R,
赣
胞
细
质
z
鳃
攫
划
嗡闸
慰h沁
丁叮
胞质
细
干
嘲
初生壁
次生壁
细胞膜
膜
吧
槛热簿
熟
~
′
d25
O
●●●
■
田●
●●●
◆●●
■
■■
]
|‖□高中生物疑点通
纤维素微纤丝(灰色棒状所示)在细胞表面合成后’被半纤维素(蓝线和紫线所示)
包覆’并通过后者和其他微纤丝相互连接。果胶(红线`黄线和绿线所示)紧密结合形成
基质’控制着微纤丝之间的间距和细胞壁孔隙。果胶和半纤维素在高尔基体中合成后’
由襄泡运至细胞质膜并与之融合’从而将这些多聚体释放到细胞外的细胞壁处。为了便于
观察’在初生壁卞要结构组分利可能排列方式示意图中’左边仅显示了半纤维素ˉ纤维素
形成的网络结构’右边主要是果胶网络。
′
纤维素
ˉ—ˉ一ˉ
鳃幽…驾
主要的半纤维素
木葡聚糖
=一-~_一
阿拉伯糖基木聚糖一_~—一
主要的果胶结构
聚鼠李糖半享[糖醛酸I卢≥≥===卢卢
同聚半乳糖醛酸一~~-≡=
木聚糖半乳糖醛酸聚糖′=≥v~`~^≥丫=
阿拉伯聚糖—-=
聚鼠李糖半旱赡凹题麦II
-
硼酸酷键
●
初生壁主要结构组分和可能排列方式示意图
半纤维素(hemicellulose):结合在纤维素表面的—层富有弹性的多糖。它们将不
同的纤维素微纤丝交联起来’形成相互粘连的网状结构’或者在微纤丝的表面形成_个
光滑的外壳阻止微纤丝之间直接接触。这些分子也被称为交联多糖’半纤维素包括几种
不同的多糖。
果胶(pectin):填充于纤维素ˉ半纤维素网状结构中的水合凝胶物质。作为纤维素
网络的亲水填充物’果胶可以防止这种纤维素网络结构的凝集和解体’果胶也决定了细
胞壁对大分子物质的通透性。和半纤维素_样’果胶也含有几种不同的多糖。
∩窒…"
[1]THizL’ZeigerE植物生理学[M]
等译4版北京:科学出版社’20()9
宋纯鹏,王学路
026
灿广√′`q」′ 》Ⅶ`沁坚′
■
第
篇分子与细胞
′灿7`″叮
=p
酶体是怎样一种绷胞器?
F
溶酶体
~
-
居
~
~
≈
″
飞≡
k甄三
彝
纪
夕
<≥
`
乏
{
护
`
…久′
,
Ⅳ
闸
醋
L
$
瞳
在溶酶
内消化的物质
嗡
§獭:黑里
‖.溶酶体的发现
l949年’比利时布鲁塞尔细胞病理学院科学家deDuve将大鼠肝组织匀浆中
的各种细胞器进行分离’以期找出与糖代谢的酶有关的细胞器’根据实验结果
推测细胞中还存在_种新的细胞器。
l955年’ deDuve与Novlkof合作’首次用
电子显微镜观察到这种细胞器’它在l956年被定名为溶酶体°deDuve和他的同
事—电子显微镜专家克洛德和帕拉迪分享了l974年诺贝尔生理学或医学奖。
2.溶酶体的结构
溶酶体是_种由单层膜包被的襄状结构’且是_种动态结构°在不同类型
的细胞中’溶酶体的形态`大小不同。—般呈球形小泡’直径为025~0.8‖m’
内含多种酸性水解酶’可分解各种外源或内源的大分子物质。因此溶酶体被比
喻为细胞内的“酶仓库”
、
“消化系统”
°
027
」
|
孤
w)
扒`M吼′
饥\必/Ⅷ′`‘′
硒
山
|‖·高中生物疑点通
|
3。溶酶体的分类和形成
根据溶酶体完成其生理功能的不同阶段’可分为初级溶酶
体、次级溶酶体和残余体。
溶酶体的形成是_个相当复杂的过程。—般认为’溶酶体里
的酶是经粗面内质网上的核糖体合成后运输到高尔基体的’在此
合成后运输到高尔基体的’在此
经过加工、分拣与浓缩’被覆
外膜’形成襄泡’然后离开高尔
基复合体’此时只含水解酶而不
含被催化的底物’称为初级溶酶
体。初级溶酶体与细胞内的胞内
体、吞噬体和自噬体融合形成复
合物’溶酶体中的酸性水解酶发
挥作用’将胞内体和吞噬体等逐
步消化’此时的溶酶体不仅含有
水解酶’而且含有大量被催化的
底物’是—种正在进行消化作用
的溶酶体’被称为次级溶酶体。
次级溶酶体内的消化作用完成
后’酶的活力变得很弱甚至丧
失’仅留有未消化的残渣,称为
残余体。
蘸「_h
h▲~
●
●Q守
7
■
●
■
●
‖
受损的线粒体
溶酶体
粒体
细胞外
』
4溶酶体中的酶
(
↑)种类
目前已发现溶酶体中的酸性水解酶有60余种’包括水解蛋白
质、糖类、脂类等物质的酶。例如’酸性磷酸酪酶`组织蛋白
酶`核糖核酸酶`透明质酸酶`磷酸转移酶`β—半乳糖昔酶`芳
香基硫酸酷酶A和B等。大多数溶酶体里的酶是糖蛋白’但也有
例外’如鼠肝细胞和肾细胞溶酶体里的酶大部分是脂蛋白。
但g
●
~~
●
′′ 』′′`M7\|′`|′′γ′『′``帜√`…
.
′』′氏`M"`
£…雷鳃腮■
(2)来源
溶酶体中的酶与分泌蛋白的形成类似’都是由附着在内质网
上的核糖体合成不成熟的酶’然后在信号肤的引导下进人粗面内
质网,经初步加工连接—些糖基团,如葡萄糖`甘露糖和/V≡乙酷
葡萄糖胺等’内质网通过形成囊泡将这些较成熟的酶转运至高尔
基体’经高尔基体的再加工’如将IV≡乙酚葡萄糖胺残基移接到甘
露糖残基上等’形成成熟的酶。
(3)特点
溶酶体的膜蛋白多为糖蛋白’溶酶体膜内表面带负电荷’所
以有助于溶酶体中的酶保持游离状态’这对行使正常功能和防止
自身被消化有着重要意义。
所有水解酶在pH为5左右时活性最佳’但其周围胞质的pH约为
7.2,溶酶体膜上含有_种特殊的转运蛋白,可以利用ATP水解的
能量将细胞质中的H泵人溶酶体,以维持pH为5。
只有当被水解的物质进人溶酶体内时’溶酶体内的酶类才行使
其分解作用°_旦溶酶体膜破损’水解酶逸出,将导致细胞自溶。
@|
胞外
胞内
8:8
l内吞作用
\°财内吞
|
●
●
●
早期胞内体
:.
●
尸2吞噬作用
′3启噬作用
线粒体
●
\二二出
泡
/
′
/霉噬
厂霉
泡
=
\
\
『
■
初级溶酶体
|
内质网
/蹿…Ⅷ
●
●
●
●
●
●
●
●
●
●
●
晚期胞内体
●
=
蕊
n
`
【
■
●●
■
司
初级溶酶体
/
′
次级溶酶体
029
●
●
■α●●
●●●■
●
●●●●
■
■
●
●
|‖□高中生物疑点通
5.溶酶体的功能
(
|)细胞内消化
对高等动物而言’细胞的营养物质主要来源于Ⅲ液中的小分子物质’而—些大分子
物质则通过胞吞作用进人细胞,例如内吞低密度脂蛋白获得胆固醇;对_些单细胞真核
生物而言’溶酶体的消化作用就更为重要。例如’草履虫将吞噬进细胞的食物或致病菌
等大颗粒物质消化’其中可利用的营养物质进人细胞质基质用于各项代谢活动’残渣通
过胞吐作用排出。
(2)自溶作用(细胞凋亡)
通过自溶作用清除发育过程中退化的细胞和死亡的细胞’以保证细胞正常生长和发
育°个体发生过程中往往涉及组织或器官的改造或重建’如昆虫和蛙类的变态发育过程
中足的退化和尾的消失等’这—过程是在基因控制下实现的’称为细胞编程性死亡(即
细胞凋亡)’这些注定要消除的细胞以出芽的形式形成凋亡小体’被巨噬细胞吞噬并通
过溶酶体消化。
(3)自体吞噬
清除细胞中无用的大分子`衰老的细胞器等。许多生物大分子的半衰期只有几小时
至几天’例如,肝细胞中线粒体的平均寿命为l0d左右’这就需要溶酶体将其吞噬消化。
(4)防御作用
所有白细胞均含有溶酶体性质的颗粒’能消灭人侵的微生物’如吞噬细胞可吞人病
原体’在溶酶体中将病原体进行处理`杀死或降解°然而’也有_些病源菌(例如’麻
风杆菌结核杆菌等)能耐受溶酶体酶的作甩因而能在巨噬细胞内存活。
(5)参与分泌过程的调节
研究发现’大鼠脑垂体分泌催乳素受到抑制时’溶酶体与细胞内—部分分泌颗粒融
合’将其消化降解以消除细胞内过多的激素’这种现象叫作粒溶或分泌自噬。几乎所有
分泌肤类和蛋白质类激素的细胞中都存在粒溶现象’细胞通过这种方式’对激素的分泌
量进行有效的调节’如将甲状腺球蛋白处理成有活性的甲状腺素等。
(6)形成精子的顶体
精子的顶体’其本质也是—种溶酶体。在受精过程中’顶体中的酶被释放到细胞
外’能消化卵子外周的卵泡细胞和透明带’形成精子人卵的通道’便于精子进人卵细
胞’达到受精的目的。
030
、
′
卜^
′她\灿爪"
′\Ⅸv之:、
′′`
‖Ⅷ吓l 』″
蟹
第—篇分子与细胞
饥}趴
`
6.溶酶体异窜病
(
↑)硅肺
二氧化硅尘粒(硅尘)吸人肺泡后被巨噬细胞吞噬’含有硅尘
的吞噬小体与溶酶体融合成为次级溶酶体。二氧化硅与溶酶体膜的
磷脂或蛋白质形成氢键’导致巨噬细胞的溶酶体崩解’细胞本身也
被破坏’硅尘释出’后又被其他巨噬细胞吞噬’如此反复进行。受
损或已被破坏的巨噬细胞释放“致纤维化因子”’并激活成纤维细
胞’导致胶原纤维沉积’肺组织纤维化°
(2)肺结核
结核杆菌不产生内、外毒素’也无荚膜和侵袭性酶。但菌体成
分中有硫酸脑昔脂’能抵抗胞内溶酶体的杀伤作用’使结核杆菌在
肺泡内大量繁殖’导致巨噬细胞裂解,释放出的结核杆菌再被吞噬
而重复上述过程’最终引起肺组织钙化和纤维化。
(3)溶酶体贮积症
因溶酶体内的酶活性不足(主要是酸性水解酶)’以及转运蛋
白或溶酶体蛋白加工校正酶的缺乏会引起溶酶体功能缺陷’造成次
级溶酶体内相应底物不能被消化’导致底物积蓄代谢障碍,形成
贮积性疾病’称为溶酶体贮积症°溶酶体贮积症不仅影响机体某个
器官的正常功能’也会影‖问整个机体代谢活动的协调性’
弓|起多种
疾病°
目前已知此类疾病有40种以上’大致可分为糖原累积病`脑
昔脂沉积病`台-萨氏综合征和黍占多糖沉积病等几大类°
可
|
|
」
GGGGGGGG
GGGGGGGGGIGGGGGGGGGGGGGNGGGIGGGGG
主要参考文献
[1]岳仓锁’王永生漫话溶酶体[J].生物学教学’2()12’5:64—65
[2|王守民.漫话溶酶体|J|生物学教学’2()16’10:70_71
[3]王海杰谭玉珍溶酶体途径在细胞自噬过程中的功能意义[J]
生命科学2011,8:723—729.
[4]赵凯’卫涛涛溶酶体与细胞凋亡[J]生命科学’201l’1]
1()68
|
l ()63—
~~~
●
仔
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
●
03′
I
、
~
仆
Ⅱ
~
~
~
~
~
′
喻
〃
_
℃
‖
帜
■
■
↓
Ⅱ
●
′
血
′
Ⅳ
、
′
)
′
、
‖
′
`
』
Ⅷ
′
Ⅳ
℃
/
″
业
`
例
厂
Ⅶ
刃
′
…
』
『
』
|‖口高中生物疑点通
==】
■■】
2|仅
狮国‖||‖刨卯〖
『
‖
■
■
■
■
尸
』
■
】
■
液泡是由单层膜与其内的细胞液
组成的。主要存在于植物细胞中°在
根尖`茎尖等处的幼嫩细胞中呈球
形’数量较多。细胞成熟过程中’
由
多个小液泡融合成大液泡。故在成熟
的植物细胞中具有中央大液泡。
动物细胞中也含有液泡’但是通
常情况下不明显。
·
○
日
∑
削
□
|
贮藏液泡
酵母菌也有液泡’液泡由单位膜
分隔’其形态、大小随细胞年龄和生
理状态而变化’_般幼龄细胞的液泡
很小’而在老龄细胞的中央有—个非
常典型的大液泡’颜色较浅’所以酵
母菌中部呈现白色°
个子细胞
=●▲=■
已
「司
线粒体
粒
■■●●■
个问题[J]
酵母菌结构示意图
■■■■■●●●●●●●●●●●●●■●■●●●■●■●■●●■●●■●●●●●●●●
032
0
●
∩′沁′
砌
蟹
第—篇分子与细胞
′′p
`
盯`′
■
F
■■■■=■■■■■■■■■■■■■■■■■■■■■
■■■=■■·■■■■■■=■■■■■■■■■■■■■■■■■■■■■■
G■■■■=■■■■■==■■≡■■■■■■■■■■■■≡■■■■
■■■■■■■■■■=■■
臼台威§0分泌需要内质网与高尔基体参与鹏?
《隘
■
一
一
■■■■■■■≡=■■■==■===■■h
■■■■■■■≈■~■■=■■===…■■≡■■==→■■=■■■■=■■■■■■■■■■■■=■■■=■■■=■■■■■■■■==■■=
附看核糖体
游离核糖体
~ ~~
~
~
~
细胞质基质
细胞质基质
『
蛋臼质
●■Q
∏
司
司
‖
当
■
□
』
\
内质网腔
核糖体在细胞质基质中完成初始翻译。
有些核糖体附着到内质网上,新合成的多肤通过
共翻译转运途径穿过内质网膜。膜结合核糖体合成的
蛋白质经内质网`高尔基体进行转运’运输的目的地
包括内质网`高尔基体`溶酶体`细胞膜和细胞外基
质等(膜整合蛋白在合成时插人到内质网膜中’而不
是释放到内质网腔)
°
@
033
●
Ⅱ帐Ⅷ
′
…
爪
川
丽
|‖·高中生物疑点通
川
′
大
‖
‖
0
↓
溶酶体
细胞膜
线粒体
~_一/叶绿体
定位在线粒体、叶绿体`细胞核`细胞质基质、过氧化物酶
体的蛋白质在游离核糖体上合成。合成后的多肤被释放到细胞质
基质中’有的就保留在其中’有的通过翻译后转运途径被转运到
特定的细胞器。进人到细胞核的蛋白质通过核孔运输’与定位到
其他翻译后转运的细胞器蛋白的运输机制不同。
‖主霉…`=
|川Hm………
■
●
WorldoftheCell[M]
●
●
■
Cummings,2011.
●
●
●●●●●●●●●●●●●●●●●●●●●
●
nsmithLJ.Becker’s
.8thedBenjamln
●●■●●●■●●●●●●●●●■●●●●●●●●●●■●●●●●●●●●●●●●●●●●●■●●●●●●
●
034
郁
趴Ⅷ′′拖∩``M′′`√肌
、』
Ⅶ
`
|爬|
`
‘『`
…″划
寥
第—篇分子与细‖目
■
尸
■■■■■
=
■■■■==■■=■■■■■■■■■■===■■■■■=■■■■■■■■■■■■■■
■■=■■■■■■■■■■
维素是任高尔基体台成的隅?
=■■■■■■■■■■=■■■■■==→■■■==≡】■■
·■■■■■■■■■■■乙■=≈■■■=■■■■…===■■■■
很多教辅书籍把纤维素的合成部位说成是高尔基体’这或许是源于对“细胞壁的形
成与高尔基体有关”这句话的误解。事实上’高尔基体合成的是构成细胞壁的非纤维素
多糖(如果胶、半纤维素等)’纤维素则是在细胞膜上合成的。
在细胞膜上分布有纤
维素合酶复合体’它能
利用尿昔二磷酸—葡萄糖
(UDP-G)’催化β(l→4)
糖昔键的形成,这样’纤
维素糖链就像头发_样从
细胞膜外表面“长’’
出
来’参与细胞壁结构的形
成(见左图)
。
果糖
蔗糖
(葡萄糖-果糖)
细胞质
!室要…
[1]TMzL’ZeigerEPlant
Sunderland:SmauerAss
Physiology[M]. 5thed
ocjates. Inc。,2()1().
035
′
喻
Ⅵ
ˉ
吵
℃
狐
灿
叮
Ⅷ
〃
儿
√
′
℃
‖
娜
『
』
=
′
′
、
广
\
′
`
`
′
灿
叮
|‖□高中生物疑点通
===■==■==≡=≡=■■==■■===============…■■■≈=二===■=■==】
‖些糊质可酞遮过核孔运输?
…=■乙==■…ˉ=======■≡■===================■==■==■■=■■】
不带电荷`分子质量小于l00Da的分子’包括水’可以通过磷脂
双分子层自由扩散进出细胞核’但是其他所有的要穿过核膜运输的
分子和大分子,都要通过核孔复合体。通过核孔复合体的过程被称
为转运。
下图表明’多种不同类型的分子可通过核孔复合体人核或出核。
细胞质
蛋白质穿梭
○
离子
○
可通过核孔出入细胞核的物质
●●●
主要参考文献
可见’核孔并非只是大分子进出细胞核的通道。
[1]卢因.B’卡西梅里斯。L’林加
帕.V,R’等细胞
利,连慕兰’等译北京
版社,2009.
[M].桑建
科学家出
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
■
036
′′ |_尸′她′``MW`
」′′`、
—
/|\
′
′
、
~
h
…
b
~
~~
~
~
~
~
~
~
~
~
∩
巳
朋||历
尸
′
纤维
中央栓
胞质环
外核膜
内核膜}核徽,
腔内亚单位
柱状亚单位
核质环
核孔复合体示意图
l949~1950年间’H.G.Callan与S.GTOmlin在用透射电子显微镜观
察两栖类卵母细胞的核被膜时发现了核孔。随后人们逐渐认识到核孔并
不是一个简单的孔洞’而是_个相对独立的复杂结构。l959年’ML
Watson将这种结构命名为核孔复合体。
迄今已知的所有真核细胞从酵母到人’其间期细胞核普遍存在核
孔复合体。核孔复合体在核膜上的数量、分布密度与分布形式随细胞类
型、细胞核的功能状态的不同而有很大的差异°
_般来说’转录功能活跃的细胞’其核孔复合体数量较多。_个典
型的哺乳动物细胞核被膜上的核孔复合体总数为3000~4000个。
从功能上讲’核孔复合体可以说是—种特殊的跨膜运输蛋白复合
体’并且是_个双功能、双向性的亲水性核质交换通道°双功能表现在
它有两种运输方式:被动扩散与主动运输。双向性表现在既介导蛋白质
的人核转运,又介导RNA`核糖核蛋白颗粒(RNP)的出核转运。
037
●
`
‰『`
′
(`
刚严
…
|‖■高中生物疑点通
|
被动扩散
协助扩散
信号介导的核输入
信号介导的核输出
●
●●
●
●
』′●
●
●胞质侧
胞质侧●↓
胞质
●↓↑
核被霹’●;…核
核被
=
霹乒…
`▲/.
核质侧
↓↑
●(`
●
质
被
质
胞
核
核
示意图
●
▲
‖
|
‖
〔
寸
●
G
M<~5×|04
M>~5×|04
中央栓(转运体)
●
●
慈
/
●核输入物
〔核输入受体/载体
●核输出物
《核输出受体/载体
●核孔作用蛋臼
说明
4℃时被抑制
不需要提供能量
需要与‖p0相互作用
无明显大小限制
》需要核定位信号序歹‖」
尸需要核输出信号序列
》需要核定位信号序歹|」
p需要核输出信号序列
受体/载体
受体/载体
∩在研究过的情况中,似●在研究过的情况中,似
乎不需要核昔酸水解
乎不需要核昔酸水解
任4℃时被抑制
●4℃时被抑制
仍4℃时不被抑制
》不需要提供能量
任最大转运物M为5×|0纠
仍
尸
》
》
特点
物质以多种方式通过核孔进出细胞核
‖.通过核孔复台体的被动扩散
核孔复合体作为被动扩散的亲水通道’其有效直径为9~l0nm’
有的可达l25nm’即离子`小分子以及直径在l0nm以下的物质原则上
可以自由通过。对于球形蛋白质,这种有效直径相当于允许相对分子质
呈在40×l03~60×l03的蛋白质分子自由穿过核孔。但实际上并不是所
有符合这个条件的蛋白质都可以随意出人细胞核°有许多小分子的蛋白
质’如组蛋白Hl’其相对分子质量只有2l×l0]’但由于它本身带有具
信号功能的氨基酸序列’所以是通过主动运输进人细胞核的;有的小分
子蛋白质本身虽然没有信号序列’但可以与其他有信号序列的成分结
合,_起被主动运输到核内。因此’核孔复合体的这种被动扩散通道并
不意味着所有l0nm以下的小分子在核被膜两侧就—定均匀分布。有些
小分子蛋白质可能会因为与其他大分子相结合’或与_些不溶性结构成
分(如中间丝、核基质等)结合而被限制在细胞质或细胞核内。
03J
蜜
第—篇分子与细‖目
|
2核孔复台体的主动运输
生物大分子的核质分配如亲核蛋白的核输人’RNA分子及核糖
核蛋白颗粒(RNP)的核输出’在细胞核功能活性的控制中起非常
重要的作用。对于真核细胞来说’典型的哺乳类细胞的核被膜上有
3000~4000个核孔。如果细胞正在合成DNA’为了确保染色质包
装’则需要每3分钟从细胞质向核内输人l06个组蛋白分子’这意味着
每个核孔每分钟要运进l00个组蛋白分子°如果细胞在迅速生长’则
需要每个核孔每分钟从细胞核向细胞质输出3对核糖体大小亚基以
确保蛋白质合成的需要。现在已知’这种大分子的核质分配主要是
通过核孔复合体的主动运输完成的’具有高度的选择性’并且是双
向的°
其主动运输的选择性表现在以下三个方面:
(l)对运输颗粒大小的限制。主动运输的功能直径比被动运输
大’为l0~20nm’甚至可达26nm’像核糖体亚基那样大的RNP也可
以通过核孔复合体从核内运输到细胞质中’表明核孔复合体的有效
直径的大小是可调节的。
(2)通过核孔复合体的主动运输是—个信号识别与载体介导的
过程’需要消耗ATP’并表现出饱和动力学特征。
(3)通过核孔复合体的主动运输具有双向性’即核输人与核输
出’它既能把复制、转录`染色体构建和核糖体亚单位组装等所需
要的各种因子如DNA聚合酶、RNA聚合酶`组蛋白`核糖体蛋白等
运输到核内;同时又能将翻译所需的RNA`组装好的核糖体亚单位
从核内运送到细胞质°有些蛋白质或RNA分子甚至两次或多次穿越
核孔复合体’如核糖体蛋白、snRNA等°
Z
{塞霉…睡………
●●●·●●●●■●●●●●●●●●●●●●●●●●●●●●●●●●●●●●■●●●●●●●●7●●
b
■
●
039
|‖□高中生物疑点通
■
·■■
■■==■=■■■=■■
■■=
n能?
======■=.=三==】
细胞核的组成成分极其复杂’除蛋白质与核酸之外’其他成分几乎都与蛋白质与核
酸有关’这些组分通过对蛋白质和核酸的修饰与去修饰’实现对基因表达的调控。
↑.细胞核内的氨墓酸及具功能
核内最常见的氨基酸为酷昔甲硫氨酸(SAM)’作为组蛋白与DNA甲基化的供体’在
不同的甲基转移酶的催化下’将甲基向目标分子转移。除了SAM作为甲基供体之外,氨基
酸不仅在细胞质中作为蛋白质合成的底物’而且在细胞核中还作为信号分子调控着许多基
因的表达。氨基酸既可在转录水平’又可在转录后水平上对某些基因的表达进行调控。
2细胞核内的葡萄糖及莫功能
葡萄糖作为主要的能源物质’在细胞
质基质中经过糖酵解生成丙酮酸’再进人
线粒体进行三竣酸循环和氧化磷酸化’实
现能量的逐级释放。糖代谢在核外进行’
但糖代谢的调控则受细胞核的控制’进人
细胞核内的葡萄糖与氨基酸—样’参与基
因表达的调控。从酵母菌到哺乳动物和植
物’葡萄糖都是生理、代谢`生长和基因
表达的重要的调控因子°
录
转
平
水
础
基
》
∑
ˉ
丙
=
↓
呻
…
“
倔
…
+
…
+
因
基
纵
_
舔
操
占
…
位
尸
∧
·
}日渴物]|acZ
不转录
+
~
高水平转录
+
~
基因表达调控一例
3.细胞核内具他重要物质及具功能
(
|)乙酚辅酶∧
作为组蛋白乙酷化的供体’在组蛋白乙酷转移酶的催化下’乙酷辅酶A中的乙酷基
转移到组蛋白的赖氨酸残基上。组蛋白乙酷化/去乙酷化可通过改变染色质周围电荷或参
040
仰巡例、′
≡
划歹`〃l p
第—篇分子与细胞
″
`l)
与染色质构型重建而影响基因表达,更重要的是组蛋白乙酷化/去乙酚化可形成_种特殊
的“密码’’ ’被其他蛋白质识别’影响多种蛋白质因子的活动或与其相互作用’参与到
基因表达调控的整个网络中。
(2)Ca2+
游离的Ca2+是细胞内重要的第二信使’参与许多重要生命活动的调节°也可作为细
胞核内的信号参与DNA复制修复、基因转录`核蛋白磷酸化和细胞凋亡等过程的调节。
因此’核内Ca2+跨核膜的转运及核钙稳态的精密调节’对细胞功能的维持具有重要意
义°Ca2+并非被动自由地进出细胞核,而是通过细胞核上的调节系统主动调节。核Ca2调
节系统由Ca2余的转运、结合和释放等部分组成,它包括核被膜上的Ca2+ˉATPase`
IP3、IP4
和cADPR开启的钙通道。
(3)激素与其他信号分子
部分激素或信号分子的受体并不分布在细胞膜上’而是位于细胞核中’被称为核受
体。核受体是由_大类配体激活的转录因子超家族成员组成的’它们与靶基因上相关的
应答元件结合从而调节基因转录’对细胞发育`分化和生理功能起着重要的调节作用°
进人到核内与这些受体结合的激素与信号分子主要包括雄激素`雌激素、孕激素、糖皮
质激素、盐皮质激素`维生素D`甲状腺激素、视黄酸等。
(4)∧丁尸
ATP除了为细胞核内的反应供能以及作为合成RNA的原料之外’还可作为组蛋白磷
酸化的磷酸基团供体。组蛋白磷酸化在有丝分裂`细胞死亡、DNA损伤修复、DNA复制
和重组过程中发挥着直接的作用。例
如,组蛋白H3的N端的磷酸化可能促
进染色质在有丝分裂期间的凝集;
组蛋白Hl的磷酸化能够影响DNA二
级结构的改变和染色体凝集状态的
改变’另—方面’组蛋白Hl的磷酸
化需要DNA的复制’并且激活DNA
复制的蛋白激酶也促进组蛋白H1的
磷酸化°因此’组蛋白H1磷酸化与
DNA的复制存在协同发生机制。
/奎=献`…………………
[1]钱敏艳.细胞核内的—些重要物质及其功能[J]生
物学教学’2()16(1):67_68.
[2]翟中和’王喜忠’丁明孝.细胞生物学[M]3版北京:
高等教育出版社,2()07:313—315.
:
!
[3]李想张飞雄组蛋白甲基化的研究进展[J]遗
传’2004’26(2):244—248.
:
[4]刘健王培勇核内钙浓度的调节[J].国外医学:生
●
理、病理科学与临床分册,2()()()’20(2):226—228
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
》
●
●
“′
内
削
●
●
#
肋
●
G
$●
●
●
|
|
切
『
仰`|′′
′
′翱′吻√
|‖□高中生物疑点通
■
■■■■■■■■■■
■■
■
■■■■■■
~
■■
■■■
■■■■■■=
■■
■■
0■■■■■■=■■■
■■■■■■~==■■■■■■■■■■=
■■■■■■■→■■■■■■■■乙=■■■■■■■
分离?
糊能服收臆糖沟什么还能佣臆糖观察质
■■■■
■■■■=■■→■二=■■■■
■■
■■】■
■■■■■■
===■■=■■■■■■■■
…=≡≡■■■■
■】■
■■
0■【
■■■■≈■■■■■■■■■■
】■0=□■0
■■■■=■■
■■■■
■■■
F
(
Ⅱ
`
扫
■
■
丁
『
{
赠
`
`
儿
电
二
<厂
≥
胞
腮≈N
…
`
宪
=君
~
植物的吸水与失水
—些师生以果脯`糖醋蒜为例’认
为蔗糖不能被植物细胞吸收。其实蔗糖
分子是可以进人植物细胞的’只是在质
壁分离的实验中蔗糖浓度很高(质量分
数为30%的蔗糖溶液)’使细胞内大量
水分流出细胞;而在短时间内细胞吸收
蔗糖的量又很少’由此才出现质壁分离
现象。
紫色洋葱夕卜表皮细胞质壁分离显微照片
主要参考文献
[1]孙甫芳对高中生物学教学中几个知识
点的分析[J].生物学教学’2014(2):1()7
●●●●●●●●●●●·●●●●●●●●●●●●●●●●●●●●●●●●●●●■●●●●●■●●●●
●
042
`幽√酗′孤``
′
p
第—篇分子与细胞
=■
■■
■■
片能阳于观察质壁分离的实验‖马?
藻‖‖
■】■■■
佐
(2014’新课标理综卷)
}
下列关于植物细胞质壁|}
分离实验的叙述’错误的是{
(
)
°
A与白色花瓣相比’
|
采用红色花瓣有利于实验现}
象的观察
B用黑藻叶片进行实; |
验时’叶绿体的存在会干扰
实验现象的观察
C用紫色洋葱鳞片叶!
外表皮不同部位观察到的质}
壁分离程度可能不同
D.
紫色洋葱鳞片叶外|
表皮细胞的液泡中有色素’
}
有利于实验现象的观察
|
|
叶绿体的存在会干扰质壁分离的观察吗?下图
是利用黑藻作为实验材料进行质壁分离实验的显微
照片。
[答案]B
~~~~~~~~~~~~~~~~~~~~~~~~~ ~ ~ ~~~ ~ ~~~~~~~~~~~ ~~~~~~~~~~~
黑藻叶肉细胞质壁分离显微照片
可见’黑藻叶片的叶肉细胞叶绿体的存在使原生
质层呈绿色’有利于实验现象的观察。
043
狮
|‖·高中生物疑点通
b
』
吗
0
邪唾‖三
|旧于∏向腊
Llˉi
『→
=
=
种于萌发过程示意图
爪
第—阶段
第二阶段
种子的吸水可分为三个阶段(如左图
所示)’即急剧吸水`吸水停止和胚根长
出后重新迅速吸水。第_阶段的吸水主要
是物理吸水’即吸胀作用;第二阶段是吸
水的暂停阶段;而第三阶段重新大量吸水
是由于胚的迅速长大和细胞体积的增加’
属于渗透吸水°
坯
兽
尔
备
一一一一一一一
厂
~
~
时间
→
种子萌发过程中水分吸收变化曲线
●●●●●●■●●●●●●●●●●
|主要参考文献卜
.…………………………
[1]祝丽环黄捍种子萌发过程中的生理变化[J]生物学教学’2
[2]高信曾植物学[M]2版ˉ北京:高等教育出版社’1987:14—16
[3]潘瑞炽董愚得植物生理学[M]2版北京:高等教盲出版社,
『等教盲出版社,
011(4):65—66
0
●
●
·
1()84:47—52.
:
●
●●●●●●●■●●●●●●●●●凸●●●●●●●·●●●●●■●■●●■●●●■●●●=●●●●●■●●●●■●●●●●●G●●●●●●●■
●G●●●●●●
0“
■
巡′\′
〃Ⅶ
划Ⅱhl′`№叹〃
■
篇分子与细胞
翅′l``划」}
须`
「
山
▲
乙p
=
一
需
田
=
砸
一
芒
可」|匹腑Ⅱ湍肾出||p|情
人教版高中生物学教材提到: “Na+、K和Ca2+等离子’都不能自由地通过磷脂双分子
层’它们从低浓度_侧运输到高浓度_侧’需要载体蛋白的协助’同时还需要消耗细胞
内化学反应所释放的能量’这种方式叫作主动运输。
’’
光能
〃
●
●
电化学梯度
脂双层
■
~
~
旧
光驱动泵
协同转运蛋臼
∧『p驱动泵
根据能量的来源不同’将主动运输分为三种:
(
|)ATP驱动泵
直接利用ATP水解提供能量’实现离子或小分子逆浓度梯
度的跨膜运输。如人的红细胞内是高K十低Na十’而细胞外环境
是低K+高Na带’这是离子逆浓度梯度利用ATP直接释放能呈推
动的_种典型的主动运输结果°
(2)协同转运
—类靠间接提供能量完成的主动运输方式’物质跨膜运输
所需要的能量直接来自膜两侧离子的电化学梯度。根据物质运
输方向与离子沿浓度梯度的转移方向’分为同向转运和反向转
运°如小肠上皮细胞含有钠离子驱动的同向运输蛋白’可以将
一类单糖或氨基酸运进细胞不通过AIP直接提供能呈。
(3)光驱动泵
与光能的输人相偶联’如菌紫红质利用光能驱动H+的转运。
……‖
|
[||出∏贵与细胞物质
运输相关的三个知
识问题[J].生物学教
学’2(}l3(8):42
●
●
[2|刘泽羽谈主动运输
●
的能量来源{J]生物
●
学教学’2〔}15(l0):7().
●
●
[3|翟中和’王喜忠’丁
●
明孝.细胞生物学
●
[M].4版.北京:高等
●
●
●
教育出版社’20ll.
●
●
●
●
●
G
G
G
~
二■●●●●●●●●●■●●●●●●●●
■
●
●
●●●●●●●●●●●●
●
045
●
●
砂
●
●
●
吩
■
●
◆
●
●
巾
●
■
●
◆
●
●
●
●
●
◆
G
|
Ⅻ〃》则′
匈′〗M』抑硼v’′
|‖□高中生物疑点通
】
】
■
■
弘
而
困|素有‖‖|
~
~~
~
向
』
■
汕
曰
』
‖"‖删|田
ˉ
■
川
已
~
~
~
~
~
~
‖
‖
‖
■
■
|
|
‖
=
■
活细胞每时每刻都在与其周围环境进行物质交换’它们所需要的物质
不仅种类繁多`性质各异’且大多数是不溶于脂质的。而构成细胞质膜的基
本支架是磷脂双分子层’能够直接穿过脂质层出人细胞的物质极少’大多数
物质的分子或离子进出细胞与细胞质膜的结构`特性及其他因素有关°
自由扩散
‖20
C02
协助扩散
‖20
‖20
002
●
‖20
小分子和离子的几种跨膜运输方式
↑。物质浓度的影‖间
通过自由扩散和协助扩散出人细胞的物质’主要受细胞质膜内外溶质
分子或离子浓度差的影响。尤其是自由扩散’只要两边浓度不—样就会从
高浓度—边向低浓度_边扩散,例如’O2`CO2、甘油和乙醇等物质。对协
助扩散来说’除了物质浓度的影响外’还有膜对被运输物质通过膜的阻力
影响’如固醇类激素°
2。载体`通道租离子泵的影晌
细胞质膜上不同种类的蛋白质的通透性各异’而不同的分子或离子直
径大小不同性质也不同’所以细胞允许它们通透的情况是不_样的’载
体`通道、离子泵主要影‖问协助扩散和主动运输’尤其是主动运输°
046
例
∩
p
第—篇分子与细胞
(
↑)载体蛋白的作用
载体蛋白又称为载体。能够与特异性物质结合’通过自
身构象的变化’将与它结合的物质转移到膜的另—侧。协助
扩散和主动运输都必须靠载体蛋白来运载物质。载体的功能
与其本身的结构有很大的关系。
载体具有高度的特异性(载体上的结合位点’只能与某
_种物质进行暂时`可逆的结合或分离);存在饱和现象
(载体蛋白质分子的数目或每—载体分子上能与该物质结合
的位点的数目是固定的);有竞争抑制性(两种物质的结构
如果相似’它们会竞相与载体结合,
甲多结合—个乙就少结
合_个)
°
(2)通道蛋白的作用
通道蛋白是肤链折叠形成的球形蛋白质分子’球体表面
具有疏水性’与周围脂质相吸引’结合紧密。通道蛋白能形
成亲水的通道’当通道打开时能允许特定大小的溶质通过’
特异性不如载体蛋白强°
(3)离子泵的作用
离子泵是膜运输蛋白之_,也可看作—类特殊的载体蛋
白’能驱使特定的离子逆电化学势梯度穿过质膜’同时消耗
AIP水解释放的能量’属于主动运输。其中’钠-钾泵普遍存
在于动、植物细胞质膜上’它有大小两个亚基’大亚基催化
ATP水解’小亚基是—个糖蛋白。大亚基以亲Na十态结合Na+
后’触发水解ATP。每水解—个ATP释放的能量输送3个Na+到
胞外’同时摄取2个K十人胞’造成跨膜梯度和电位差’如此造
成膜内高K十`膜外高Na+状态。膜内高K+`膜外高Na十`离子
跨膜梯度以及电位差都有可能激活和启动离子泵。
■
047
●
●■
■
■●
●●●
●
●
伯
■
″′`仙抓\M吻\′
刚
‖
迅
|‖■高中生物疑点通
3.能量的影晌
(
|)势能的作用
以分子本身势能为动力转运的物质多见于自由扩散和协助扩散。
有人说“自由扩散和协助扩散是不消耗能量的’’ 。其实不然’根据运
动学原理’溶液中的—切分子或离子都处在不断热运动之中’即分子
本身存在势能。势能大小主要决定于溶液浓度’平常所说的不消耗能
量只是指分子势能以外的能量’正如物体从高处自由下落—样’能量
来源于物体所具有的势能’而不需要施加外力。
(2)ATP泵的作用
离子泵可以直接消耗ATP完成主动转运。以钠泵为例’它能把细
胞代谢所获得的能量的20%~30%用于其对物质的转运’多见于—些
非离子性物质’如葡萄糖`氨基酸等营养物质的吸收°还有研究发
现’这些过程的进行常伴有Na+的进人’没有Na+由高浓度膜外进人膜
内’就不会出现葡萄糖逆浓度梯度进人膜内’即使运载的载体很多°
此过程所需能量不是ATP的水解’而是来自膜内外Na十的势能差’但造
成这种势能差的钠泵活动是要水解ATP的’即能量间接来自ATP。
(3)电势能的作用
细胞质膜在安静状态时’膜两侧存在—定的电位差’这种电位差
—般能维持平衡状态°而离子泵`载体等的活动会造成膜内`外离子
的分布不均’从而打破原有的平衡’造成膜对某些离子通透性改变’
使离子大量出人细胞以恢复原有的平衡状态。
总之’物质出人细胞是_种极其复杂的生理活动’是在多种因素
共同作用下完成的。
}p
\<二ˉ4
=
{≡…、…………
[1]张宝元.浅析物质出入细胞的影响因素
[J]生物学教学’201l(7):70_71.
■
<
、
●
●
●
●
●
●
●
IGG
●●●●●●●●●●●●●■■●■●●■●■■■●· ■●●●●●●●●●■●●●●
●●●●●
●
●
●
■
●
●
●
伯
●
●
●
“g
●
●
●
●
●
●
饥似′`MW
′‖
…
~
■
分子与细胞
第
O
赏瞧
糖酵解
线粒体的外膜含有孔蛋白’当孔蛋
白通道完全打开时’可以通过分子质量
为5kDa的分子。ATP`辅酶A等分子质
量小于lkDa的所有物质都能自由通过外
膜。由于外膜的通透性很高’使得膜间
隙中的环境几乎与胞质溶胶相似。丙酮
酸的分子质量是88.06Da’因此可以自由
通过线粒体的外膜°
线粒体内膜对物质的通透性很低’
能严格控制分子和离子通过°实际上’
所有分子和离子的运输都需要借助膜上
的—些特异的转运蛋白°由于丙酮酸属
于带电分子’因此其通过线粒体内膜的
方式是主动运输°能量来源是H+电化学
梯度中的势能°
丙酮酸氧化
线粒体基质
』芝枷
柠檬酸
循环
燃
瓣
氧化磷酸化
|
|
「
细胞质
‖
‖|!
{》
博ˉ甲=
|
蹦
!二
眼
]
●●●
●●
}主要参考文献
=
[1]Ja∏eBR’etal.Campbell
Blology[M].
1()thed
SanFrancjsco:
Ben}amin
Cummmgs’2()13.
●
●
●
●
●●●●●●●●●
●
●●●●●●●●●●●●●●●●●●●●●●
●
线粒体基质
有氧呼吸过程示意图
049
●
●
●
●
●
●
●
●
◆
●
●
●
咎
●
●
●
●
●
●
●
G
●
∩
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
`″饥
′`′
|‖口高中生物疑点通
司
|阶
~
~
~
~
~
~
~
~~
~
汪|
|
■
□
『
』
■
■
■
■
■
尸
【
‖
可
‖
白
川
I
I
|
】
<
β
■
■
■
■
】
【
尸
果糖
∏
■
半乳糖
半乳糖
肠腔
微绒毛
G[0丁2
G[0『5
〗
业
半乳糖
半
小肠上皮
>
G
@`
∧『Pˉ---≡
◎|||G
∧Dp+p
〃‖
0[0『2
≥
}
k
\
/
G[0丁2
小肠上皮细胞吸收单糖过程示意图
单糖进人小肠上皮细胞的方式:
(l )葡萄糖和半乳糖的主动运输需要ATP
和Na+°
(2)当肠腔单糖水平较高时’葡萄糖和半
乳糖借助载体GLUT2协助扩散进人小肠上皮细
胞;葡萄糖和半乳糖同样可以借助载体GLUT2
运出细胞。
(3)果糖借助载体GLUT5协助扩散进人小
肠上皮细胞’借助载体GLUT2协助扩散运出。
|室…赋·…=
●
|1]GropperSS’SmithJL.
●
●
●
●
AdvancedNutritionand
■
●
●
HumaIIMatebolismM6|hed.
●
●
■■
●
●●●
050
√′)M叮`″∏
″
′`
例
∏`
〃″Ⅶ.
d ‖刨′h〃`酗p√V》
·删…囊
收葡萄糖的万式是什么?
′
门
0
i
|忙阻凹|
|
~
~
~~~~~~
∩
巳
_般认为,动物细胞对葡萄糖或氨基酸等有机物吸收时所需能量由蕴藏在Na十电化学
梯度中的势能提供°Na+ˉK泵工作形成的Na+电化学梯度驱动葡萄糖协同转运载体以同向
协同转运的方式将葡萄糖等有机物转运进人小肠上皮细胞,然后再经GLUT2以协助扩散
的方式转运进人Ⅲ液’完成对葡萄糖的吸收。
肠腔
低葡萄糖浓度
端的微绒
密连接
葡萄
葡萄糖=‖已+
同向转运
上皮
高葡萄糖浓度
侧面
被动的葡萄
糖单向转运
葡萄糖被释放到
低葡萄糖浓度
≡…‖=
细胞外液体
小肠上皮细胞主动吸收葡萄糖过程示意图
●■‖■
[1]The
Facilitated
ComponentofIntestl∏al
GlucoseAbsorptlon〔J].
JournalofPhysio]ogy
,2(}()1’531(3):585—595.
[2]翟中和’王喜忠’丁明
孝细胞生物学[M].4
版.北京:高等教育出版
社’2011.
[3]艾伯茨.B’等.细胞生
物学精要|M].丁小燕’陈
跃磊’等译3版.北京:科
学出版社’2012.
●
最新研究表明’若肠腔葡萄糖浓度很低’葡萄糖通过
主动运输进人小肠上皮细胞。主动运输所需能量来自Na+电
化学梯度中的势能。载体蛋白则是Na十驱动的葡萄糖同向转
运载体(SGLTl)。若肠腔葡萄糖浓度很高,葡萄糖则借助
另—种载体蛋白(GLUT2)协助扩散进人小肠上皮细胞。
有资料表明:在协助扩散进行的同时’主动运输也在
发生°主动运输的载体容易饱和’协助扩散吸收葡萄糖的
速率比主动运输快数倍。
可见’小肠上皮细胞吸收葡萄糖的方式既有主动运输
也有协助扩散。
●
●
●
◆
●
●
●
●
●
G
GGGGGGGGGGGGGGGINGGGGGIGGGGGGGGGIG
G
G
G
G
G
05′
飞
|‖■高中生物疑点通
∏
■
■
=
…
≡
=
=
≡
=
■
■
■
■
■
=
■
=
=
=
=
■
■
=
■
■
=
■
■
=
=
■
≈
=
=
=
=
?~~~~
吞『0胞肚呈不是跨膜运
=====■=≈≈■=■■■=■乙■=■≡=■=…==■■■■===…电■=■■】
细胞质膜
分泌产物
◆
盼
●
$
沪
●
沁
占
■
细胞质
分泌小泡
凸
』
70∩Ⅶ
(a)
(b)
胞吐过程示意图
细
‖
l
|‖Ⅲ
(a)吞噬作用
●
细
l
】
0』↓Ⅷ
(b)胞饮作用
胞吞过程示意图
052
■
■
■
巴
●
●
●
●
■
$
●
●
●
●
●
●
●
■
●
●
◆
■
●
●
●
●
|`刨」′′′`u′∏`.则)〃√
″′}u″「|卜`〃"√``.酗′Ⅷ′`〃|卜、
第—篇分子与细胞p
20l6年新课标I
、
Ⅱ卷中均涉及本问题’
I卷中相关描述
在3I题第(3)小题中“免疫细胞行使免疫功能时’会涉及胞
吞和胞吐这两种物质跨膜运输方式……”
;
Ⅱ卷中相关描述
在30题第(2)小题以填空的形式呈现: “当兴奋传到神经末梢
时’图中突触小泡内A→C通过
这一跨膜运输方式释
放到……”
’参考答案为胞吐°两套高考试卷均认为胞吐(胞
吞)是跨膜运输。
人教版教材必修l《分子与细胞》第4章第3节标题为“物质
跨膜运输的方式”
’教材正文(72页楷体字)则以大分子物质
胞吞胞吐作为本节标题的具体例证。
中图版教材必修l《分子与细胞》相关章节中则未出现“跨
膜运输’’这_词语°其描述为“有些大分子和颗粒物质不能以
穿膜运输的形式进出细胞’而是通过内吞和外排两种膜泡运输
的方式完成” °由此分析得出:膜泡运输属于跨膜运输’但不
同于穿膜运输。
翟中和《细胞生物学》
(第4版)第5章标题为“物质的跨
膜运输”
’第3节标题为“胞吞作用和胞吐作用’’ °此目录编排
与上述人教版教材的类似’均界定胞吞和胞吐属于跨膜运输。
还有学者认为’不同教师对“跨膜”概念的界定不同。在
《现代汉语词典》中’ “跨”的其中_意为“超越_定数量`时
间或地区的界限’’。显然’在胞吞`胞吐作用中’被转运的物质
在空间上的确超越了膜的界限’因此应当将胞吞`胞吐作用归
属到跨膜运输的范畴当中。
胞吞和胞吐是跨膜运输。
●●●●●●●●●●●●●●●
◆
综上所述,
≡…`………
[1]杨帆’李淑丹.对胞吞和胞吐有关知识的再讨论[J]
;
|
中学小物敦学20l4(|");偷↓
]4版北京
’丁明孝细胞生物学[M
{2]翟中和王喜忠’丁明弓
高等教育出版社’2011
●
●
G
●●●●●●●●■●●●●●●●●●●●●■●■■■U■■丁T■■■
7●●●●●●■●●●●●●●●■●●●●■■
●
●
0.53
仕
●
●
●
●
●
●
●
●
●
●
●
●
●
守●●
●●
●●■
●●
酗尸验叭、附′
|‖□高中生物疑点通
」
=
二
训
再|属
~
~
~
~
~
匀
川
巳
「
■
■
■
■
【
~
~
~
「
|
≈
川
已
|
同
日」
^
■
$
怕
扮
仍
●
●
●●
勺
溶质
●
●
田胞质膜
簿
-
小泡
赣$
-
●
有被小泡
(a)吞噬作用
(C)受体介导细胞摄粒作用
(b)胞饮
胞吞过程示意图
不同教材对主动运输概念的界定有所不同。
人教版高中生物必修l 《分子与细胞》的定义
为: “从低浓度—侧向高浓度_侧’需要载体蛋白
协助’同时还需要消耗细胞内化学反应所释放的能
量’这种运输方式叫作主动运输。
”
胞吐过程示意图
庄霉…
|
|||恼帆李濒"对胞;
对胞吞
而NeilA.Campbell等人所编的《生物学
导论》认为’主动运输是指要求细胞利用能
量以使分子跨越膜的运动。
前者可以看作主动运输狭义的概念,后
者可以看作广义的概念°狭义上的主动运输
既强调了有能量的供应’也强调了需要载体
蛋白的协助°依此概念’胞吞和胞吐作用不
能称为主动运输。
广义上的主动运输只强调了需要能量的
供应’而胞吞`胞吐涉及膜的融合与膜的分
离’需要消耗能量’因此属于主动运输。高
中生物教材中则回避了此种定义方式。
●●
和胞吐有
关知识的再讨论[J].中学生
教学’2014(10):64
[2|田正贵与细胞物质运输柜
与细胞物质运输相
物
●
●
●
●
关
的三个知识问题[J].生物学
学’2013’38(8):42.
教
●
[3]CampellNA’ReeceJB,Simon
●
EJ生物学导论[M]吴相钮尚
玉昌安利国等译2版北京:高
●
等教育出版社’2006:75.
[4]吴光耀高信曾’汪劲武’等.
物学精英教案[M].北京:军
谊文出版社’2()()1
●
■
●
◇
●
●
生
事
G
I
GGGIGGGGGGGGGGIGGGGIIIGGGGGGIGIGGGGGGGGG
G
G
I
G
G
054
`翅』Ⅱ
『
‖胞‖lk
|
人教版高中生物必修l “分子与细胞”在引人胞吞和胞吐作用时’是以大分子的运输
方式为例进行介绍的。不少教材编写时’也直接以“大分子和颗粒物质的跨膜运输”为
胞吞`胞吐_节的标题°这就会使广大教师产生误解’认为胞吞和胞吐只能运输生物大
分子。这种认识是不全面的。
庄霍…]
神经递质分泌及发挥作用过程示意图
●●●●●●●●●●■
~
~
胞吞和胞吐的作用主要是运输大分子物质’但绝不
}
仅仅只能转运大分子物质。如乙酷胆碱、去甲肾上腺素
}
等神经递质的转运也以胞吐的形式进行。去甲肾上腺素
;
的相对分子质量为l69.l8’甚至小于精氨酸、酪氨酸和
;色氨酸等氨基酸的分子质量’是典型的小分子物质°可
;见’胞吞和胞吐也是能转运小分子物质的。
需要强调的是’胞吞和胞吐对于细胞的意义远不止
;是单纯地介导分子的运输’而是给细胞摄取或排出物质
;提供了—种储存和释放调节机制’使得物质的运输与细
!胞的信号转导相偶联’更好地调节细胞的生命活动。这
j一点才是胞吞和胞吐有别于其他运输方式的关键所在°
0
[1]杨帆李淑丹对胞吞和胞吐有
关知识的再讨论[J].中学生物
教学,2014(10):64.
[2]田正贵.与细胞物质运输相关
的三个知识问题[J].生物学教
学’2013’38(8):42.
[3]CampellNA’ReeceJB,Simon
EJ.生物学导论[M]吴相钮’尚
玉昌安利国’等译2版北京:高
等教育出版社’2006:75~
[4]吴光耀’高信曾汪劲武’等.生
物学精英教案[M].北京:军事
谊文出版社’20()3.
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
GGGGGGGGG
GGGIGGGIGGGGGGGGGGGGGGG
G
G
G
05J
…′吻`√v≤趟
|‖口高中生物疑点通
=<=≡三■=豆■■=■=■=占==百≡二=■乙■■=■■====■=■===乙~■===~==
翱质运输巾的作甜是什么?
==■■■■■■=≡■■■■■=■■■■■
■■■■■■■三■■■■■■■■■===■■■■■■■■≈■■=■■■■■■
■■■■=■■
■■■■■■■■■■■=■■
】■■=
~~
彦
‖
‖
90∏Ⅷ
受体介导的胞吞
我们以受体介导的胞吞为例。
胞吞是物质运输中的_种’主要针对大分子和颗粒性物质的运输’而受体介导的胞
吞具有非常专_的特点。
受体蛋白包埋在膜中’其专_的部位与胞外的配体(能与受体蛋白质分子专_部位
结合’引起细胞反应的分子)接触并结合。受体蛋白聚集在膜的胞质侧上称为有被小窝
的部位上。
当被吞人的物质从小泡中被释放出来后’受体又再回到细胞质膜上’可重新被利用。
)主要参考文献
[1]朱小燕与受体有关的常见问题答疑[J]
学』2014’11:79—80ˉ
生物学教
[2]吴庆余基础生命科学[M].2版北京高等教育出
版社’2006
[3]吴相钮陈守良’葛明德陈阅增普通生
3版北京:高等教育出版社’2009.
物学[M]
●
|
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
■
●
●
■
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
056
腑
叫
…
…
征
Ⅵ
夕
帜
"
′
凹
』圃是l|‖{【
泵慨识别|护
=
由
匹
】
]
酶与底物之间的结合,是通过酶对于底物的化学结构和空间构型来进行识别的。
了
●产"
"
酶
发生反应
酶与底物结合完成催化过程示意图
下图是酶催化蔗糖水解的过程示意图。
又
外
—种酶只作用于_种底物产生_定的反应’称为绝对专_性’如脉酶’只能催化尿
素水解成NH3和CO2’而不能催化甲基尿素水解。_种酶可作用于—类化合物或_种化学
键’这种不太严格的专_性称为相对专_性。如脂肪酶不仅水解脂肪’而且也能水解简
单的酷类;磷酸酶对_般的磷酸酷都有催化作用’无论是甘油的还是_元醇或酚的磷酸
酷均可被其水解。
_种酶对底物的立体构型的特异性有
着严格的要求’称为立体异构专_性。如
α-淀粉酶只能水解淀粉中α(1→4)糖昔键’
不能水解纤维素中的β(1→4)糖昔键;
Lˉ乳
酸脱氢酶的底物只能是L型乳酸’而不能是
D型乳酸。以上是通过酶与底物结构之间
的“和谐性”来进行识别的。
(=冀献]
●●●●
●●●●●●●G●●●●■●●●p●●
[1]梁愈.高中生物学知识中的“识别,,机制集录
{J]生物学教学’2()11(12):63—64.
[2]拉弗’约翰逊生物学[M]谢莉萍’张荣历
贵友’译.6版.北京:清华大学出版社’20()8
谢莉萍’张荣庆胀
c
G●●●●●●●●p●●●■●●
057
切》
′′ⅦⅢV)
″
仰测′
、…
|‖□高中生物疑点逾
■■=■≡■■≡■■
化?
■■■…己…■■
在种子萌发的开始阶段’只有少
量的水解酶’这是因为在发芽的开始
阶段’贮藏物质的分解十分缓慢。
在氧气充足的条件下’_个星期
后’水解酶的含量明显升高’从而促
进种子萌发过程的物质转化。
=
′
″″】l
`
》
~
~
/『\
』
脉`
种子萌发过程示意图
●■●●●●●●●●●●●●●●●●●●●●●●●●●●●●
|主要参考文献
●
●
[1]祝丽环黄婶.种子萌发过程中的生理变化[J].生物
学教学’20l1’(4):65—66
[2]高信曾.植物学[M].2版.北京:高等教育出版
社’1987:14—16.
[3]潘瑞炽董愚得.植物生理学[M].2版北京:高等教
育出版社’1984:47—52.
●
●
●
●
●
●
●
GGGGGGGIGGIGGGGGGIGGGGGGGGGIGGGGGGGG
G●●●●●●●●●●●●●●●●●●■●●
05『
′
″\则′
抓`闷7Ⅵ
`l′
p
第篇分子与细胞
叮穆酶菏何贼—
■
●_ˉˉˉ-ˉˉ一ˉˉˉˉˉ-ˉˉˉˉˉ-.ˉˉ下
一种核酶的结构
酶是活细胞产生的—类具有催化作用的有机物。
1926年’美国
科学家萨姆纳从刀豆种子中提取了腮酶’又用多种方法证明了脉酶
是蛋白质°后来科学家又相继获得了胃蛋白酶、胰蛋白酶等许多酶
的结晶’并证明这些酶都是蛋白质。直到20世纪80年代’美国科学
家切赫和奥特曼发现少数RNA也具有催化作用。人类对酶的概念又
有了新的认识。
↑.核酶的特性
RNA催化剂称核酶’绝大多数RNA催化剂以自身为底物进行
自体催化’可以自我剪切’也可以自我剪接。RNA催化剂催化效率
低’但有的RNA催化剂有多种酶的功能。如原生动物四膜虫的rRNA
前体的内含子序列具有核糖核酸酶等5种酶的活性’其水解RNA的速
率为每分钟2次’而胰RNA酶(蛋白质类催化剂)的作用速率是每秒
钟数千次°与蛋白质催化剂相比’细胞内的RNA催化剂是极少的。
059
叫,孤
硒
|0口高中生物疑点通
2核酶的作用
高中生物学教学中’在“蛋白质的生物合成”章节内容中比较多
地涉及RNA的知识°核糖体是蛋白质合成的机器,其结构_直备受关
注。20世纪70年代’通过电子显微镜观察显示了核糖体大亚基和小亚
基的粗略结构°后来进—步通过免疫电镜`中子衍射技术才得出核糖
体的更精细的结构。核糖体由大小两个亚基构成’不管是大亚基还是
小亚基都由蛋白质和rRNA两种成分组成’核糖体RNA称作rRNA’蛋
白质称作r蛋白,其中rRNA含量占2/3’而r蛋白占l/3°
在mRNA翻译为肤链的时候’肤键的形成是自动发生的’不需要
额外的能量’这—反应是由肤基转移酶催化的’它的作用是催化A位
tRNA上的末端氨基酸的—NH2与P位肤酚—tRNA上氨基酸的—COOH
间形成肤键°其结果使A位的氨酷—tRNA上的多肮延长了_个氨基
酸’而P位的氨酷—tRNA形成脱氨酚—tRNA。
以70S细菌核糖体为例’多年来—直认为肤基转移酶是组成50S大
亚基的_种蛋白’现在已经清楚它是构成核糖体的rRNA’是_种核
酶’而蛋白质只是维持rRNA的空间结构°核糖体大亚基与底物及其
产物的复合物的晶体结构显示’只有RNA处在肤键合成的位置’没有
蛋白质组分位于距离肤键合成位点18人以内的距离’因此排除了蛋白
质因子在该反应中起作用的可能性。所以’蛋白质对催化没有任何作
用,而RNA是完成肤键转移的唯_组分。
到目前为止’已知的几十种天然RNA催化剂的绝大部分参与RNA
的加工和成熟。天然核酶的活性作用主要包括核昔酸转移作用`磷酸
二酪键水解作用、磷酸转移反应催化作肘`脱磷酸作用`限制性内切
酶作用和肤基转移酶作用。通过体外筛选技术获得的核酶能够催化很
多化学和生化反应°
」奎…"
[1]刘晓菊.重新认识‘‘酶,
教学’2()14’8:55—56.
●●●●●●●●●●●●
[J|生物学
●●●●●●●●
●●●●●●Q●●●●●●●●●●●●●●●●■●●●■
●
060
~
巡′q`^泌′『侧″`′`巡′q`吵′\′
′汕肌吧′「闷例`‖j严
■
第—篇分子与细胞
↑.蛋白酶
蛋白酶是蛋白水解酶的简称’是
_类肤链内切酶’只能切开肋链内部
的键’而不能切开肤链末端的键’因
此也叫作内肤酶。
最常用的蛋白酶主要有胰蛋白
酶`胰凝乳蛋白酶(糜蛋白酶)`嗜
热菌蛋白酶、胃蛋白酶`木瓜蛋白
酶`葡萄球菌蛋白酶和梭菌蛋白酶
等。不同的蛋白酶作用于肤链的位点
不同。
(
↑)胰蛋臼酶
这是最常用的蛋白水解酶’专_
性强’只断裂赖氨酸或精氨酸残基的
竣基端参与形成的肤键°因此’用它
断裂多肤链得到的是以赖氨酸和精氨
酸为C—末端残基的肮段。
(2)胰凝乳蛋白酶
此酶的专_性不如胰蛋白酶’它
断裂苯丙氨酸、酪氨酸和色氨酸等疏
水氨基酸残基的梭基端肤键。
肋
肠肚酶
胰蛋臼酶
蛋白质
+
‖,0
ˉ———→
多肋
肤酶
多肋
+
‖,0-—_—→
氨基酸
蛋白质消化吸收过程示意图
(3)胃蛋白酶
它的专—性与胰凝
如苯丙氨酸ˉ苯丙氨酸。
是8~9。
性与胰凝乳蛋白酶类似’但它要求断裂点两侧的残基都是疏水性氨基酸’
苯丙氨酸。此外’
胃蛋白酶与胰凝乳蛋白酶的最适pH不同’前者是2’后者
06′
冈
″`则′v`h″『『
瓜
饥‖
|‖□高中生物疑点通
(4)木瓜蛋白酶
木瓜蛋白酶的专—性差’断裂位点与其附近的序列关系密切’它对精氨酸和赖氨酸
残基的竣基端肤键敏感。
(5)葡萄球菌蛋白酶
葡萄球菌蛋白酶亦称谷氨酸蛋白酶’是从金黄色葡萄球菌菌株Vs中分离得到的。当
在磷酸缓冲液(pH7.8)中进行裂解时’它能在谷氨酸残基和天冬氨酸残基的竣基端断
裂肋键°如果改用碳酸氢按缓冲液(pH7.8)或醋酸缓冲液(pH40),则只能断裂谷氨
酸残基竣基端的肤键。
(6)梭菌蛋白酶
梭菌蛋白酶亦称为精氨酸蛋白酶’是从梭状芽抱杆菌中分离出来的。该酶专门裂解
精氨酸残基的梭基端肤键。
2.肋酶
能够水解蛋白质的酶除了上述蛋白水解酶以外’还有一类叫作肤酶的水解酶’这是
_类肮链外切酶’或叫作外肤酶。外肤酶分为两类:—类是从肤链的N—末端逐个地切
下氨基酸’叫作氨肤酶;另—类是专_地从肋链的C—末端开始逐个降解’释放出游离
氨基酸’叫作竣肤酶°由此可见’肤酶的作用是将蛋白质的肤链彻底水解为氨基酸。
(
‖ )氨肋酶
最常用的氨肮酶是亮氨酸氨肤酶’亮氨酸氨肤酶不是只能水解以亮氨酸为N—末端
残基的肤键’只是水解以亮氨酸为N—末端的肤键速度最快。此外’还有焦谷氨酸氨肤
酶等。
(2)竣肋酶
目前常用的有四种梭肋酶:A`B、C和Y。其中A和B分别来自牛胰和猪胰; C来自柑
懦叶;Y取自面包酵母。研究最多、使用最广泛的是竣肤酶A和B。竣肤酶A能释放除脯氨
酸`精氨酸和赖氨酸之外的所有C—末端残基’
彰/=冀献`……
而竣肤酶B只水解以碱性氨基酸精氨酸和赖氨酸
为C—末端残基的肤键。竣肤酶A和B的混合物
能释放除脯氨酸之外的任—C—末端残基。竣肮
酶Y可以作用于任何—个C_末端残基。
|
‖|丁…白赋毗鹏存水瞬蕾
白质方面的区别[J]生‖勿学教;
●
;
|
学,2()l1(l):76
●
●●●●●●●●●●●●●●●■●●●●●●◆●●●●●●
●
●■●
062
h′Ⅵ、″"Ⅷ
p
第—篇分子与细胞
========字=■=~≡■===■==■=】
‘‘兄弟姐妹,,
朋0|p‖‖|
■
‖
‖
‖
』
』
腺‖票岭
^
「
`
勺
二
‖
‖
|
磷酸基团
^
\
‖
0‖·
\f
c
‖
P
〔
』
√
~
~
~
~
∧‖p
(
』
√
∧0p
(
」
√
∧『p
细胞代谢中物质的转变离不开能量的驱动’而能量来自于能源物质
的分解。糖类`脂质甚至蛋白质都可作为能源物质’但它们都不可以直
接供能’这些物质氧化分解后将能量转移至ATP中才能被其他吸能反应
利用°故此’ATP作为能量的‘通货”被广为熟知。但‘‘通货”不只有
ATP’许多与AIP结构类似的物质(且称它们为“ATP的兄弟姐妹’’
)也
可以作为能呈的直接来源。如果将ATP比作“人民币”的话’那么’它的
《‘兄弟姐妹”则是其他种类的货币°
↑.AIP
核糖与碱基腺膘吟脱水结合形成腺昔,腺昔再结合三分子磷酸基团
就形成了三磷酸腺昔’英文简写为ATP,分子式为Cl0Hl6N5Ol3P3。ATP的
三个磷酸基团从腺昔开始被编号为α、β和γ磷酸基,磷酸在ATP的功能中
起着非常重要的作用。两个磷酸之间用“~’’表示的化学键’是—种特
\
063
●
■
●
■
●
■
◆
$
■
●
■
G
勿
们`趴
″`
′v惫翅
佃`′』/『Ⅵ铡′`严
仰险训庐
〃『`
|‖□高中生物疑点逾
殊的化学键’这种化学键断裂时’放出的自由能—般高于20.92kJ/mol。例
如,ATP的γ磷酸基脱离时断裂的化学键释放的自由能为30.54kJ/mol°从低
等的单细胞生物到高等的人类’能量的释放`贮存和利用’都以ATP为中
心’ ATP是细胞能量的主要来源°同时’三磷酸腺昔也是体内广泛存在的
辅酶’蛋白质、脂肪、糖和核昔酸的合成都需要ATP的参与。
」~-—一=ˉ
磷酸基团
]广---_可
腺昔
@oo
AIP的结构示意图
2NTP家族及功能
如果将ATP中的碱基A替换为G、U或C’则成为另外三种三磷酸昔’分
别为三磷酸鸟昔(GTP)`三磷酸尿昔(UTP)和三磷酸胞昔(CTP)’它
们与三磷酸腺昔(AIP)—起构成了NTP家族。
核昔酸不能直接参与核酸的形成’而是先转化成相应的核昔三磷酸后’
才能参与RNA或DNA的合成代谢°在进化上这种选择具有积极的意义’NTP
均为高能化合物’水解掉两个磷酸基团后即成为核昔酸’参与核酸的组装。
同时’还能解决能呈需求°既作为原料’又是供能物质’—举两得。
除了核酸的生物合成之外’NTP还有以下功能:
(1)CTP可参与甘油磷脂的合成’或是蛋白质的糖基化。
(2)GTP是DNA复制时的引物和三竣酸循环中唬I日酚辅酶A转变为唬
琅酸过程中的能量载体’可以和ATP相互转换;GTP也是细胞信号转导的重
要物质’在此过程中它会在GTPase作用下转化为GDP。
勿
064
p
第—篇分子与细‖目
(3)UTP在糖代谢中起重要作用’主要包括三方面:—
是在半乳糖的降解代谢中’UTP与葡萄糖ˉl-磷酸形成UDP—葡
萄糖’进而使得半乳糖ˉlˉ磷酸转变成为UDPˉ半乳糖’经过差
向异构化又形成UDP—葡萄糖;二是在乳糖的合成代谢中’半
乳糖ˉ1-磷酸可与UTP形成UDP-半乳糖’进而与葡萄糖连接为
乳糖;三是在糖原的合成代谢中’UTP与葡萄糖—l_磷酸形成
UDP—葡萄糖’后者在糖原合酶的作用下延伸形成糖原。
3.
dNTP家族
dNTP家族成员包括dATP`dTTP、dCTP和dGTP’它们的
合成方式与NTP有很多不同。大多数的生物中,脱氧核昔酸的
形成是在核糖核昔二磷酸(NDP)基础上进行的’将NDP中
核糖第二位碳原子上的氧原子脱去’即成为脱氧核糖核昔二磷
酸,还原得到的dNDP进—步形成dNTP。
无论是细胞内DNA的复制’还是胞外PCR的进行’合成
DNA的原料均为dNTP。与NTP_样’ dNTP也是高能磷酸化合
物’可为DNA合成提供能量。
4小结
综上所述’ATP作为主要的直接能源物质’它的兄弟姐妹
NTP和dNTP也可以作为直接能源参与代谢’只是较为少见。
此外’核昔酸类物质还具有多方面的生理作用:
(
l )参与代谢或生理活动的调节(例如’环核昔酸
cAMP和cGMP作为激素的第二信使)
;
(2)参与构成酶的辅酶或辅基(例如’在NAD+、
NADP十、FAD、FMN、CoA中均含有核昔酸的成分)
;
(3)作为代谢中间物的载体(例如’用UDP携带糖基’
;用CDP携带胆碱、胆胺或甘油二酪’用腺昔携带蛋氨酸)等。
主要参考文献
●●
[1]赵恋君.AIP和它的兄
弟姐妹[J|.生物学教
学’2014(1l):58—59.
|2|董晓燕生物化学[M].
北京:高等教育出版
社’2()1():378—384`
[3]王镜岩’朱圣庚徐长
法生物化学:下[M].
北京:高等教育出版
社2002:39{—401
●
~
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
■
●
●
●
■
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
06J
G
瓜
|‖口高中生物疑点通
0
======■=■乙=□=■■======■■==■■=====≡=≡=■==□0
能磷酸键是怎样一个化学键?
■■■■=■=■■■
■■■=■■■■■■■■■■≈==■■■■==~■■■■■■■■■■=■■■■==…===■==■
F
在人教版高中生物学教
材中’对高能磷酸键的描述
为:
“ATP分子的结构式可以
简写成A—P~P~P’其中A代
表腺昔’ P代表磷酸基团,
~
0
丁
0
‖
‖
0ˉ—P--0-ˉp—
▲
0ˉ
▲
0ˉ
∩
~
~
·
‖
旧
|
∩
·
磷酸基团
0‖
0‖
代表_种特殊的化学键’叫
核糖
作高能磷酸键”
°通过分析
AIP分子结构示意图
ATP的结构可知’ATP中含有
两个高能磷酸键。
这里的高能磷酸键’实际上是磷酸分子之间脱水形成的磷酸酚键°这里的‘‘高能
键”的含义与化学键的‘‘键能’’的含义是不同的。在化学反应过程中’当化学键断裂
时’要克服原子间的相互作用’需要吸收能量’这就是键能。而_个化学反应的反应
热’等于生成物形成时所释放的总能量与反应物分子中的键断裂时所吸收的总能量的
差。而所谓的“高能键’’
’其实是指这个键水解时所释放出的大量自由能。ATP中高
能键的断裂本身是需要吸收能量的’但ATP具有很高的磷酸基团转移势能’它水解后
所形成的产物具有很少的自
由能’所以伴随的是释放出
大量的能量。换句话说’
ATP水解产生的腺昔二磷酸
(ADP)和磷酸基团(Pi
)
的分子结构比ATP更稳定’也
就是比AIP分子具有更低的能
量’ATP水解所释放的能量就
来自于这个能量差。
主要参考文献}……………………
●●●●
《. |7|徐乐李胜杰关于赡酸二雌键
●
磷酸键和高能磷
酸键的辨析[〗.生物学教学’2017(1):70—71.
[2]林青既然断开化学键要吸收能呈’为什么ATP
高能磷酸键的断开会放出大呈能呈?[J].科学
界’2016’8:l〔)2.
●
;
[3]RavenPH’JohnsonGB生物学[M]谢莉萍张
氏张贵友’译6版.北京情华大学出版社’2008.
为什么ATP中
世
;
荣
●
●
●
■
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
●
066
b■●
G
●
◆
■
●
●●
●●
●
叫
∩
Ⅷ∩
闪
4Tp黑
四正
习简僵∩[:]‖删|丽|
|
ˉ
一
≡
=
■
~
细胞中绝大多数需要能量的生命活动都
是由AIP直接提供能量的’但细胞中有些需
要能量的生命活动却可以由ATP以外的其他
物质(如GTP、CTP和UTP等)提供。
例如’蛋白质合成时肤链的延伸过程、
磷脂合成以及糖原合成过程所需的能量则
分别直接来自于GTP、CTP和UTP’但物质
氧化时释放的能量大都必须先合成ATP’
然后ATP可使GDP、CDP或UDP生成相应的
GTP、CTP和UTP。
腺膘岭(∧)
N‖2
磷酸基团
O
O
O
—O-p-O~尸一○~尸-O
||
||
||
O
O
O
‖
O‖
O‖
三磷酸腺昔(∧丁P)
/〕↑
‖
O‖
○‖
二磷酸腺昔(∧D尸)
○
○
|
尸
‖
◎
○
‖
+
)主要参考文献‖…·……………….
磷酸(P『
)
|
[1]李守宇,吴苏娜关于ATP若干疑难问题的探
讨[J].中学生物教学’2002(4):51—52.
[2]张丽萍,杨建雄生物化学简明教程[M]5
版北京:高等教育出版社’2015.
AIP水解过程示意图
■
●
●
●
●
■
●
●
●
●●●■●●●●●●●●●■●●●■■■■■=■
●●●●●●●■●●●●●●●●●●
●●●●●●●
067
●●
●●
●Q
●
~
瓜
叮`/『N\``″\
^
尸`‘」/『顺趟′`‖′
|‖□高中生物疑点通
司
=≡=====■■…=→==============■==■■==引
以转化沟热能鹏?
■====≈=■===■=■■==■■=■=■■=■≈===…==】
人教版高中生物必修l《分子与细胞》第96页拓展题:
“人(还有鸟类和哺乳类)能保持体温的相对稳定°体温的
维持与细胞呼吸是怎样的关系?是否也需要AIP水解供能?
’’
教师参考用书给出的答案:
“人与鸟类和哺乳类维持体
温的能量来源都是细胞呼吸°在这吐牛物的细胞呼吸过程
中’葡萄糖等分子中稳定的化学能释放出来:除_部分储
存在ATP中外’其余的则转化成热能’可以直接用于提升体
温;ATP水解释放出的能量’除了维持各项生命活动外’有
—部分也能转化成热能’用于提升体温。而维持体温的相对
稳定’还需复杂的调节机制。
”
ATP水解被用于驱动细胞内大多数吸能反应’还可用于
电荷的跨膜分离`溶质的浓缩`肌肉细胞中纤维的运动以及
产热等°
AIP水解后通过提高分子运动的速率增加细胞的温度。
→
献]……..
●●■●
ATP水解加剧分子
』
分子细胞生物学[M].王
[1]KarpG
喜忠’等译.3版ˉ北京:高等教
出版社,2()05.
育
●
●●●●●●●●●●●
●
●●●●●■●■●●●●●●●●●■●●●●●●●●
06g
严』
"Ⅷ哪灿′「脐灿′
```
′^d′
武
囊
第篇分子与细胞
】
|
回
∩
引
|
』
氧砰贩第二阶段有无能量产生?有无AⅡP生威
■■■■===■■■■==■→=■■■■■■■■■
■■■■『■■=■■■■■→■■=~≡■■■■=■■■
人教版高中生物必修l《分子与细胞》教材中有这样的描述:
“无论是分解成酒精和二氧化碳或者是转化成乳酸’无氧呼吸都只
在第—阶段释放出少虽的能量’生成少虽ATP°葡萄糖分子中的大
部分能量则存留在酒精或乳酸中。”这段话该如何理解呢?
2∧0p+
2p‖
2∧『p
0ˉ
0==0
O==0
0‖
3
葡萄糖■■
2丙酮酸
2‖∧0+
2‖∧D‖
\/
0ˉ
0二=0
0—O‖
0‖3
乳酸
■!
无中|司产物;
‖—
丙酮酸接受‖∧D‖的电子
2
(a)发生在人体的乳酸发酵
〉坛
2∧0P+2P|
2盯p
葡萄糖■=
2‖∧0+
2‖∧0‖
‖
‖-cˉ_O‖
0‖3
2乙醛
(b)发生在酵母的酒精发酵
2乙醇
两种无氧呼吸过程示意图
069
l‖M″`0/"、u′`u广√Mv`u′v、u例\则′v、M|`h′′`u/『
′v`′
|‖□高中生物疑点通
|
以乳酸型无氧呼吸为例’该过程能量变化可简要总结如下:
第_阶段:葡萄糖分解生成丙酮酸和NADH。葡萄糖中的能
量有四个去向_—o储存在丙酮酸中;@转移到NADH中;o转
移到ATP中;@以热能形式释放。
第二阶段:丙酮酸被NADH还原生成乳酸。NADH作为还原
剂’其中的能量释放出来’_部分转移给丙酮酸转化成乳酸储存
起来’_部分以热能形式释放°
有人认为丙酮酸被还原的过程中吸收了NADH中的能量’所
以该阶段没有能量释放。事实上’ NADH中的能量只是部分转移
到丙酮酸中生成乳酸’还有_部分能量被释放出来以热能形式散
发掉’所以整个第二阶段过程是放能的。
细胞呼吸过程中ATP的合成分为底物水平磷酸化和氧化磷酸
化两种情况。
无氧呼吸第二阶段虽然存在自由能的释放,但为什么不能合
成ATP呢?这是因为不存在底物水平磷酸化和氧化磷酸化’因此
不能合成ATP。除了转移到乳酸中的能量外’另有—部分能量释
放后以热能形式散失。这就不难理解’为什么在整个无氧呼吸过
程中释放的能量只有_部分储存在ATP中。
睁
∏
‖
日
献
文
考
参
要
主
IGGGGGGGGGNGGGGGGGGGGGGGGG GGG
|
[1]NelsonDL’CoxMM生物化学原理[M].3ed周
海梦等译北京:高等教育出版社’2005:422—49O
[2]朱德照郑昌学基础生物化学[M].北京:科学出版
社’2()03:402—421.
[3]贾金堂’张燕英无氧呼吸第二阶段能量的变化[〗
生物学教学’20l6(11):71.
●
●
■
●
G
●
●
●
G
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
■
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
■
070
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
巴
●
GG
翅′`
′「v、ⅧV`)
′`
灿』
广
。
~
铲
『
」
旧
=
∩
烂
胞
细
与
子
分
篇
第
}
≡==■■====≈=■≡=■============■=====■=~■=■===■三=二=■p
子
泼过程
服遥率如
蛮化?
■==■■■■■■=≡■■■■=■■■
0■■
■■■■■■■=≈■■■■■■■=■■■■==■■■■■■
】■■■■≡■■≡=■■■■■■■■=~…■■■■■
∏
研究表明’在种子萌发的第二阶段’种子呼吸产生的CO2
大大超过O2的消耗;当胚根长出’鲜重又增加时’ O2的消耗速
率高于CO2的释放速率(如下图所示)。这说明初期的呼吸主
要是无氧呼吸,而随后是有氧呼吸占主导地位。细胞呼吸促进
了物质的转化’为种子萌发长成幼苗提供营养物质。
02吸收量
|50
尸
目
◎
日
◎
且
∩
了
日
‖
|
≡
〕
己
儡
困
冒
睦
=
室
放
释
且
·
◎
卜`
25
0
>乏~
|2
24
36
48
60
72
萌发时间(}])
■
种子萌发过程中呼吸速率的变化
)主要参考文献‖.…….…………….…`
[1]祝丽环’黄婶种子萌发过程中的生理变化[J].生物
学教学,20l1(4):65—66.
[2]高信曾.植物学[M].2版.北京:高等教育出版
社’1987:14—l6.
~
■
●
●
●
●
●
●
■
●
●
[3|潘瑞炽董愚得.植物生理学[M]2版北京高等教
育出版社’1984:47—52.
≡==■■■■
●●●●●●●●●●●●■●●●
●
●●●●●●●●●●···●●●■■■
●
●●●●●●●●●·●●●●●
●
07′
●
●
●
‖/v、
仍
`〃
″``
/v点※
飞
雨=
…
|0■高中生物疑点逾
■
■
蛮化?
~~
叶片
~
…
上
]
》
」
子∩十
下胚轴
种皮
轴
~
黔
塞壳
|
』
/
)
丰
("||根
‖
b
‖主霉…]
●
[l]祝丽环黄婶.种子
●
萌发过程中的生理
变化[J].生物学教
学’2011(4):65—66.
●
[2]高信曾植物学[M]2
版.北京:高等教盲出
版社,1987:14—16.
●
●
[3]潘瑞炽’董愚得.植物
生理学[M].2版ˉ北
●
京:高等教育出版
社’1984:47—52.
种子萌发过程中有机物的转化包括以下几个方面:
在胚乳中’复杂的贮藏物质分解为简单的物质’例
如淀粉分解为麦芽糖’再水解为单糖被利用。脂肪分
解为甘油和脂肪酸’蛋白质分解为氨基酸。这些贮藏
物质水解后形成的最终产物’在胚中用来合成生命物
质’直接用来形成新的器官’即胚的生长’长根`长
茎`长叶。
在胚中’物质的转化刚好与胚乳相反’可溶解的小
分子化合物转化为不溶的大分子化合物’简单的化合物
变成复杂的化合物’最后形成新的细胞结构°
●
●
●
●
●
●
●
●
●
I
G
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
·
·
●
●
●
●
●
〃z
^^刨抓』M`/…』`则′v`〃「刚′Ⅷv涎逛′陇√
,M".v虐
p
===■■■≈=■■■===■===■■==■0===~===→0■0≡■==■■字=■=====■乙■…=■
动糊懒纽绷胞的无氧‖Ⅷ隅?
哺乳动物成熟红细胞属真核细胞’在其形成过程中丧失细胞器,缺乏有氧呼吸酶
系’即其仅存在无氧呼吸酶系(主要为糖酵解途径酶类、磷酸戊糖途径酶类)
。
在O2充足的条件下’
O2会推动糖分解中间产物
(NADH`丙酮酸)进人
有氧氧化分解的途径’导
致产生较多的ATP和柠檬
酸’而根据巴斯德效应’
在哺乳动物成熟红细胞
内’ATP和柠檬酸会抑制
无氧呼吸过程中重要的调
节酶_磷酸果糖激酶的
活性,从而抑制无氧呼吸
的进行。
但由于哺乳动物成熟
红细胞缺乏有氧呼吸酶
系,即使O2充足’也不能
进行有氧呼吸’所以不会
产生大量AIP和柠檬酸°
因此’ O2不会抑制哺
乳动物成熟红细胞的无氧
呼吸。
肺泡
|
皿浆
‖d
「
007
「
部毛细血
‖c03
外呼吸
(气体交换)
满‖
′藤
02
肺泡
阴喻
毛细皿管
血浆
02进入血液
002排出血液
气
工
肺
∏
‖
肺动脉
肺静脉
心脏
静脉
动脉
"p■
酗
002进入血液
02进入组织细胞
红细胞运输氧气和二氧化碳过程示意图
●■
|主要参考文献
[1]杜惠东.对哺乳动物成熟红细胞的几点思考
{J].生物学教学’2()16’41(]):57—58
[2]汪路长.浅析氧气抑制无氧呼吸的原因[J]生
物技术世界’20]5(l1):2|5
●●●●●●●●
G●●●
●●●●●●●●●●●●●●●■●●●●●G◆●●●●●●●●●●●●●●■●●●
■
●
0乃
们『
监|′‖
Ⅷ抓
|‖□高中生物疑点通
|
■■=■■■■■■■■‖■■
0■■
■■■■
■■■=■■■■■■■■
■■■■=…≡=■■■==
■■■■■■■■■■■■■■■■=
的能源糊质有"‖些?
「门
v
■■=■■■=■■■→=■■■■■□■■■■■■■】
■■■■≈■■■■≈■■■■=■■■■■■■■→■■■■■■■
多糖
蛋白质
脂肪
氨基酸
‖‖3
∧Dp+P‖→
‖∧0+→
`~≡
】
h「
["∧0"]
‖∧D+
丙酮酸氧化
■
脂肪酸氧化
=斤
L
∧『p
‖∧D+
「∧D
环
…
■0■■‖ ‖■■■
◎→
∧
细胞从有机物中获取能蚤的过程
074
~
须
〃
■
第篇分子与细胞
生物体内的各种有机物都可作为能源物质’但在能量代谢过程中所起
的作用又有所不同。按作用不同可分为能源物质、直接能源物质、主要能
源物质`储能物质`高能化合物等。虽然糖类、脂类、蛋白质都可以作为
能源物质’但供能先后顺序却不同’它们在动物体内供能的先后顺序是糖
类→脂肪→蛋白质。
直接能源—∧丁P:ATP水解时释放的能量直接用于各项生命活
动。而其他形式的能源物质中所贮存的能量都必须转移到ATP中才能用于
各项生命活动°
主要能源物质—糖类:生命活动所利用的能量约70%是由糖类提
供的°
长期贮存能量物质—脂肪:脂肪贮存能量的效率最高’ lg脂肪所
贮存的能量是蛋白质和糖类的2倍多’所以在进化过程中’生物体选择脂肪
作为长期贮存能量的物质。
辅助能源—磷酸肌酸:在生物体内的高能磷酸化合物中除了ATP
外’还有磷酸肌酸。但是磷酸肌酸中贮存的能量并不能直接用于各项生命
活动’必须转移到ATP中后才能被生命活动利用(ADP+磷酸肌酸—→ATP+
肌酸)’这个反应进行的速度很快’但不能满足长时间供能°
‖
●●●●
●●●●■●●
)主要参考文献
[1]谭家学.高中生物学中有关
能呈的知识[J]生物学教学’
2()1()(12):66_67~
●
●
●
●
●
●
●●●
0
二′
●
●
●
■
●
●
■
●
●
●
●
●
●
●
●
■
●
●
■
●
●
●
●
●
●
●
●
●
■
●
●
●
『
●
07J
例铡
′
|‖□高中生物疑点通
基质
光合作用电子传递系统
光子到达光系统Ⅱ的色素分子时’能激发电子。该
电子与在酶的催化作用下从水中分解出的—个质子结成
对’再沿由_系列嵌于膜上的细胞色素电子载体组成的
链进行传递。水分解时’氧气从细胞中释放出来’氢离
子则留在类襄体腔中。在质子泵(b6√复合体)处’光
子提供的能呈被用来将质子跨膜运输到类囊体腔中。于
是类囊体内部的氢离子浓度进—步增加°光系统I吸收
另—个光子后’其色素分子将第二个高能电子传递到_
个还原复合体中’产生NADPH。
人教版必修1教师用书中也明确指出:光反应过程
中水的光解是需要酶参与的。
●
[1|RavenPH’Johnson
GB.生物学[M]
谢莉萍’张荣庆’
张贵友’译6版.北
京:洁华大学出版
社’2()()8.
●●●●●●●●●●●●●●●●●●●●●●●
●
0
■
076
`Ⅷ`√隅″
■
第—篇分子与细胞
饥、
{叭′
饥、
=
■■■■■■=■■■■■====■≈≡■■■■■■
■■■■■
■■=■■=■■■■■■
0■■===
■■■■■■■■■=■■■■■■■■=■→■■■■→■■■
■■■■=■■■■■
翱的光台作硼?
光质如侧影‖"植
■■■■■■■■=■■■■■■■■乙l■■
】■■→=…■■■■■■■==■■=■■■===■■■==■■===■■=■】■■■
■■■■
■■■■
0■■=■■■■■■=
==≡■=■■
F
O
~
戳/
蹿
‖
·
尸
夕
■
γ
■
少
少
’
『
芦
α
=
●
■
巴
Ⅷ
′
=
毋
尸
尸
■
■
■
■
■
■
■
■
■
■
●
←
■
■
◆
少
夕
■
→
■
‖
→
■
I
—
水藻
‖
;瓣
}|
—ˉ_≡
≡
=
—
~
龟
■
▲
◆
蹿bo念0弓巴ˉ
蕊慧鞘.
飞◆
←
,`,·卢
’
;』.
`.°ˉ兔÷
k2
._0』ˉ
』
.
.0『
~每.°b.
审
`了》。。』
■
■
●
℃
■
侣
■
●
司
◆
■
`
■
■
◇
夕
■
●
◆
●
■
飞
●
哼
′
飞
■
守
●
‖
◆
电
尸
护
`
`
β
贴
、
■
碧;飞′
0
好氢细菌
凸
丛
●
■
●
尸
●
■
●
■
■
■
■
~
·
◆
·
700∏『∏
波长400
600
500
植物光合作用对不同色光的利用情况
植物对光的吸收不是全波段的’而是有选择性的’但不同绿色植物
对光的吸收谱基本相同。在植物利用的可见光中’红`橙光是被叶绿素
吸收最多的部分’具有最大的光合活性’所以它们也被称为生理有效
光。其次蓝`紫光也能被叶绿素、胡萝卜素等强烈吸收’只有绿光在光
合作用中很少被吸收利用。许多实验证明’蓝紫光能抑制植物的伸长而
使植物形成矮粗的形态’红光能促进植物伸长生长。
光质主要从以下几个方面影响光合作用。
↑。光质对叶片的影‖问
光质影响叶片生长。蓝光有利于叶绿体的发育’红`蓝、绿复合光
有利于叶面积的扩展而红光更有利于光合产物的积累。
光质还影响到气孔的开合。研究表明’叶绿体中存在的—种特殊的
蓝光受体(玉米黄质)使得蓝光在促进气孔开放方面具有更高的量子效
077
尸
抑铡′`则′
|‖·高中生物疑点通
率。光质可以调节保卫细胞内的物质浓度’通过渗透作用实现对气
孔开闭的调节。此外,光质对气孔的大小和数目也有影响。研究发
现’红光下菊花的气孔较大但数量较少,而远红光下气孔较小但数
量较多。
2.光质对叶绿体的影晌
红光可以使叶绿体宽面朝向光的—面’而远红光则逆转这个
过程。
不同光质还可以调节叶绿素含量。尽管叶绿素含量可能因植物
种类`组织器官不同而不同’但大多试验表明,蓝光可以提高多种
植物的叶绿素a的含量’且蓝光下的植株_般具有阳生植物的特性
(叶绿素a/b值较高)’而红光培养的植株与阴生植物相似(叶绿素
a/b较低)。此外’光质还能影响植物叶片中类胡萝卜素的含量。
3.光质对光系统的影晌
光质能调控叶绿体类襄体膜的结构和功能
4光质对基因表达的影晌
光质会影响光合作用过程中相关蛋白质和酶的基因的转录。
■
5.光质影晌酶活性
Rubisco是光合作用碳同化的关键酶’光质不但影‖问其合成还可
影响其活性。此外’在多种植物中发现增加蓝光比例可以提高植物
呼吸速率和硝酸还原酶活性°所以’相对而言’蓝光更加有利于蛋
白质的合成’红光更有利于糖类物质的积累。
07『
第篇分子与细胞
6.光质与光反应
近年来’很多科学工作者通过不同的方式研究了光质对植物光
合作用的影响。发现不同光质对植物光合作用的影响是不同的’这
与植物的种类、发育年龄、发育状态、组织部位有关’也可能与光
质处理方式、环境条件不同有很大的关系。
我们不能片面地认为某种波长光的光合作用_定强于另外—种
光°因为光质除了作为—种能源控制光合作用外’还可作为_种触
发信号影‖问植物的生长、发育`形态建成、抗逆和衰老、物质代谢
以及基因表达等,其蕴含的机理是错综复杂的。
主要参考文献‖………………………………………………
●●
=◆
[l]蔡辉儒.光质对光合作用的影响[J]生物学教学’2013(4):56—57.
[2]潘瑞炽植物生理学[M].6版北京:高等教育出版社’2()08:62—90·
[3|杨世杰.植物生物学[M]ˉ北京:科学出版社,200():403.
[4]郑洁’胡美君’郭延平.光质对植物光合作用的调控及其机理[J].应用生态学
报’2()()8’]9(7):1619—1624
[5|王镜岩’朱圣庚徐长法生物化学[M].3版.北京:高等教盲出版社’2()02:198—215ˉ
[6]史宏志韩锦峰官春云红光和蓝光对烟叶生长`碳氮代谢和品质的影响[J]ˉ作
物学报’1999’25(2):215—220ˉ
[7|许莉刘世畸’齐连东等不同光质对叶用葛宦光合作用及叶绿素荧光的影响[J]
中国农学通报’2007’23(1):96—100.
[8]倪文不同光质对稻苗生长的效应[J]云南植物研究,198(),2(2)194—201
[9]魏胜林王家保李春保.蓝光和红光对菊花生长和开花的影响[J]园艺学
报’1998’25(2):203—204
[10|储钟稀童哲冯丽洁等.不同光质对黄瓜叶片光合特性的影响[J].植物学
报’1999’41(8):867—87().
~
~
G
G
●
●
●
●
●
●
●
G
G
N
G
IGG
GGGIG
GGGGGG
GGGGG
I
GGGG
G
GGGGGGGGGGGGGGGGGGGGGGGGGGIGGG
079
●
■
●
●
●
●
●
●
●
●
■
●
巾
占
●
砂
◆
触
◆
$
●
●
m
爪
饥
′`′
狐
侧″孤
|‖□高中生物疑点通
可
■■=0■■
■■■■■=0■■■■■■=<■■■■■=■■■■
■■=■■=■=■■■■■■■■■■■■■■■=
‖↑绿体能利阻外源ATP‖马?
■■■■‖
■■■■
p
关于这个问题’部分老师的回答是“否”
’理由是产生ATP的光反
应阶段使叶绿体在ATP的利用上完全“自给自足”—叶绿体既不会为
之外的其他生理活动提供ATP’也不会吸收利用由细胞呼吸产生的外源
性ATP°事实上’光反应产生的ATP确实仅用于叶绿体自身的合成代谢
(如DNA复制`蛋白质合成等_20l6年高考江苏卷明确考查过)’但
葡萄糖
麦芽糖
‖〔X
●
丙糖
『p丁
磷酸木酮糖
XpT
酸烯醇式
丙酮酸
pp丁
∧Dp
棘Ao腰
∧",
基质
叶绿体与细胞质基质的物质交换示意图
0J0
√
q′
盯
广
盯
■
第—篇分子与细胞
叶绿体完全可以从细胞质基质中吸收少部分来自细胞呼吸的
AIP’以满足特定条件下叶绿体中的代谢需求,如暗反应`
DNA的复制`蛋白质的合成等’实现这—点的分子基础就
是位于叶绿体内膜上的AIP/ADP交换转运体°
通常认为’光合作用固定CO2所需的ATP来自于类囊
体膜两侧pH梯度驱动的ATP合成过程,然而’_些证据表
明’从细胞质基质中吸收ATP可补充叶绿体的合成代谢’至
少在某些条件下或者某些类型的叶绿体中是这样的。当光合
作用不能为固定CO2或其他合成代谢提供足量的ATP时’叶
绿体就需要吸收ATP。叶绿体的ATP/ADP转运体负责将线粒
体产生的ATP从细胞质基质转运到叶绿体基质中°
ATP运输可能对光合作用的碳固定产生很少的或实质性
的促进作用’程度视AIP的吸收速率而定°在实验中,ATP
的输人范围从每小时每毫克叶绿素5‖mol (菠菜叶绿体)到
每小时每毫克叶绿素>40‖mol (马唐草叶绿体)。在光下’
给甜辣椒的离体叶绿体加人ATP后’淀粉的表观合成速率达
到了最大值。
总之’—些生物的光合作用暗反应受到外源性ATP的显
著影响’质体ATP/ADP转运体在异养型质体(如造粉体)
和光能自养型质体(如叶绿体)中都具有重要的作用。
≡
=
-氏
昨
Ⅷ
ˉ
献文
考
参
要
主
GGGGGGGGGGGGG
[1]WlnkleIHH’NeuhausHE.Non—
m1tochond1ialATPTransport[J].
ElsevierScience,1999’24(2):64—68.
●●
●●●●
●●●●●●●●●●●●●●●●●●●●■●●●■■●●●●●●
●
●
●
●
0f′
咕
●
●
■
●
■
●
■
印
●
■
■
心
●
◇
·
●
●
●
■
◆
●
●
●
切》
〃′
′
|‖□高中生物疑点通
■■■■■■■→■■■■■■■■■■
■■=0■■==■■
0■■
■■
0■■■■已■■■■■■
■■■
■■■■■■■■】
■■■■■■■■■■■=‖■■■■l■0
■■■■】■■■■■
】■■
■■■■■■■■■■■■■■≡■■=■■■
反碰产生的ATP只佣于‖管反碰鹏?
====■■■■■■■■===■■■
■■=■■■■0
■■==0■■■=≡=■■
■■■■■■■■■l■■■■==■■=■===■■■=■■■■=■■
】■■■■■■■■■■■■■■■
■】■■■■■■■■
~
~
~
~
~
~
~
~
~
~
~
~
~
~
』
∧Dp
~
‖
有机物:
糖类
氨基酸
脂肪酸
‖十绿体基质
光合作用过程示意图
082
岔
〃wb`〃
■
第篇分子与细胞
H.RobertHorton的《生物化学原理》
(第5版)认为:
“光
合作用最重要的部分是将光能转化为ATP中化学能的形式。光合
物种利用大量经济的ATP和NADPH来进行所有需要能量的代谢反
应。这包括蛋白质、核酸`碳水化合物和脂类的合成。这就是为
什么光合细菌和藻类是如此成功的生物的原因。
”
事实上’光合作用暗反应利用光反应产生的AIP和NADPH可
合成多种化合物,其中主要产物是糖类’包括单糖(葡萄糖、果
糖)`蔗糖和淀粉’其中蔗糖和淀粉最为普遍。大多数植物的产
物是淀粉’有些只产生葡萄糖和果糖(如洋葱、大蒜)
。
此外’最初产物磷酸丙糖也可进—步与磷酸甘油酸形成脂
肪`脂肪酸`氨基酸等。
另外’叶绿体中含有少量的DNA、RNA,在遗传上具有一定
的独立性°光合作用光反应产生的ATP也可用于叶绿体中的基因
表达过程。
…
\≡
生=文Ⅷ………………
[1]宋正海.对2016年高考江苏卷中_道试题的
●
◆
」思考[J]ˉ中学生物教学’2016’21:59—61.
:
[2]HortonHR’etal.PrinciplesofBiochemistIy
[M|.5thed.
●●●●●●●●●●●●■●●●●●●●●●●●●●●●◆●●●●●●●●●●●●●●●●●●●●●
●●
芭|
0J3
◆
●
●
/爪M吼′
」
|‖□高中生物疑点通
可
■
■
=
=
=
■
■
=
丝粒旧?
==■≡■■==■■■■==■■←
■
j忽辨
姐妹
染色单体
澎
接蛋白
染色体的
着舞粉区
潍
■
嘴磷
着丝点
着丝点微管
中期染色体
着丝点与着丝粒示意图
在电镜用于细胞结构观察之前’着丝点与着丝粒长期被看作同一结构’两者被视
为同义语。在20世纪80年代,科学家从分子生物学角度将看丝点和着丝粒区分开来。
每条染色体DNA上都含有_段特殊的DNA序列’称为着丝粒DNA’着丝粒DNA
装配上着丝粒蛋白、染色单体连接蛋白等蛋白质而组成着丝粒’也就是说着丝粒实质
上是_段特异的染色质。染色体复制后每条姐妹染色单体上都各有—个着丝粒区域’
对应且紧密排列在—起’相互掺杂,彼此通过连接蛋白等蛋白质的黍占合使姐妹染色单
体连接在—起。
0〃
戮
第篇分子与细胞
着丝点也称动粒’是附着于着丝粒上的_种细胞结构’
化学组成主要为蛋白质。在电镜下观察’动粒呈三层圆盘状
结构’依次是内板`中间间隙和外板’内板与着丝粒紧密联
系’实际上着丝粒DNA也伸人动粒内板’成为动粒内板的组
成成分°因此’着丝点与着丝粒结构成分相互穿插,联系紧
密’是_个复合体。动粒外板直接与纺锤体微管连接。细胞
分裂到晚前期时’染色体的着丝粒两侧分别出现动粒’每条
染色单体上都有—个’附着在着丝粒外侧。
综上所述’着丝粒与着丝点在形态结构、化学组成上存
在差异,但在功能上却是相互偶联的’着丝粒负责姐妹染色
单体的黍占合’使姐妹染色单体连接在_起’但并不与纺锤丝
直接相连’着丝点负责与纺锤体微管的连接。
■
…
虱
劲
●
】
|
献
文
考
参
要
主
GGG
[1]刘斌对着丝点分裂还是着丝粒分裂的分析[J]生物学教学’2016(12):65.
{2]王永超着丝点的结构与功能[J].生物学通报,1990(3):l—2.
[3]杨新林看丝点蛋曰的研究进展[J].生命的化学1993’13(4):9—11.
[4|吴相钮’陈守良’葛明德.陈阅增普通生物学[M]3版北京:高等教育出版
社’2()09:87.
[5]翟中和’王喜忠’丁明孝细胞生物学[M].4版北京高等教育出版社,2011:253—
254。
[6]丁戈’姚南’吴琼’等.着丝粒结构与功能研究的新进展[J]植物学通报’
2()08,25(2):149—160.
●
●
●
●●●●●●●
Q●●●●■●●●◆●●●●●●●●●●◆●●●●●●●●●■●●●●●●■●●●●●
~ ●●●●●■●●●●●●●●●●●●●●●●●●■●■■■■■
08J
●
●
瓜
q
州′
、巡
″`严
|‖□高中生物疑点逾
‖
‖
I
■■…=≡■■■■■■■■≡■■■■=■■■=■■■=■■■■■■■■=■■■≡===■■■■■■■■■■■■■■■■■■■
丝点分裂迹是着丝粒分裂?
舌
乖
裂|帛
~
~~
~
口
』
月
闪
』
‖【
‖
』
‖
Ⅷ
Ⅻ
∏
=
=
=
=l■■
■■■■■==■■■==■■■■=■■■■■■~■■■乙■■■■=■■『
■■■
■■■■■■■=~■■==■■=■■■■
蛔
h■~
≈
用
低
核仁
从
0≈ˉ
后期
中期
细胞有丝分裂中期与后期示意图
当细胞分裂进行到后期时’两条
姐妹染色单体上相互黍占合的着丝粒区
域分裂’两条单体相互分离’成为彼
此独立的_对染色体’附着在着丝点
上的纺锤体微管开始缩短’由于着丝
点内板是与着丝粒紧密联系的’因而
纺锤体微管在牵弓|着丝点运动的同时
也就牵引着这两条染色体运动而移向
细胞两极。由此可见,两条染色单体
着丝粒区域相互黍占成_个整体’在分
裂后期是着丝粒分裂’而非着丝点分
裂。着丝点只是分开。
●●■●●●●●●●●●●●●●●●●●
●●●
}
|主要参考文献
·
●
●
●
●
[1]刘斌.对着丝点分裂还是着丝粒分裂的分析8
●
●
●
●
[J].生物学教学’2()16(12):65ˉ
[2]王永超着丝点的结构与功能[J]生物学通;
报’199()(3):1—2
[3]杨新林.着丝点蛋白的研究进展[J]生命的化
学’l993’13(4):9—11.
[4]吴相锤陈守良’葛明德.陈阅增普通
[M].3版.北京:高等教育出版社,2009:87
陈阅增普通
●
●
生物学
●
●
[5|翟中和’壬喜忠丁明孝细胞生物学[M].4版.北
京:高等教育出版社’2011:253—254
[6]丁戈,姚南吴琼’等看丝粒结构与工
着丝粒结构与功能研究的
新进展[J].植物学通报’2()08’25(2):149—160
■●●●●●●●●●●●●●●●●●●●●●●●●●●●凸■●●●
●●●●●●●●●●●●●●●●●●●●●●●
0『6
划ⅢⅧ厉∏、
′
■
第篇分子与细胞
吓`M7Ⅷ
咖`|′
∏
—
{
纺锤丝『0星射线枉本质止是一Ⅲ事码?
动粒微管
|
■
′
~
〃
/
~
\
_
~
陛
\
′
厂
微管
中心体
~~
中心体与纺锤体示意图
D
纺锤体有两种
动物细胞的纺锤体两端有星状
体’每个星状体的中间有中心体’ 称为有星纺锤体;
高等植物细胞的纺锤体两端没有星状体’呈桶状’称
为无星纺锤体。
组成纺锤体的丝状结构称为纺锤丝’有四种’即
连续丝`染色体丝(又称牵引丝)`中间丝和星体丝
簿~
\、≤~
(也称星射线)。连续丝是由—极与另—极相连的纺
锤丝。染色体丝又称牵引丝’是着丝点与_个极相连
的纺锤丝。中间丝不与两极相连’也不与着丝点相
连’是在后期于两组染色体之间出现的纺锤丝。星体
丝也称星射线’
由两极的中心体射出’它只存在于有
星纺锤体的细胞内。各种纺锤丝都由微管蛋白组成。
动`植物细胞共有的纺锤丝是染色体丝和连续丝’
动物细胞特有的是中间丝和星体丝(即星射线)
。
主要参考文献〗…..…鄂
●
[1]邓过房.对人教版《遗传
与进化》教材中几个问
题的探讨[J].生物学教学’
2015(6):68—69ˉ
[2]翟中和’王喜忠’丁明孝细胞
生物学[M].4版.北京高等教
育出版社’2011.
≡△■●●●●●●●●●●●
●
●
●
●
G
●
●
G
GGGGGGGGGGGI
GGGGGGGGGGGG
0『7
■
●
铅
●
●
‖
■
$
仆
●
●
●
日‖
敬
■
●
●
■
●
◇
G
′′
″
V)
M″`u/∏`.〃叼`则′v、叫Ⅶ″|``M7\′
″
\
`′7
``
M
/
`〃∩〃切、
■
=
|‖□高中生物疑点通
∏
■
■
』
=
=
=
→
脯性染料是脯性的旧?
邻
=.
w
糜
岁《飞. ’≡/|~
|
翱
、
~ F
=
≡
■
V
喇
~
翻
心当
凸■阳
■
;了习
厂′
▲
巴
、
,』白P
■
■
‖
″
『
目
坠
凶
山
F赞
|
『『『.
≡
队
挥…司
b
b
.·…
.烘
、啼=7
-ˉ
≡、■蕊、
■
″
(
\
片
昭
沁
微
曰
止
ˉ
裂
分
胞
细
的
色
染
紫
口
一
月
龙
作为染料必须具备两个条件:—是具有颜色;二是与被染组织有亲
和力’即染料必须具有发色基团与助色基团。其中发色基团能使染料显
示颜色’而助色基团则使染料与被染组织间产生亲和力’它们共同决定
了染料的染色性质°
酸性或碱性染料的界定并非由染料溶液的PH决定’而是由染料中的
助色基团在水中电离后所带的电荷决定’即碱性染料的pH不_定大于7。
—般来说’电离后助色基团带正电荷(阳离子)的染料为碱性染料’
反之则为酸性染料。例如’染料化合物中由硝基(—NO2)、偶氮基(—
N=N—)、乙烯基等形成了发色基团;而由—OH、—SO3H、—COOH等
酸性基团及—NH2、—NHCH3`—N(CH3)2等碱性基团构成了助色基团。
它们的存在使染料物质离子化’极性增强’促进染料与被染组织间发生
作用’产生染色效果。
0JJ
●
●
■
β
\划p
■
第篇分子与细胞
狐飞
…
碱性染料_般不溶于水和酒精。通常能电离有色的阳离
子,如龙胆紫、亚甲基蓝、美蓝等。有色的阳离子可以与细
胞中带负电荷的部分牢固地结合。例如’细胞核中的染色质
(体)内含有脱氧核糖核酸’属酸性物质’可电离出H+’而
使自身带负电荷,所以它能与碱性染料电离出的有色阳离子通
过电荷间的引力作用牢固地结合’从而被染上颜色。
酸性染料—般能溶于水和酒精。通常能电离出有色的阴离
子’如伊红、苦味酸等。有色的阴离子’可以与细胞中带正电
荷的部分牢固地结合。细胞质中某些物质常带正电荷’所以可
与酸性染料中的有色阴离子牢固地结合而被染上颜色。
生物染料的染色作用还与溶液pH的变动有关。例如’蛋
白质含有氨基和竣基’在酸性溶液中’当溶液的pH小于该蛋
白质的等电点时’蛋白质带正电荷’易被酸性染料染色;在碱
性溶液中,当溶液的pH大于该蛋白质的等电点时’蛋白质带
负电荷’容易被碱性染料染色。
′
@
田
≡
丝
主要参考文献h…°.…………………·°
|
碱性染料的着色原理|J]中学生物教
[1|陈纯官
学’2()13(Z1):71—72.
[2]孙甫芳对高中生物学教学中
[J]生物学教学’2()14(2):6()—61
●
几个知识点的分析
00
G
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
◇
●
●
●
■
■
■
■
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
0J9
■
■
●
●
■
■
■
■
◆
●
●
■
■
冉
伯
●
▲
●
毋
●
●
二
●
▲
●
●
●
●
■
G
「′》
吻M```
′
〃
仰ˉ′w`|′
一
阿
…
…
|}□高中生物疑点逾
吊
=
二
础
~
~~
~
~
~
~
~
~
~
田
~
~~
~
~
~
~
~
=
■
■
■
≈
川
已
~
■
″
已
〃
细胞凋亡是指由基因所决定的细胞自动结束生命的过程’
由于细胞凋亡
受到严格的由遗传机制决定的程序性调控’所以也常常称为细胞编程性死亡
(programmedcelldeath’ PCD)。例如’蛙的个体发育过程中,四肢的形成过
程中尾巴消失等现象,都涉及细胞的自动死亡°
细胞坏死是指在种种不利因素下’由于细胞正常代谢活动受损或中断引起的
细胞损伤和死亡。例如’病原体造成的机体细胞的被动死亡。
|
·D‖∧受损
·缺少必要的生长因子或营养
·从基质脱落
≈←
亩
·创伤
坏死
受伤后的细胞
~≡
~一
闷
■
■
■
■
■
↓
|
细胞坏死与细胞凋亡过程示意图
090
`飞
川
盯
=
迎
蛋
第
篇分子与细胞
细胞凋亡和细胞坏死引起的死亡过程在起因范围细胞各部分的形态变化和调节
等方面都有很大的差异(见下表)
。
细胞凋亡和细胞坏死的区别
区别点
细胞凋亡
细胞坏死
起因
生理或病理性
病理性变化或外界因素的剧变,如高温、强压等
范围
单个分散的细胞
大片组织或成群细胞
细胞膜
保持完整,_直到形成凋亡小体
破损’通透性增加
染色质
凝聚在核膜下呈半月状
旱絮状
细胞器
无明显变化’保持完整
肿胀’内质网崩解
细胞体积
固缩变小
肿胀变大
凋亡小体
有,被临近细胞或巨噬细胞吞噬
无’细胞自溶’残余碎片被巨噬细胞吞噬
基因组
DNA
有控制降解,等量断裂
随机降解’无规则降解
蛋白质合成
有
无
调节过程
受基因调控
被动进行
炎症反应
无’不释放细胞内容物
有’释放细胞内容物,有明显的炎症反应
凋亡是—种自然死亡’是—种正常的生理现象’凋亡的本意是花瓣的凋零’凋亡的
细胞被溶酶体相应的水解酶处理掉’几乎不会刺激免疫系统。但是’机体中不正常的细
胞凋亡(如凋亡过度、凋亡不足等)’可能会引发—系列的病症’例如癌症`帕金森综
合征等。而坏死则不_样’坏死会将死细胞的内容物都释放到Ⅲ液中’造成炎症’进而
激发和调动免疫系统来攻击造成坏死的因素’以达到挽救其他细胞的目的。
细胞凋亡和细胞坏死作为细胞死亡的不同
形式’都有其存在的价值’但并非所有的凋亡
对机体都是有利的’也并非所有的坏死都是有
害的。
』=文献`…Ⅷ
[1]何广蕾细胞凋亡与细胞坏死
生物学教学’2015(2):68—69.
细胞凋亡与细胞坏死
●●●●●
[J]
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
GG
G
GGG
GGG
09′
~
~
∩灿M仍′
饥√V
飞四
∏
■■=■■■■■■■=→=
粒?
~~~~~~~~~
=
=
∩||
『
20世纪30年代’Muller发现被X射线打断的果蝇
染色体其末端存在_种特殊序列,该序列与常染色体
相较极不稳定’故根据希腊文将其命名为“端粒’’
(telomere)
。
端粒是存在于真核细胞线状染色体末端的_小段
DNAˉ蛋白质复合体’它与端粒结合蛋白_起构成了
特殊的“帽子”结构’能够维持染色体的完整和控制
细胞分裂周期°
l978年’ Blackburn和Greider等克隆出四膜虫
分裂中期染色体
巴
‖
〗0屯吟
I而不』1
着丝点
端粒
端粒示意图
端粒结构’证明其为串联线性核昔酸序列’组成为
5|ˉGGGGGTT—3|°后来实验又证明了脊椎动物的端粒均含有丰富的鸟膘吟重复序列。
不同物种的端粒DNA组成不同’同_物种的不同细胞之间端粒DNA的长度也不同:
如人类的组织细胞端粒长度为5~l5kb’而精子或早期胚胎端粒的长度为l5~20kb。正常
机体细胞中端粒的长度有_定的限度’而随机体年龄增长和细胞分裂次数的增加’该结
构会不断地缩短。在DNA复制过程中’线性DNA的末尾端粒区域产生_个单链区域’导
致部分端粒DNA丢失°于是’细胞每经过_次分裂’染色体复制—次’大约丢失50~l00
个碱基’端粒便会慢慢缩短’当缩短到_定程度(5~7kb)不能再缩短时’细胞无法继
续分裂’并在形态功能上表现出衰老,最后直至凋亡。
端粒可以保持染色体的稳定性’使DNA分子的末端不会成为DNA修复系统及核酸外
切酶的靶标;端粒可以使真核生物的线
状染色体能顺利进行复制;端粒还像是
细胞分裂的‘‘计数器”
’因此端粒DNA
可能决定细胞的寿命。另有研究发现’
端粒的缩短与机体正常衰老以及各种疾
病都有联系。
彰{主霉…………=
|‖……桅蹄介|则三啊学"
学’2()16(3):78—79.
●
:
8
|2|闰礼’徐萍.关于端粒及端粒酶的几点认
识[J‖中学生物教学’2015(l4):46_47.
●
●
●
●●●●●●●●●●●●●●●●■■●●■■
■●
●●●●
●●●●
●●●●●●
●●●●●
092
●
◆
▲
`角
—
′|
`√``
"`/`』′′
ˉ″ ′`、′`M√‖、
』
v′Ⅷ`
第—篇分子与细胞
』
|
IIIIII
0■■
■■=■■=■■=■■≡‖■■=■=■■≈■■=■■■■■■■=
么是端粒酶?
=■■=■■■■=■■■==■■=■■■■■■■■■■■■■■■■
■■■===
t末端不复制
部分
‖
}||乔|
6|T
3′
N∧模板的端粒酶
具有R
2端粒酶延长了未复制的末端
|C■C□C■A】∧□u≡C口CjC
5
c‖G‖丁
丁《|丁|!列|G蝎|G
G
、
3
端粒酶继续延长末端
3
4。延长的链起模板作用
3′
DN∧聚合酶
滑动钳
端粒酶的作用过程
端粒酶是—种核糖核蛋白’即含有RNA链的逆转录
酶’它以自身所含RNA为模板来合成DNA端粒结构’维
持其长度。通常端粒酶含有约l50个碱基的RNA链’其中
\二
093
●
●
●@
●
●●
◆
●●●
●
●
●◆◆●
{
′|
′V挞刨′M′`q′灿抓`M》/
|‖·高中生物疑点通
包含l个拷贝的端粒重复单位的模板。人的端粒酶由
3部分组成:催化亚基hTERT、RNA模板hTR及相关
结合蛋白TPl/TEPl。hTERT为该酶起调控作用的亚单
位’类似逆转录酶的作用;而hTR作为模板’合成端
粒末端DNA序列及影‖问该酶的活性;结合蛋白与端粒
长度调节和端粒酶活性无关。
在细胞分裂过程中’随着染色体的复制会使端粒
5|末端缩短’而端粒酶可加重复单位到5|末端上,结果
维持端粒_定的长度。端粒酶在多个物种中均存在’
是目前发现的参与端粒长度保持的最重要的酶。肿瘤
细胞和干细胞是具备无限增殖能力的细胞’而体细胞
是有寿命的’端粒长度和端粒酶在其中起重要的调节
G
作用。
/=冀献…………
|
「‖刘晓菊端…粒酶"介「J|咋输学散学
2()16(3):78—79.
●
:
{2]目礼’徐萍关于端粒及端粒酶的几点认识
:
[J].中学生物教学’2()15(14):46_47.
●●●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
β
否
●
094
■
◇
■
捶
′
=
`
‖
)
.
、
@`‖`
/
_
\″
Ⅷ
…
灿
厂
扒′!例』咖
…
■
…
第
篇分子与细胞
粒酶有什么作"?
/模板链
‖
』
l
‖
‖
‖
‖
0
‖
l
l
『
l
3′0
l
GGG∧丁丁GGG∧丁丁GGG∧丁丁GGG∧丁丁GG
丁∧∧〔CC丁∧∧〔C〔丁∧∧〔〔
5′
\后随链
w嚼
G
G
厂
端粒酶具有-段R‖∧模
板’能使其模板链3′端
加上更多的端粒重复序
列’从而使其缩短的3′
端得以恢复
●
÷
◆
DN∧
瑟=墅′聚台酶
/模板链
/端粒重复
3
霍
R
G∧丁丁GGG∧丁丁GGG∧丁丁GG
∧∧CCC丁∧∧〔〔〔丁∧∧〔〔
5′
|撼灌露上”
』
端粒酶的作用
095
q
′
\
_
′
’
〃
一
\
=
』
′
‖
』
=
′
Ⅱ
』
′
′
、
′
\
′
「
仆
‖
■
■
■
■
司
`
′
`
『
′
‖
…
回
■
∏
盘
′
`
″
‖
御
灿
′
|‖■高中生物疑点通
端粒酶像“修复工’’
’它能及时将磨损的端粒修好’让它恢复原长
度’对于干细胞来说,这—特性是必需的;而肿瘤细胞的发生则与端粒
酶活性的不正常增加密切相关。
许多研究表明’端粒的长度`端粒酶的活性与细胞的生物学行为’
包括细胞周期的稳定性、癌变`凋亡、过早衰老’同时还与人类的焦虑
症、痴呆症等疾病有关’研究较为透彻的是与癌症之间的关系°由于在
主要的肿瘤细胞中均发现存在端粒酶活性’因此’在医学研究中’设想
将端粒酶作为抗癌治疗的靶位点。
因在机体中发现了端粒及端粒酶,早期研究显示其与细胞衰老和癌
症等方面有着密切的关系’从而引发了_系列的研究’如Harley等提出
了较为完备的“端粒ˉ端粒酶”假说。而2000年提出的假说认为’随着
细胞不断分裂’越来越多的细胞端粒处于非膨大状态’在此状态下’细
胞会出现衰老、死亡现象。德国弗里茨ˉ李普曼研究所(FLI)的研究人
员通过研究揭示了端粒的‘关键角色”
’其可以“感知’’细胞携带错误
染色体的数量°因此,已有的研究表明’端粒和端粒酶在抑制和促进肿
瘤发生上起着双重的作用。
端粒酶活性的异常变化已成为良性肿瘤转化为恶性肿瘤的预测、
判断`化疗和基因治疗最为普遍的标记物’尤其在临床治疗肿瘤上’
hTERT和hTR被作为主要的靶分子。研究发现’放射线治疗可诱导该酶
活性增高的机制可能是促进酶活性上调控因子的转录。另外—种治疗的
机理是在传统细胞毒疗法的基础上利用其抑制剂来抑制该酶的活性’从
而减缓患者病情。
)主要参考文献‖…..…
●●●●●●●●●●●●●●●●●●●凸●
「1]刘晓菊端粒和端粒酶简介[J]
(3):78—79.
[2]|司礼,徐萍.关于端粒及端粒酶〔
端粒酶的
生物学教学’2()16
●
0■
几点认识[J].中学
生物教学’20l5(14):46ˉ-47
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
◆
●
●
■
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
■
●
●
096
0
Ⅷ′她
∧
孤
铱
、』」
■
第篇分子与细胞
■
■■
p
■≡■■====■■■■■■■■■■■■■■■■■=■■■■■■■■■岂=
该如何预防?
‖|
|||〗是Ⅶ们
儡
~‖
=■■≈■■←…≈=====■■==■■■■■■■■■■■■■
正常
细胞
S〔‖
|
‖
4‖∏‖
癌细胞与正常细胞形态比较
癌基因是指其编码的产物与细胞的肿瘤性转化有关的基因。它以显
性的方式存在’对细胞生长起促进作用’并能促进细胞肿瘤性转化。人
的正常细胞中有转化成癌基因的相关基因。
唾
原癌基因
抑癌基因
\
/
正常
突变或
突变或
正常
沉默
↓
过度活化
↓
嚼嫩
恋圈
癌基因
/
\
缺乏有关蛋曰质,或者
使细胞周期加快的无法阻止癌症的发生
|
刺激细胞分裂的
蛋白质
β日|卜癌症发生的
蛋白质
|
◎
不发生癌症
蛋白质
|
●{】
、…凶
巴」
正常细胞
癌细胞
癌细胞的产生过程
097
●
●
●
●
二
渊
`
′
』
■
』
勋
』
『
』
≥
严
`
则
`
纲
从
Ⅷ
、
=
』
』
`
_
′
严
〃
∧
〃
=
|‖□高中生物疑点逾
癌细胞的生成涉及多种基因和基因以外的变化’多种基因变化的积累才能引
起控制细胞生长和分化的机制紊乱’使细胞的增生失控而癌变。在这些基因的异
常变化中’最重要的是原癌基因和抑癌基因(也称肿瘤抑制基因或抗癌基因)
。
恶性肿瘤的发生’归根到底是因为原癌基因的激活和抑癌基因的功能丧失。
癌基因_般是由原癌基因突变而来’许多原癌基因由于单碱基突变’导致基
因表达产物中单个氨基酸的替换’而丧失其原有的调节功能°原癌基因宛如汽车
的油门踏板’其突变成癌基因好比将油门—踩到底。相反’抑癌基因的功能就像
刹车’当正常细胞变成癌细胞时’它们可能丧失了活性’导致刹车机制的缺陷’
使细胞难以抵御‘疯长’’的倾向°
该如何避免或减少患癌症的风险呢?我们需要从以下方面加以预防:
幽慰/芦
如何避免或减少患癌症的风险
↓』
■
■
□
癣
健康饮食,少吃饱和脂肪
多吃果蔬
避免肥胖:经常进行
|亭止吸烟避免阳光和日光浴床
高强度的锻炼
的紫外线照射
进行癌症的早期
自查和医学检测
使用安全套,以防止
与已知的致癌病毒接触
避免或减少患癌症风险的措施
`
@
主要参考文献0·……….…………
●巴●■●
‖
[1]曹祥华.细胞癌变的“油门与刹车’’[J]生物学
学’2016(7):65—66.
[2]翟中和.细胞生物学[M]北京高等教育出
社,2000:423_427.
高等教育出
教
版
●
=
迈
●
●
●
●
●
I
[3]罗伯特.温伯格细胞的叛逆者[M].郭起浩’译
●
上海:上海科学技术出版社,1999:27—55
\二
[4]艾伯茨.细胞生物学精要[M].丁小燕译.北京:科
●
学出版社,20l2:704~714
●
■
●
●
●
●
■
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
09J
●
●
●
●
●
●
■
q■
|灿她|隧川p
第—篇分子与细胞
〃
∩
′|
■匹…厂
■诌
←
■■≈≡■■=■■■■宇■■■■■■■■■
■■■===■■■■■■■■■■『
■■■■■■=■■■■■■=■■■…■■
q■p■■■■
0■■
■■■
■■■■■
】■■
0■■
囤晕蛆囤感渔癌基固唾?_
生长因子受体
细胞质酪氨酸专_性
蛋白激酶:
″ˉ旧s
乙
细胞质丝氨酸/苏氨酸专_性
蛋白激酶:
旧/
|‖!{||
||脱‖|
细胞质类固醇型
生长因子受体:
月f
\
|
核内蛋白
′nγ℃
Dc/
″D″
癌基因的主要类别
癌基因_般是由原癌基因突变而来’许多原癌基因由于单碱基
突变’导致基因表达产物中单个氨基酸的替换’而丧失其原有的调
节功能。原癌基因的激活方式多种多样’包括基因本身或其调控区
发生变异’导致基因的过量表达’或表达产物活性增强’使细胞过
度增殖,形成肿瘤。
099
!M『`〃/『『灌√v`u′wM′}M″`u/v`灿′`u′v、"尸
〖」/『Ⅵ山吻\√
|‖□高中生物疑点通
‖.点突变
′αs基因家族均以点突变为主’例如’膀恍癌细胞中克隆出来的c—HJ-加s
基因与正常细胞的相比仅有一个核昔酸的差异。
2DNA重排
原癌基因在正常情况下表达水平较低’但当发生染色体的易位或倒位
时’处于活跃转录基因强启动子的下游’而产生过度表达°
染色体易位的主要原因是人类染色体存在着脆性位点’而染色体重排的
断裂热点多位于脆性位点。恶性肿瘤的染色体重排是获得性的体细胞变化’
而不是发生在生殖细胞内的变化。
3插入激活
某些不含v—o″c(病毒癌基因)的弱转化逆转录病毒,其前病毒DNA插
人宿主DNA中’引起插人突变’导致基因过度表达。
4墓因扩增
在某些造Ⅲ系统恶性肿瘤中,癌基因扩增是_个极常见的特征’例如’
前髓细胞性白Ⅲ病细胞系和这类病人的白lⅢ病细胞中,
cˉm〕′c扩增8~32倍。
5.原癌墓因的低甲墓化
在致癌物质的作用下’使原
癌基因的甲基化程度降低而导致
癌症’这是因为致癌物质降低甲
基化酶的活性。
|主要参考文献〗.…………….……
●●●●●
q}
[1]曹祥华细胞癌变的“油门与刹车,,[J]
学’2016(7):65—66.
生物学教
[2]翟中和.细胞生物学[M].北京:高等教育出版
社’2000:423—427
●
[3]罗伯特.温伯格.细胞的叛逆者[M]郭起浩’译上
●
海:上海科学技术出版社’1999:27—55
[4|艾伯茨.细胞生物学精要[M].丁小燕
学出版社,2012:704_714.
●
’译.北京:科
●
●
●
●
●●QQ●●●●●●◆●●●●●■●●■●●●●●●●●●●●●●●●
●
●●G●●●●●●●●●●●■●
′00
′{
叭、
`
ˉ
′
′ ′」d`、M`
叭\
′W `
=
`
≡
第—篇分子与细胞
可
→=■■
0■■==≈≈…=■■■■=■■■
■■=■■■■■=■■■■…≈■空=■■■■■■■■=■■≈=0■■由0■■■■==■■≈■■■■=≈≈字~q■■
■■■■■■■■■■■=
漏毒歇癌困子如侧诱导绷胞癌蛮?
■==■■■■==■■■===~==→=======■≈=■罕■■■■■■■■■■■■■■■■■■■■■■=■■=■■====■■■
■■■■=■h■■■■■■■■■■■■■■■■■■
鸡染色体中含有6个内含子的酪氨酸激酶基因
飞
二
2))
3
))
4
))
5
))6
无论是DNA肿瘤病
毒还是RNA肿瘤病毒’其
致癌作用都是病毒的遗传
物质与细胞遗传物质相互
作用的结果。在很多情况
下’肿瘤诱发或细胞恶性
转化仅与病毒基因组的_
个或几个基因有关。
不同肿瘤病毒因为其
基因组结构不同’它们的
致癌方式亦有所区别’主
要有以下两种情况:
—类是病毒所携带的
癌基因发生作用的结果;
另_类是病毒的基因
组整合到细胞的原癌基因
附近’病毒基因组中的启
动子及增强子使细胞的原
癌基因激活并异常表达’
是病毒基因组顺式作用于
原癌基因的结果。
R‖∧转录本
l庭赣最“
()
6′°
)
0‖∧拷贝
h
无癌基因(∩∧γ—0)的反转录病毒基因
C
\
|
/
\
|
/
/
\
g日g」pO/
)e门V
g日g」pO/
)e门V
g日g」pO/
)e门V
D○/
)
e门V
e门γ
一
|
包膜蛋白
_)
()
)
gag
)
βo/
)
e″v
)
s′°
)
劳斯肉瘤病毒(∩Sγ)基因组
鸡的基因如何进入RSV基因组
)主要参考文献l….………………..….
●
●
[1]曹祥华.细胞癌变的“油门与刹车,’[J]生物学教
学’2016(7〉:65—66ˉ
[2]翟中和.细胞生物学[M]北京:高等教育出版
社’2000:423—427.
[3]罗伯特.温伯格.细胞的叛逆者[M]郭起浩’译.
上海:上海科学技术出版社’1999:27—55.
[4]艾伯茨.细胞生物学精要[M].丁小燕’译北京:科
学出版社’2012:704—714.
■●●●■●●●●■●●●●●●G■●●●
▲=●●●●●●●●●●●●■』
■『==.d
气
●
■
●
甲
●
●
●
●
G
GGGGGGGGGGGGGGGGG
′0′
G
「′
』
帅
、……
协\
瓜
亚
|‖口高中生物疑点通
=乙■■■■■=≈■■=■■■■■===■■■=■■
0■■~■■
0■■
■■=■
常见的有"‖些?
~
=■■■■=■■■====l■0=0■b
■■■■≡■■■=■■■■=≈■■==]■∩
p53
2激活D‖∧修复
‖.细胞周期在G|
检验点中止
系统
细胞周期在G↑
检验点阻断
阻止0‖∧的复制
抑癌基因p53调控细胞周期
′02
切
闪
雾
第—篇分子与细‖包
抑癌基因的产物能抑制细胞增殖’促进细胞分化
和抑制细胞迁移,起负调控作用。因此’抑癌基因具
有抑制细胞增殖和肿瘤发生的作用。
位于染色体l3Pl4的Rb基因是第—个被发现和鉴
定的抑癌基因’它是在研究罕见的儿童视网膜母细胞
瘤的过程中被发现的°后来在成人的某些常见肿瘤,
如膀肮癌、乳腺癌及肺癌中也发现有Rb基因的丧失或
失活°
随着对肿瘤细胞研究的深人’人们发现了更多的
抑癌基因’如随后被发现的抑癌基因p53°在人类的大
多数癌症中’如白Ⅲ病`淋巴瘤`肉瘤、脑瘤`乳腺
癌`胃肠道癌及肺癌等患者中p53常有失活现象。还有
与乳腺癌发生有密切关系的BRCd/和BRG42;与胰腺
癌有关的DPC4;与肾细胞癌有关的J/HL等抑癌基因均
已被发现°
在许多肿瘤中均发现抑癌基因的两个等位基因缺
失或失活’失去细胞增生的抑制调节因素’促进了肿
■
』
■
■
瘤细胞的转化和
●●■●●●●●●●●●●●●●●●●●●●●●●●
异常增生。
Ⅷ
主要参考文
[l]曹祥华.细胞癌变的“油门与刹车’’[J]生物学教
学,2016’(7):65—66.
[2]翟中和细胞生物学[M].北京:高等教育出版
社’20()():423_427.
[3]罗伯特。温伯格.细胞的叛逆者|M]郭起浩’
译上海:上海科学技术出版社’l999:27—55.
[4]艾伯茨.B细胞生物学精要[M].丁小燕’译北
京:科学出版社’2012:7()4—714.
●
●
●
●
●
●●●●●●●●●■●●●●●●●O●●●●●e●●●●●●●●●●●●●●■■●●●●●●●●●●●●●●●
●
●
′03
』′{如′
`
`、
一
`^〃『Ⅷ吻√…′′√
↑(
‖
Mr|
`\
、哑
巡′\√v
她′Ⅵ
■
|‖·高中生物疑点逾
问位素标记就是敝射性问位素标记码?
18O
16O
同位素是具有相同原子序数但质量数不同的核素。同_元素的不
同核素之间互称为同位素。例如’氢有|H、2H、3H三种核素互称同位
素。同位素可分为稳定性同位素和放射性同位素两类’稳定性同位素
是原子核结构稳定’不会发生衰变的同位素。放射性同位素是原子核
不稳定会自发衰变的同位素。
同位素示踪法即同位素标记法’包括稳定性同位素示踪法和放射
性同位素示踪法。放射性同位素示踪法在实践中运用较广’因为其
灵敏度高’且容易测定。常用的放射性同位素有3H`
l4C、
32P、
35S、
l3|I`42K等。但如对孕妇及儿童某些疾病诊断中’要将食物或药物成分
用示踪剂标记’就不能使用具有毒副作用的放射性同位素’而只能使
用对人体无害、使用安全的稳定性同位素。常用的稳定同位素有2H、
|3C`|5N和l8O等。高中生物学教材中涉及的鲁
宾和卡门研究光合作用氧气来源的实验中’
就是用|8O分别标记CO2和H2O。还有梅塞尔森
做的半保留复制实验中’是用|5N标记亲代的
DNA分子。
」主霉…0……
‖
●●●●
同位素在生物学
[1]周闽湘袁章军
生物学教学’2()08
中的应用[J]
(4):71_73.
●
●
●
GGG
●
●
■
●
●
●
●
■
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
′04
I
G
◎R型菌是如何转化为S型菌的?S型能转化成R
型吗?
/1o6
◎S型菌能否由R型菌突变产生?
/1o8
◎S型细菌的多糖类荚膜是否能直接致病?
/11O
◎为何S型菌的DNA经高温处理后仍具有遗传效
应?
/111
◎自然界有哪些常见的病毒类型?
/112
◎噬菌体的遗传物质都是DNA吗?
/114
◎组成病毒的蛋白质是否只有衣壳蛋白一种类
型?
/115
◎噬菌体是如何繁殖的?
/116
◎病毒侵染过程蛋白质会进人吗?
/118
◎病毒增殖过程遗传物质`蛋白质如何合成?
/119
◎形成核酸的缩合反应是怎样进行的?
/122
◎什么是氢键?
/123
◎基因复制`表达过程所需能量是否都来自
ATP?
/124
◎如何理解细胞质基因的半自主自我复制?
/126
◎真核生物基因与原核生物基因有何不同?
/I28
◎转录需要解旋酶吗?
/129
◎转录的产物是否只有mRNA?
/132
◎为什么DNA片段只有一条链可转录?
/135
◎_个基因只能转录出—种mRNA吗?
/137
◎tRNA如何与对应的氨基酸结合?
/138
◎tRNA是6l种吗?
/】39
◎多肮合成是否_定需要起始密码子?
/14o
◎逆转录酶是DNA聚合酶吗?
/142
◎逆转录酶仅存在于逆转录病毒中吗?
/143
◎逆转录酶是随RNA一起注人宿主细胞还是后来
合成的?
/144
◎减数第_次分裂前的间期是减数分裂间期吗?
/145
◎什么是假说—演绎法?
/146
◎杂合子(Aa)中隐性基因是否表达?
/147
◎生物的性别到底由什么决定?
/148
◎人类的SRY基因是怎样_个基因?
/151
◎果蝇的性别是由什么决定的?
/153
◎什么是从性遗传?
/154
◎基因突变与性状改变有何区别?
/155
◎基因突变只在分裂间期发生吗?
/157
第
二
篇
遗
d
◎紫外线诱发基因突变的机理是什么?
/159
◎基因突变是原核生物唯_的变异来源吗?
/161
◎突变率和突变频率是同_个概念吗?
/162
◎囊性纤维病是一种怎样的病?
/163
◎如何区分易位与交叉互换?
/164
◎人类性染色体数目异常有哪些类型?各有什么
表现?
/165
◎多倍体是否均可育?
/167
◎四分体与四倍体有何不同?
/168
◎三体与三倍体有何区别?
/169
◎秋水仙素诱导染色体数目加倍的机制是什么?
/17o
◎培育三倍体无子西瓜用二倍体花粉刺激有什么
用?
/171
◎培育无子西瓜为什么用四倍体做母本?
/172
◎怎样理解单倍体的高度不育?
/173
◎植物杂交育种年限如何确定?
/175
◎“症,’与‘综合征,,有什么区别?
/176
◎生殖隔离产生的机制是什么?
/177
◎
◎
>翻
|‖■高中生物疑点通
】
p
~~~~~~~~~~~~~~
~~~~
~~~~~~
~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~
型菌是如侧转化狗S型菌的?S型能转化威R型‖q?
~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~
◎日pS
(
D‖∧
荚膜
加热杀死
_
释放ca伏片段
○
致病的
S(光滑型)菌
裂
传
分
胞
细
组
重
不致病的
R(粗糙型)菌
携带c曰ps的D‖∧片段进入R菌
S菌
R型菌转化为S型菌过程示意图
肺炎双球菌的转化(R型菌转化为S型菌)是同种细菌
不同品系间的转化’具体过程如下:处于特定生长期的R型
菌分泌感受态因子’诱导产生感受态特异蛋白质(细胞壁自
溶素)’细胞壁局部缺失’使细胞表面的膜结合蛋白和核酸
酶暴露出来; S型菌的DNA与R型菌的膜结合蛋白相结合’ R
型菌会释放限制性核酸内切酶将S型菌的DNA降解为较短的
DNA片段’然后另—些酶将S型菌的DNA双链打开;此后_
′06
山
●
●
●
●
●
卜
■
■
、趣′`
^^′『`
队
`
仰唯测′`
、
■
第
篇遗传与进化
条链被降解’另_条链进人细胞与R型DNA同源区段配对’
切除并替换相应的单链片段形成杂合区段;受体细菌分裂
时’随着DNA的复制杂合区段也随之复制并分离’后代就会
出现R型菌和S型菌。
可见’转化是S型菌将控制多糖类荚膜合成的相关基因
整合到R型菌的DNA分子上并表达的过程’本质上属于基因
重组。DNA在自然状态下’转化的频率很低’形成的S型菌
数量较少’但少量的S型菌在小鼠体内会迅速繁殖从而使小
鼠患病死亡。
若将R型菌的DNA与S菌混合培养’能否使S型菌转化为
R型菌?由于S型菌具有多糖类荚膜’
自然状态下不会出现
感受态’故将R型菌的DNA与S型菌混合培养’不会使S型菌
转化为R型菌。
主要参考文献可…….………………………………………..
●●■
▲
■
0
[1]目立’武辉.对‘‘肺炎双球菌转化实验’’的几个疑难问题的解答[J]生物学教
学’2016(ll):67_68.
[2]WatsonJD’etalMolecularBiologyoftheGene[M].7thed.BeUjamin—Cumm1ngs
PubllshmgCompany,2013.
[3|周德庆微生物学教程[M].2版北京:高等教育出版社2002:22—23’224—226.
[4]张硼翁‖乞.艾弗里转化实验引发的思考[J].广西民族大学学报:自然科学
版,20l3’19(3):31—36.
[5|李辉辉.考证“DNA是主要遗传物质’,的实验逻辑|J]生物学通报ˉ
2()08,43(2):24—25.
●
●
●
●
●
●
●
●
●
●
●
●
G
G
GGG
GGGGGGGGGGG
GGGGGGGGG
GGG
GG
G
●●●●●●●●●●●●●●●●●●■●●●●●●Q●●●■●●●
′07
■
●●●●
●●
●
●●
●
●●
●■●
●●●●■
●
●●●●
●●●●●
》
●
●
●
●
叼
例\
瓜
侧抑`筐帆
叼
′\h
}抓
|‖口高中生物疑点通
■
~~
菌能否由R型菌突蛮产生?
0
■■■■==■■■■■■=■■===■■==■■
===≈■~→【
■
~~
尸
凹
簿渺
●
豁
″
●
撼
●
怕
瞬
蹦
∏
Ⅱ
同
\
瓣
峪
榔
翱
可
ˉ
●
蚀
婶
u
坠ˉ彭
出
』幸澎
格里菲思体内转化实验所用的两种肺炎双球菌
在格里菲思“体内转化”实验的第四组中’从小鼠体内分离的S型
菌—定是由R型菌转化产生的吗?能否由R型菌突变产生呢?
根据荚膜多糖抗原特性的不同, S型菌可分为多种类型’其中I~Ⅲ
型(SI
`SⅢS‖)致病力较强’
Ⅲ型最强° SLSⅡS‖‖的相应
突变类型为RI `RlRI‖。
在格里菲思的第四组实验中’是用SⅡ型菌的突变类型(RⅡ)与
高温杀死的S‖型菌混合共同注射到小鼠体内’结果从死亡的小鼠体内
分离出的S型菌全为S‖型菌。若是发生回复突变应该能从死亡的小鼠体
内分离出SⅡ型菌。因此’产生的S型菌是由RⅡ菌转化而来而非突变产
生的。
′0J
…勤h′`尸抓
硒(仰
‖
℃
第二篇遗传与进化
发现活的SI‖『型菌
活的SⅢ型菌
匡>
荚膜
小鼠死亡
啼
加热杀死的S‖∏型菌
S
吐\<二ˉ出
S
活的∩]‖型菌
无荚膜
小鼠存活
发现活的SⅢ型菌
加热杀死的SIII型菌
+活的∩‖‖型菌
匡>
小鼠死亡
口
王
卡
汞
仆
过
验
、
买
田
心
←
仁
厂
→
刮
司
里
格
)主要参考文献‖……………………….
●
●
[l]闰立’武辉对“肺炎双球菌转化实验’,的几个疑难
问题的解答[J].生物学教学’20l6(1l):67—68.
[2|周德庆.微生物学教程[M].2版.北京:高等教育出版
社’20()2:22_23’224—226.
[3]张硼翁屹.艾弗里转化实验引发的思考[J].广西民
族大学学报自然科学版2()13’19(3):31—36`
[4]李辉辉考证“DNA是主要遗传物质,’的实验逻辑
[J]生物学通报2()()8’43(2);24_25′
0
●
●
●
●
G
G
G
●
●
◆
G
IGGGGGGGGG
●●●●·●●●●●●●●●■●●●●●●●●●●●●●■T■·●■■
■
●
′09
●
●
●
◆
$
●
●
甜
■
●
●
●
●
■
●
邀′
嘶
√
\
戏
…
…
′
雁
魁′`
扒、铡′叼\
、
■■■■■■■■■■■■■■■■■■■■■■乙■■■■=■■■■=■=■■■■
l■0
■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■■乙■■■■■■■■■■■■■■■■=■■■■■■■■■■=■■■■■→■■宇■■
型绷菌的多糖类荚膜是否能直援致痛?
■■■
】■■■■■■■■■■■~■≡■■■■==■■■■■■■=≡■■■■■■■■■■■■■■■=■■■■=■■■■
0■■■■■■‖≈■■■■■■■■■■■■■■■≡■■■■■■■■■■■■■■=‖■■■■■■■■=■■■■邑■■
「
‖
疗
=
O
d
曲
沮
■
|
噬ˉ
~
—
■
S型菌电镜照片
荚膜是某些细菌的特殊结构’是位于细胞壁外的—层厚度不定的透明胶状物质’主
要由水、多糖或多肤组成°
荚膜主要有以下作用:防止细菌变干’吸附阳离子’防止噬菌体的侵袭’防止吞噬
细胞的吞噬和消化。
S型菌的多糖类荚膜能够使S型菌抵抗吞噬细胞的吞噬和体液中杀菌物质的作用,从
而在小鼠体内存活并迅速繁殖
而导致小鼠患病死亡。R型菌
没有多糖类荚膜’易被吞噬细
胞和体液中的杀菌物质清除,
不会导致小鼠患病。
故S型菌的致病性并非直接
由多糖类荚膜弓|起’而是由于
多糖类荚膜的保护作用使S型菌
在体内大量繁殖所致。
∏
□
』
GGGG
GGGIGIGGGGGGGGGGGGGGGGGGGG
主要参考文献
●
●
●
[1]问立武辉.对“肺炎双球菌转化实验,’的几个疑难问
题的解答[J].生物学教学,2〔)16(l1):67—68
高等教育出版
[2]周德庆微生物学教程[M].2版北京
社’2()()2:22—23,224—226.
屹.艾弗里转化实验引发的思考[J].广西民族
[3]张硼翁
大学学报自然科学版2013’19(3):31—36
[4]李辉辉考证“DNA是主要遗传物质’’的实验逻辑[J]
|
生物学通报’20()8’43(2):24—25
●●●●●●●●●●●●●●●■●●
●●●
●●●●●●●●●●●●●●●●■●●
′′0
●
●
№删′`则′陆硼}`)‖皇\撕. `「辨`%)醚潞』≡`辨`
.二……嚼
瘟延哩鄙靡瑟蹦顾)
!′
《圈′v`″Ⅵ
、
菌株的菌落细菌类型
类型
菌株的菌落细菌类型
效果
锄
荚膜
一`
↓
`勤
]S菌
死亡
效果
无荚膜
铡
—一9d0
\吼一一
存活
SⅢo◎th(S型)
活的S菌
R◎ug∩(R型)
活的∩菌
\
‖
』
‖
^
凹
/
〗
\
心
`
/
日
夕
「
\
巳
巳
巳
$
·
·
№
巳
活的R菌
魄
瘫
一
…
死
撼
瘫
·
′
头
而
|龋菌靴魁瞧死亡
和活的R型细菌
000γ;
从死亡
分离出
和活的
从死亡
分离出
00
死的S菌
(d〉
格里菲思实验过程示意图
蛋白质经高温处理后空间结构会被破坏而变性失活’该过程不可逆。
高温能断裂DNA双链间的氢键使其解旋为单链’但并不破坏DNA的_级结构’这
_过程是可逆过程,当温度降低时’碱基可以再度互补配对形成氢键’恢复原有的双
链结构。
D‖∧双螺旋
、
主要参考文献
立,武辉对“肺炎双球菌转化实验’’的几个疑难
|1|闰立’武辉对“肺炎双球菌转化实验’’的几州
问题的解答[J].生物学教学’20]6(11):67—68
2版北京:高等教育出
[2|周德庆.微生物学教程{M]. 2版北京:高等弓
版社’2()()2:22—23’224—226.
[3]张硼翁屹艾弗里转化实验弓|发的思考[J].)
族大学学报:自然科学版’2013’19(3):31—36
思考[J|广西民
DNA的变性与复性过程示意图
●
考证“DNA是主要遗传物质,’的实验逻辑
[4]李辉辉.考证“DNA是主要遗传牧
[J].生物学通报’2()08’43(2):24—25
●
所以’加热杀死的S型菌的DNA仍
具有遗传效应。
′′′
■●●●●●●●●
●●●●●●●●●●●●●●●●●●●●●●●●●●●●■●
●●
●
●
御』
′〉抓
[\`
御〃′
w峨硒
∏
|‖·高中生物疑点逾
酬`
瓜
仰
■
ˉ
尸
=|■■=■■====■■■■h==■■■■■■■■■■■■■=■■■■■■■■■■=■■■■■■=■■■→■■■■=■■=■】■■=
然界有删‖些常见的病毒类型?
==■■■==■≡→==■■■■■■■■■■■■~≡==■■■■■■=■■■■■■■====≈=■■=■■=■■==■■
『-偶数噬菌体(飞船;双链D‖∧)
烟草花叶病毒(丝状;单链N‖∧)
喷
‘
`
▲
『
电『
′
≈
翻
…
F只.
弘
飞■y
‖
‖
50∩∏l
/Z
′
Z
痘病毒(椭圆形『双链D‖∧)
疤疹病毒(二十面体;双链0N∧)
轮状病毒(球形;双链∩‖∧)
削
‖
常见的病ˉ毒类型
′′2
◆
●
●
●
●
●
ˉ饥删嘶}帆`
′V》`
』′
陋|′硼′`′′`
″蜘`搬
篇遗传与进化
第
根据病毒核酸的类型和如何转录mRNA’将病毒分为6种类型:双链
DNA病毒、单链DNA病毒、双链RNA病毒、正链RNA(+RNA)病毒、负
链RNA(—RNA)病毒和逆转录病毒(见下表)
°
病毒核酸的复制类型及旦代表
举例
病毒类型
所携带的酶
腺病毒`痘病毒等
双链DNA病毒
DNA病毒
单链DNA病毒
细胞小DNA病毒等
呼肠孤病毒等
双链RNA病毒
RNA复制酶
脊髓灰质炎病毒`
冠状病毒等
正链RNA病毒
RNA病毒
RNA复制酶
狂犬病毒等
负链RNA病毒
HIV病毒等
逆转录病毒
逆转录酶
注: RNA复制酶又称为转录酶或RNA聚合酶。
主要参考文献Ⅷ……………………….………………
●●
~
~
[1]田秀丽DNA病毒和RNA病毒增殖过程简介[J]生物学教学,2015
(8):66—68
[2]吴相钮.普通生物学[M].北京:高等教盲出版社’2005:355_356.
[3|戚中田医学微生物学[M].北京:科学出版社’2005:267—270.
[4]周德庆微生物学教程[M]北京:高等教育出版社,2011:73—75.
[5]蔡信之黄君红微生物学[M]北京高等教育出版社’200470—71.
[6]王镜岩,朱圣庚徐长发.生物化学:下册[M].3版.北京:高等教育出版
社’2()()2:491—493.
[7]翟中和’王喜中,丁明孝ˉ细胞生物学[M]北京:高等教育出版社’
2()()7:43—46
●
●
●
■
●
●
G
G
●
●
●
●
●
●
●
●
●
●
■
●
●
●
·
●
●
·
●
●
●
●
●
●
●
●
●
●
●
●
●
▲
●
■
●
●
●
●
●
●
●
●
·
●
●
●
●
■
■
●
●
●
●
●
●
∏
●
几
∏
●
●
●
√
…
丁
●
′
●
』
●
八
●`
●
▲
●
●
●
●
●
●
●
●
■
●
●
●
′′3
臼
●
●
●
●
●
呐
严≤
|‖·高中生物疑点通
▲
菌体的谴传糊质都是DNA旧?
根据核酸的种类和特点可将噬菌体分为四类:单链RNA
(ssRNA)、双链RNA
(dsRNA)、单链DNA(ssDNA)和双链DNA(dsDNA)°此外’噬菌体的核酸还有
环状和链状之分。
噬菌体
宿主细胞
形态
基因组结构墨
和宿主细胞的关系
大肠杆菌
ˉ「4,
丁|_丁7
复合物
裂解型
dsD‖∧
大肠杆菌
M|3,
↑d
丝状
挤出细胞
SS□‖∧
大肠杆菌
↑×]74
多面体
裂解型
ssO‖∧
大肠杆菌
[日|丁)bda
(
∧
)
复合物
潜伏型或裂解型
dsO川∧
大肠杆菌
MS2‖
Ob
多面体
裂解型
SS∩川∧
白喉杆菌
Bet日
(b)
多面体
潜伏型;编码白喉毒素
dsD‖∧
暑dS,双链SS,单链◎
可见’噬菌体也有多种类型’人教版高中生物必修2教材中的T2噬菌体遗传物质是
DNA’其他类型的噬菌体则不—定。
●●●●●●■●●●●●●●●●●●●●●●●●●
●
主要参
■■●●
●
[1]刘学廷噬菌体简介[J].生啪
78.
[2]刘明河.细菌病毒_噬菌
物学杂志20()2’22(4):56.
[3]周德庆微生物学教程[M]
版社’2()02:77—78.
勿学教学’2016(4):76
●
体的应用情况|J|.微生
●
2版.北京:高等教育出
●●●●●●●●●●●■
●
●●●●●●●●●●$●●●●●●●●●●●●●●●●●●●■●●●●●
‖
′′4
飞
\
赋
″
洲
γ
镰
吨
、
化
)
\
~~
“
沂
第
』′哦陶趴
′〃\′Ⅵ
严
隐硼V‰》
娜
愈√W`
℃
删铆
■
咸病毒的蛋臼质是否只有衣壳蛋臼一种类型?
(两条相
HIV结构示意图
组成病毒的蛋白质并非只有_种类型’主要有以下几类:
(
↑)衣壳蛋白:病毒基本结构中的衣壳是由衣壳粒组成的’衣壳粒是由_条或
多条肤链折叠形成的蛋白质’能够保护病毒的核酸’决定病毒的抗原特异性。简单的病
毒只有—种衣壳蛋白’较复杂的可由多种蛋白构成。
(2)囊膜蛋臼:有些病毒还有囊膜’囊膜上也具有相应蛋白’襄膜蛋白在病毒
吸附过程中’与宿主细胞表面受体相结合’进行病毒的侵人’如H5Nl病毒表面的血凝素
(简称HA)
。
(3)酶类:病毒虽无完整的酶系统’但常
含有一些特殊的酶’其中_些是参与病毒感染复制
的酶’例如RNA病毒复制时依赖的RNA聚合酶或逆
转录酶。还有_些是参与病毒进人、释放等过程的
酶’例如T4噬菌体利用其溶菌酶打开细菌细胞壁’
从而将其DNA注人宿主细胞。
主要参考文献|
●●●●●●●
「1|吴子强.解析有关病毒知
●
●
学教
识的疑问[J]ˉ生物
学’2()14(8):78.
●
●●●●●●●●●●●●G●●●●●●●●●●●●●●●●●●●●●●●●
■
●
′′5
●
′
侧
·
{
=
铆
曲
聊
铡
狮
′
逾
陶
…
渺
生
中
γ
搞
`}帜
·
菌体是如侧繁殖的?
根据噬菌体侵染宿主细胞后裂不裂解宿主细胞’可将噬菌体分为两类:温和噬菌体
和烈性噬菌体°
温和噬菌体感染细菌后’并不裂解宿主细胞’而是将其自身的DNA整合进宿主细胞
的DNA’并随宿主细胞DNA复制而同步复制。
大多数噬菌体即烈性噬菌体的繁殖过程基本_致’—般分为五个阶段:吸附→侵人
→复制合成→成熟(装配)
→释放。
P
宿主细胞
基因组
→
病毒粒子
陶唯
「
‖.病毒的基因组讲入细胞
黔》∑
』\(′
/
嗽
6在组织和环境中
的病毒会转移至新畦
的宿主细胞
2病毒的基因组转录
并翻译出蛋白质
「
蜀
”
蛋白质
△F/
3病毒基因组复制
…
5.病毒颗粒释放出去
4新的病毒颗粒在宿主细胞内组装
噬菌体增殖过程图
(
{)吸附:当噬菌体与宿主细胞接触后’其尾丝尖端与宿主细胞的特异性受体接
触’触发尾丝展开’进而吸附并固定在宿主细胞表面。
(2)侵入:吸附后’尾管释放少量的溶菌酶破坏细菌的细胞壁’进而打开_个缺
口’然后尾管伸人细胞壁内’把头部的DNA注人宿主细胞内’其蛋白质外壳留在壁外,
不参与增殖过程°
(3)复制合成阶段:此阶段包括DNA的复制和蛋白质的合成’噬菌体DNA进人
宿主细胞后’逐渐控制了细胞的代谢’使细菌的DNA合成停止、酶的合成受到阻抑。然
后噬菌体利用宿主细胞的场所、物质和能量’大量地复制子代噬菌体的DNA和合成噬菌
体的蛋白质’并形成完整的噬菌体颗粒°
′′6
∩
仰
硼』
勿
团
刚
″『`兑:\″
第二篇遗传与进化
第6步:释放
细菌细胞被裂解
并释放许多具有感染能力
的子代噬菌体
·
内部
第5步:
将噬菌
组装成
组装
体的组
为成熟
‖|′
第3步:转录和翻译
噬菌体D‖∧转录形成噬菌体∏R‖∧
再翻译形成噬菌体蛋臼质
4步:噬菌体D‖∧的复带|」
蛋白质的合成
成噬菌体蛋白质外壳`
∧的复制,以及宿主细胞D‖A
分解
噬菌体编码的
蛋臼质
/
\
~
|
|
\
\
\
○一@-@\
了簇—
空的头部含有DN∧的头部
!
|,‖-/^
m+
噬菌体增殖过程图
(4)成熟:噬菌体的成熟过程实质是噬菌体的各部件组装过程’例如’ T4噬菌
体组装过程如下:DNA分子缩合→衣壳包裹DNA形成头部→尾部装配(包括尾板装上尾
管’再装上尾鞘)-→头部与尾部结合→装上尾丝。
(5)释放:
当宿主细胞内的大多数
噬菌体成熟后’
由于溶菌酶水解细胞壁、
脂肪酶水解细胞膜’导致宿主细胞裂解’
释放子代噬菌体(有—些丝状噬菌体以分
泌方式从受染细胞中释放出来’它不裂解
宿主细胞’但宿主细胞的生长速度却大大
降低)
。
|主要参考文献‖………….…
■●●●
[l]刘学廷.噬菌体简介[J].生物学教学’
2016(4):76—78.
[2]刘明河细菌病毒—噬菌体的应用
情况[J]微生物学杂志’2()02’22(4)56.
[3]周德庆.微生物学教程[M]ˉ2版.北京:高
等教育出版社’2002:78≡
●
●
●
●
●
●
■
●
IGGGGGGGGGGGGGGGG
●●●■●G●●●●●●●●●●●■●●●●■●●●●■■=
●
′′7
廷越′『
酗′
币
〃`
〃
、
〃‰》
、
迎』
吐l』
|‖□高中生物疑点通
■
■
■
====■■=■■■■■■■■■■■■=■■■■■■■■■■■■■■■■====■■■■=■■==q■■
公
≡
O
‖
●
■=■■■■■■=■■■■■■=■■■■■■■■■
】■■==■■=■■■■■■■■==■■■■■■■■■■■
巨
噬菌体与宿主细胞结合
■
衣壳
遗传物质
细菌的细胞壁
厂丁丽雨刁
细菌的D‖∧
gp]2o
内核ˉ
噬菌体将DN∧注入宿主细胞
|
』
v
噬菌体基因进行表达,
合成噬菌体组分
|
噬菌体组分组装成噬菌体
§
·
·
宿主细胞裂解,释放子代噬菌体
6释放
HIV增殖过程
噬菌体增殖过程
从HIV和噬菌体侵染细胞的过程
可以看出’病毒侵染过程中蛋白质
进人与否与病毒的种类有关’HIV在
侵染过程中会有蛋白质进人’噬菌
体侵染过程中无蛋白质进人。
●●●●●●●●●●●●
主要参考文献
[1]ScottFreeman’etal
[M].6thed20l7′ ˉ
BiologicalScience
●●●●●●●●●●●●●●●●●●●●●●●■●●●●●●●●●●●●●■●●●●●●●●●●●■■■●
●
′′J
●
硼
`啥硼咐′′例
〃
毗〃`
、
ˉ型…
b
第二篇遗传与进化
■■■■■■=■■■=■■■■■==■■==■=■■■■■=≡===≈≈=■■■=■■■■=■■■=■■■■■=■■■≡=■■≈■=■■■■■■=■■■■■
、蛋臼质如侧台
程谴传糊
O
…
…
=
■
■
=
刁
I
■
Ⅲ
区
【
G
=■■■■■=■■■=■■■■=■■=□■■■■■■■■■0■0=■■■■■邑■呻=■■■■■■■■■■■■■■■■■■■■■■■■■■=■■■=■=■■■■=■■■■■■
■■■■
o吸附
病毒吸附
……
ˉ
D‖∧
\霉艘
o释放
释放病毒
》
民
ˉ
成熟
子代病毒
组装并成熟
~
专录
形成编码“初期,,蛋臼质
自咖∩‖∧
DNA病毒增殖过程
宿主细胞细胞质0
细胞质膜
@吸附
病毒通过刺突与细胞膜表面
相应受体特异性结合而吸附
在细胞表面
@@侵入;
病毒通过细胞胞吞形成的囊
泡进入细胞’之后去掉包膜
而裸露,从而游离的病毒
R‖∧进入宿主细胞细胞质
可
细胞核
圆
尸
0
(卡吧∩"∧
@台成:进行复制和蛋白质合成
在病毒基因组的控制下,细胞开始合成
本组成成分:
R‖∧分子、衣壳
@组装:
病毒的刺突插入宿主细胞
细胞膜形成病毒包膜,
核壳体由∩‖∧和衣壳蛋白
组成
、簿
RNA病毒增殖过程
′′9
|‖口高中生物疑点通
γN`盂靶三了x了二·
—∩N∧
正链R‖∧病毒(如脊髓灰质炎病毒)
狮\`泌
\/`/`-岳\′\′\->
—∩"A\\/v\→\^/\→.
+∩N∧
_∩N∧
负链R‖∧病毒(如昌||釉液病毒)
W`硼万F巴
…≡≥
±∩‖∧
±∩N∧
双链R‖∧病毒(如呼肠孤病毒)
燃逊簿
\/\′\二ˉ饵巨`/`/\巨ˉ蜜巨、〃O′Q坚/
\
+∩‖∧
—DN∧
±D‖∧
逆转景病毒(如‖|γ)
四
各种RNA病毒增殖过程图
根据病毒所含核酸的性质和状态不同’可将病毒分为以下六类’
其增殖过程中有着不同的方式:
(
↑)双链DN∧病毒:此类病毒的DNA既可以双链为模板复制
出子代病毒DNA;又可以ˉDNA(ˉDNA或ˉRNA表示其核昔酸序列与
mRNA序列互补)链为模板转录成mRNA’进而翻译成病毒蛋白质’
如T4噬菌体、乙肝病毒等。
(2)单链+DN∧病毒(+DNA或+RNA是指其核昔酸序列与
mRNA序列—致):此类病毒先由+DNA为模板合成ˉDNA,组成双链
±DNA’通过复制合成大量子代±DNA。然后再以新合成的ˉDNA为
模板转录mRNA’翻译蛋白质’如(p×l74病毒等°
(3)双链∩‖∧病毒:以双链RNA为模板进行不对称转录’先
合成正链RNA(+RNA)’再以+RNA为模板合成ˉRNA’形成双链
RNA分子;以+RNA为模板翻译出病毒复制酶及其他蛋白质;蛋白质
与子代双链RNA组装成新的病毒颗粒’如‖乎肠孤病毒。
~ ~
@|
』
|
′20
~
~
●
●
●
·
●
、巡^′vⅡ翅′Ⅵ
慈撼′》峨7Ⅱ
〃‖ 』砂
哩梆
\
℃
、』》
N
第
篇遗传与进化
(4)单链+∩N∧病毒:该类病毒的+RNA可直接作为mRNA
进行翻译’合成蛋白质°复制方式是以该+RNA为模板’复制
成ˉRNA’然后再以—RNA为模板合成若干子代+RNA’如脊髓灰质
炎病毒`SARS冠状病毒。
(5)单链-∩N∧病毒:该类病毒的—RNA不能起到mRNA的
作用’先合成互补的mRNA’再用于翻译’产生病毒蛋白质。遗传
物质复制时’是以—RNA为模板合成互补的+RNA’再合成若干子代
病毒—RNA’如流感病毒`禽流感病毒和狂犬病毒等°
(6)逆转录病毒:该类病毒首先以自身RNA为模板,经逆
转录酶的催化’形成RNAˉDNA杂交分子’再以单链DNA为模板’
合成双链DNA’后者整合到宿主细胞的DNA上’进而合成若干子
代单链RNA。其子代RNA和亲本均可充当mRNA翻译各种病毒蛋白
质’如HIV病毒、Rous肉瘤病毒等。
●●●●■●●■●●●●●●
|主要参考文献习…………….…….………………
[1]田秀丽DNA病毒和RNA病毒增殖过程简介[J]生物学教学,2015(8
[2]吴相钮.普通生物学[M].北京高等教育出版社’2005:355—356.
[3]戚中田医学微生物学[M]北京:科学出版社’2005:267—270.
[4]周德庆微生物学教程[M]北京高等教育出版社’2011:73—75.
[5]蔡信之’黄君红微生物学[M].北京:高等教育出版社’2004:70—71.
[6]王镜岩’朱圣庚徐长发生物化学:下册[M]ˉ3版.北京:高等
社,2002:491—493.
[7]翟中和’王喜中,丁明孝.细胞生物学[M]北京:高等教育出版社’2(}0
[8]吴子强解析有关病毒知识的疑问[J]生物学教学’2014(8):78.
,2()15(8〉:66_68
●
●
●
●
教盲出版
7:43—46
●
●●■●
●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●
●
●■●●■●●●●●●●●●●●●●●●O●●●●■●●●●●
′2′
↑
}
`pv`膨
心搬硼
测′
沁毗
翅lj
|‖·高中生物疑点通
|
进行的?
厂
0ˉ
|
ˉ0—p≡=0
厂
0~
|
ˉ0—p≡=0
两个核苍酸缩合反应过程
山
而
斗
叮
=
$
链
母
凶
缅
·
链
母
3′
3′
子链
…
缅
~
吕
山
而
』
‖
=
吕
~~
~~
~~
~~
\
尸
5′
巳
凹
Ⅻ
间
尸
◎
\
尸
合成反应
‖2O
尸
_
=
—
垦
尸
能
+
+
DNA复制过程中子链的延伸
●●●●
主要参考文献
|
[1]ScottFreeman’Quj]jnK’AlhsonL’ et
alBiologicalScienceM6thed20l7
′22
●
●
●
●
■
■
●
●
■
●
●
●
●
●
●
●
●
■
■
●
●
■
●
■
■
●
■
●
●
·
●
●
●
●
●
●
●
●
●
●
■
●
●
●
‖
●
挪
‖′仍`翅|帜
"′`
第二篇遗传与进化
o
氢键是分子间的作用力’指和负
电性原子或原子团共价结合的氢原子
(正电性)与邻近的负电性原子(往
往为氧或氮原子)之间形成的_种非
共价键作用力。如水分子间通过氢键
“联结’’使水呈液体状。那如何使水
呈现气体状?只需通过加热的方式,
破坏这个作用力(氢键)即可。
要让学生更好地了解氢键’可在
课堂卜进_步提问:为什么DNA中
的碱基能够互补配对?为什么DNA
的双螺旋结构会非常稳定?学生自然
会想到配对是由于氢键的“联结”
(N—H…O、N—H…N型)’原来
正是因为有很多氢键的共同作用才使
DNA具有如此稳定的结构。那如何
使DNA的双链打开?可以通过物理
加热的方式,体外DNA就是需要在
90~95℃环境下才解旋。进_步向学
生提问:如何使DNA在较低的温度
下就能够解旋或如何降低DNA解旋
的活化能?学生自然想到降低化学反
应活化能的酶(DNA解旋酶)。通
过这种教学方式学生不仅深刻理解了
氢键的本质’对DNA解旋酶也会有
进—步的认识。
因
喇
翻
攫
∩2
‖2
掣
蹬
‖
翻
澄
什2
卜|2
DNA分子结构示意图
]
献
文
考
参
要
主
彰
GGGGGGGGGGGGGGGGGGIGG
GG
[1|梁长余.关于氢键和磷酸二酪键|J|.生物学教
学’20]1(6):69.
[2]陈阅增’张宗兵冯午’等普通生物学[M|北
京:高等教育出版社’1997:422ˉ
|3]王镜岩,朱圣庚徐长法生物化学[M].北京:
高等教育出版社圃20()2:476.
[4]翟中和王喜忠’丁明孝.细胞生物学[M|.北
京:高等教育出版社’200():303’310—3ll.
●
●
●
●
●
●
●
G
GGGGGGGGGGGGG
GGGGGGGGGGGGGGGGGG
′23
G
L
删
…
珊
帆
`
…
、
…
中
瞅
搞
7》
〃
~
~
蝉
■
F
■=■■■■■■=■■■■■■=■■■■■■■■■■■■■■=■■==■■■=■■
■■==■■=■■=■■■■■■■■■■■■■■=■■■■■■=■■■■■■■■■■■■■■■■■■■≡■■≡■■■■■■■■■■■■■=■■■■=■■
困复删、表遁过程所需能量是否都来自ATP?
■■■■■■■■■■■■■■■■■■■■=■■===■■=■■=■■■==■■=■■==■■=■■■■■■■■■■==■■■■■■■■
d■■==…南=■■■■=…■■≈=■■■■■■=■■
■■■■■==■■■■■■=
有人认为细胞内DNA复制由ATP水解供能,而细胞外PCR扩增DNA的能量主要由外
界温度供给。这种说法准确吗?
(.
DNA复制过程
3′
娜删硼Ⅷ栅哪喻〃`;|
5′
方向台成前导链
娜硼渺娜《
3
卿娜哪Ⅷ;′
5′
过程
DNA复制主要有解旋、RNA引物的结合、链的延长和复制的终止等阶段。解旋`RNA
引物的结合`在DNA连接酶的催化下进行的冈崎片段的连接都需要ATP供能’但是链的延
长是由脱氧核昔三磷酸α-与β-磷酸基之间的高能磷酸键的裂解以及焦磷酸的水解供能°
2转录过程
非模板(编码)链D"A
下-个‖丁P
碱基配对,在∩|\|∧聚合酶
(单体)
的作用下形成磷酸二酪键
PˉPˉP—\ˉq≡o0
锦怖蹿蹄
\/吠
/伏
o
/戮2′
▲
′—~酣—〖/{】w
钮
3
5
日
日
5′
∩‖∧
|』|』‖】‖ 』』』』‖F
5
模板链
≥刁霉矿T!
透d迷述庄戊
§·
萨
■■
刊
∩N∧
互补配对的
碱基对之间
形成的氢键
DN∧模板
转录过程
′24
′/′
第二篇遗传与进化
′
′
细菌的转录过程分为模板的识别、转录的起始、转录的延长、转录的终止四个阶
段。模板的识别即RNA聚合酶在O亚基引导下识别并结合到启动子的过程’该过程中酶
通过扩散与DNA任意部位可逆性地结合’模板的识别主要动力来源为扩散;链的延长是
四种核糖核昔三磷酸(ATP、CTP、GTP和UTP)形成磷酸二酷键和焦磷酸的过程’能量
主要来自核糖核昔三磷酸α—与β-磷酸基之间的高能磷酸键的裂解以及焦磷酸的水解。
3.翻译过程
翻译的开始需要在mRNA分子上选择合适位置的起始密码AUG’该过程通过核糖体
小亚基与mRNA结合实现—核糖体小亚基首先结合在mRNA的5|端’而后向3端移动’直
到AUG序列被携带甲硫氨酸的tRNA上的反密码子识别’这_过程需要由ATP水解供能;
随后核糖体大亚基与小亚
基、起始tRNA、mRNA结
合’该过程需要GTP水解
供能;mRNA上密码子的
翻译靠核糖体催化肤键的
形成’新的tRNA的加人
需要GTP水解供能;肤
键的形成则依靠新加人
的tRNA上携带氨基酸对
肤酚ˉtRNA上酪键的碳
基的亲核攻击。
因此’翻译过程起始
复合物的形成需要ATP和
GTP水解供能;翻译开始
后’核糖体在mRNA上的
移动需要GTP水解供能;
肤键是核糖体催化下亲核
攻击形成的。
◎
形成肋键的部位
■
尸位点中的t∩N∧
上连接的是延长
中的多肋链
』
∧|a
大亚基
∧位点容纳
氨酚t∩‖∧
匠「匹尸
∧
巨位点中的.
t∩N∧即将
离开核糖体
反密码子
←
小亚基
5′ 〔」|」∧[儿儿}CGGGG∧№∧Cl」C∧GCuG∧GG∧(」∧C〔」A(」3′
『Ⅵ∩N∧
÷
翻译过程
|襄…醚]…………………
|
川马小删基凰…程所需镶遣煮陕自…川
生物学教学20l5(8):62—63.
[2]吴相锤陈守良葛明德’等.陈阅增普通生物学
●
●
●
[M].2版.北京高等教育出版社’2008:256—257.
●
●
■
:
[3]王镜岩’朱胜庚’徐长发生物化学:下册[M].3版.北
●
●
京高等教盲出版社’2()()5:406—53().
●
8
[4]王梁华焦炳华生物化学与分子生物学[M]上海:
●
第二军医大学出版社,2012:25—55.
●●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
●
′25
GG
G
I
●
●
●
●
●
●
●
◆
●
●
■
●
魁k′
`
`
娜″`哪Ⅵ勤′Mv
嘶
``!`〃
|‖□高中生物疑点通
|
|
=■■■■■■■■■■■■■■=■■■■■
■■≡■■■■■■■■■■■■■■■■■■■■=■■■■■=■■■■■■■■■■■■■乙==■■■■■■■■■■■■■■■■■■■■■■■■■■=■■■■■■■■■■■■■■■■■■■
‖侧理解绷胞质基困的半自主自我复制?
=■■■≡■■■
■■■■■■■■■■■■■■■■■■=■■■■■
0■0
0■■■■■■■■■■■■■■■■■■■■■■■■■■=■■■■■■■■=■■■■■=■■====…=≈■■■■■■■■■■=■■■■■■■
录
转
∧
‖
○
体
|
粒
线
线粒体内膜
线粒体外膜
线粒体
R‖∧聚合酶
/
t∩‖∧S
t
氨基酸
氨酚ˉtR‖∧S
氨酚ˉtR‖∧
\
||
‖「
°
.
·. .晚蓄蘸合成的
●
●
柠檬酸循环有关的
可溶性酶等
●
膜结合的
↑
·
·
||露绊
●
●
●
●
柠檬酸循环有
可溶性酶等
●
复制中的
线粒体D‖∧
复制中的
线粒体D‖∧
[
线粒体0N∧复制相关酶
/
线粒体
氨酚=t∩‖∧合滤~
细胞质基质中
合成的蛋白质
质
体
萍
粒
体
线
糖
核
_
|
线粒体RNA和蛋白质的来源
线粒体和叶绿体中的DNA’能够进行半自主自我复制’并通过转录和
翻译合成蛋白质。那如何理解细胞质基因的半自主自我复制呢?
很多学者把线粒体和叶绿体的遗传信息称为真核细胞的第二遗传信息
系统’或核外基因及其表达体系。研究发现:
′26
咖
′Ⅱ憾″仰《』``ⅪW
呻
`硼Mi』
}″
第
篇遗传与进化
(
|)线粒体和叶绿体都具有独立进行转录和翻译蛋白质
的体系°
线粒体和叶绿体中除含有DNA外’还含有RNA(mRNA、tRNA、
rRNA)`核糖体`氨基酸活化酶等。
(2)线粒体和叶绿体的自主程度是有限的。
迄今为止’人们发现叶绿体仅能合成l3种蛋白质’线粒体能够合
成60多种蛋白质’而参与组成线粒体和叶绿体的蛋白质均有上千种。
这说明’线粒体和叶绿体中自身编码合成的蛋白质并不多’它们中的
绝大多数蛋白质是由细胞核基因编码’在细胞质核糖体上合成的。也
就是说’线粒体和叶绿体的自主程度是有限的’它们对细胞核遗传系
统有很大的依赖性。因此’线粒体和叶绿体的生长和增殖是受细胞核
基因组及自身基因组两套遗传信息系统控制的’所以它们都被称为半
自主性细胞器。
(3)线粒体和叶绿体中的D‖∧都可以自我复制。
其复制方式也是按半保留复制方式进行°用3H‖密陡核昔酸标记
证明’线粒体中DNA复制的时间主要在细胞周期的S期和G2期,而且
DNA先复制’随后线粒体分裂。叶绿体中DNA复制的时间在G|期。
它们的复制都受细胞核的控制’复制所需的DNA聚合酶都是由细胞核
DNA编码’在细胞质核糖体上合成的。
0
●●●●●●●●●
●●●●●●●●●●●●●●●●●●●
)主要参考文献
四
饭《遗传与进化》教材中几个问
[1]邓过房对人教版《遗传与进化》教材
题的探讨[J]生物学教学’2()15’6:68—69
[2]盂紫强’耿红张波线粒体DNA及其表过
展[J].生命的化学’200]’6:500—502.
[3]AlbertsB’JohnsonA’LewisJ’ etal. ;
BiologyoftheCell[M]5thed
线粒体DNA及其表达的研究进
●
●
●
●
●
●
lecular
Mo
凶
=
●
●
●
■
●
■
●
●
●
●
■
●
●
●
●
●
●
●
◆
●
●
●
●
●
●
●
■
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
β
●
●
′27
G
I
GGG
G
GGG
GGGGGG
GGGGGGG
L
越
\
、
、
b
、
h
|‖□高中生物疑点通
」
■■■■■■■■■■=■=■■
■■■
■■■■■■■■■■■■■==…■==■=■■■■=■==≈■■=■■=□=■■■■■■■===0■■====■≈=■■=■■■乙≡■■■==■■==■■
核生翱基圃与愿储生物基圃有侧邢问?
■===■≡乙■≈■■■■=■■■≡■■■■=■■=■■■■■■■■■■■■■■■=■■■■■■■■=■■■■=≈==■■
■■■=≡====h■■===■=====■■■■■■■■■■■==■■=■■
与原核生物相比’真核生物基因在结构上的最大的特点是:编
码蛋白质的序列(外显子)被编码区中的非编码序列(内含子)间
隔成不连续的片段’而原核生物基因的编码区却是连续的°
」
区
\
\
码
编
子
\
\
动
启
]0Ⅷ
5′
■
=己ˉˉ…3′
田≡≡
==
≡…|5′
|
~~~~~
3』·…≡{
原核生物基因
_
子
显
卜
■
夕
′
/
/
—
‖
乖
\
\
庐
″
启
·
■
吕
内含子
/\
■=
],Ⅷ
3′
5′
p毯
骡职产
.■
=■…ˉ_■
毯笆
…
3′
真核生物基因
内含子存在的意义是通过选择性剪接(altemativesplicing)实现
了由相同的基因控制不同蛋白质的合成’也有助于基因重组’加快
进化过程中新基因的形成°
∏
△
)主要参考文献
|………..
0
|
●
[1|艾伯茨.细胞生物学精要|M].丁
小燕’陈跃磊,等译.3版北京:北
京科学出版社’2012:245~
●
●
G
G
GGG
●
●
●
■
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
′2『
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
/》感′娜\巡′憨′}』kA』冬脚\
第二篇遗传与进化
仰ˉ泌
h
■■■■
■■■
「
磺需陛
罪
凶
ˉ
‖
‖
‖
′
‖
|
‖
恫|!圃‖
人教版高中生物必修2教师用书认为: “基因的转录是由RNA聚合酶催化进行的。
基因的上游具有结合RNA聚合酶的区域’叫作启动子°启动子是—段具有特定序列的
DNA’具有和RNA聚合酶特异性结合的位点’决定了基因转录的起始位点°RNA聚合酶
与启动子结合后’在特定区域将DNA双螺旋两条链之间的氢键断开’使DNA解旋’形成
单链区’以非编码链为模板合成RNA互补链的过程就开始了。’’
教参上的观点是否准确呢?
5
链
30
50
|
局部展开的D‖A片段
转录泡示意图
↑.原核生物的转录
在原核生物转录过程中需要RNA聚合酶’当聚合酶遇到称为启动子的特异序列时’
它就会牢固结合于DNA上’随即打开其前方的双螺旋。目前研究比较透彻的是大肠杆菌
的RNA聚合酶’它由2个α亚基、_个β亚基和—个β’亚基组成的核心酶,加上—个O亚
基后成为聚合酶全酶。
大肠杆菌R‖∧聚台酶的组成分析
功能
解开前方的DNA双螺旋,恢复后面的DNA双螺旋
催化磷酸二酷键的形成
与DNA的非模板链结合
识别DNA上转录的起始部位,弓|导全酶结合上去
亚基数
2
l
l
l
组分
核心酶
核心酶
核心酶
O因子
亚基
α亚基
β亚基
β,亚基
o亚基
′29
】
●
●
●
■
●
■
哦
″
|0口高中生物疑点通
DNA上存在着转录的起始信号’称为启动子。RNA聚合酶全酶上的
O因子能识别启动子’并识别有义链’从而使全酶定位于启动子部位°全
酶在启动子附近将DNA局部解链’约解开l7个碱基对。第—个核昔三磷
酸(常常是GTP或ATP)结合到全酶上’形成‘‘启动子-全酶ˉ核昔三磷
酸”三元起始复合物。第二个核昔酸参人’连接到第一个核昔酸上’形
成第_个磷酸二酷键’ o因子从全酶上掉下’又去结合其他的核心酶。
当o因子从核心酶上脱落后’核心酶与DNA链的结合变得疏松’可
以在模板链上滑动’方向为DNA模板链的3|—诊5|。同时’将核昔酸逐个
加到RNA链的3|—OH端’使RNA链以5|→3|方向延伸’在RNA链延伸的
同时’RNA聚合酶继续解开它前方的DNA双螺旋’暴露出新的模板链’
而后被解开的两条DNA单链又重新形成双螺旋’DNA上的解螺旋区保持
约l7个碱基对的长度。
『
d
晒`
2三核生物的转录
在真核细胞中有三类聚合酶’分别是RNA聚合酶I 、RNA聚合酶
Ⅱ和RNA聚合酶Ⅲ其中RNA聚合酶Ⅱ在核内转录生成hnRNA’经剪
接加工后生成mRNA被运送到细胞质中作为蛋白质合成的模板。真核生
物中的RNA聚合酶通常不能单独发挥转录作用’真核生物转录起始过
程中至少还需要7种辅助因子参与’这些蛋白辅助因子统称为转录因子
(TF)
。
真核生物∩‖∧聚合酶Ⅱ所形成的转录起始复合物
相对分子质量(×l0〉
38
l2,19,35
35
l5~250
3457
转录因子
TBP
TFⅡˉA
TFⅡˉB
TFIˉD
TFIˉE
亚基数
l
3
l
l2
2
功能
与启动子上的TATA盒结合
使TBP及TFⅡˉB与启动子的结合比较稳定
与TBP相结合’吸弓|RNA聚合酶TFIˉF到启动区上
与各种调控因子相互作用
吸引TFIˉH,有ATP酶及解链酶活性
d
结合RNA聚合酶Ⅱ并在TFⅡˉB帮助下阻止聚合酶与非特异性DNA
序列相结合
「FIIˉF
勺
=
斗
气
/
○
]
在启动区解开DNA双链’使RNA聚合酶I磷酸化,接纳核昔酸切除
修复体系
TF∏ˉH
l2
35~89
′30
●
●
●
●
●
●
●
▲
●
●
●
●
●
●
▲
●
■
●
矽
■
▲
″″`膨∏
〃硼叮`′狐
孤
幻
℃
吧
篇遗传与进化
第
TBP是唯_能识别TATA盒并与其结合的转录因子’是三种
RNA聚合酶转录时都需要的。转录时先是TFⅡˉD与TATA盒结
合,继而TFⅡˉB以其C端与TBPˉDNA复合体结合’其N端则能与
RNA聚合酶Ⅱ亲和结合’接着由两个亚基组成的TFⅡˉF加人装
配’ TFIˉF能与RNA聚合酶形成复合体’还具有依赖于ATP供给
能量的DNA解旋酶活性’能解开前方的DNA双螺旋’在转录链延
伸中起作用。这样’启动子序列就与TFⅡˉD`B`F及RNA聚合
酶Ⅱ结合形成_个具有转录功能基础的转录前起始复合物’能转
录mRNA。TFⅡ—H是多亚基蛋白复合体’也具有依赖于ATP供给
能量的DNA解旋酶活性’在启动子区解开DNA双链; TFⅡˉE是
两个亚基组成的四聚体’不直接与DNA结合而可能是与TFⅡ—B
联系,能提高ATP酶和解旋酶活性; TFⅡˉE和TFⅡ—H的加人就
形成完整的转录复合体’能转录延伸生成长链RNA。
综上所述’在转录过程中’原核生物通过RNA聚合酶特定亚
基使DNA双链解开,RNA聚合酶自身具有解旋的功能;真核生物
转录时某些转录因子协助RNA聚合酶形成复合物解开DNA双链’
起到解旋酶的作用。
)主要参考文献|………………………
[1]刘秀荣张光慧DNA转录时需要解旋酶吗?[J].新
课程学习:下’2012’2:81.
[2]谭艳华.转录需要解旋酶吗[J]ˉ生物学教学’20l2’
7:40—41°
[3]刘聪遗传信息的转录需要解旋酶吗?[J].中学生物
教学’201(),6:32—33.
[4]郭永前ˉ转录需要解旋酶吗?[J]ˉ中学生物教
学’2011’6:42.
[5]AlbertsB’JohnsonA.LewisJ’etal.Molecuarl
BiologyoftheCell[M].2008.
●
●
●
●
●
●
●
■
●
厂
逞
●
●
0山●●●●●●●●●●●●●●●●●●●■●■●●●
●●●●●●●●●■●●●■■●●●●■●●●●●●●●●●
●
●
′3′
●
●
●
●
●
●
●
●
●
GG
GG
GG
嘶
|‖口高中生物疑点通
■
==■==≡==■≡==■■=□■==■==~■■■===========■==~≈乙■空■=】
录的产糊是否只有mRNA?
=====≡===■==≡==■=≈≈≡=■=■=====■→=≡■==~■==■=■■■===】
■■≈■■■■■≈=0■■=■■■=■■=■■■
■■■■■■
0■■
■■■■■■■■■■■■=■■=■■■■■■■■■■■■■■■■■■■■■■■■■■■■=■≈乙■■
=■■■■■==■■…
发生在核内的转录和R‖∧加工过程
发生在细胞质的翻译过程
转录
转录
细胞核
DN∧上的基因
基因
|
↓转录
转录
加工核孔
加工核孔
}
↓
|
|
|
↓
飞
`
\
=ˉ==~~~~~~~~~~~
~
-=~~~~~~
~
\
\
\
\
\
\
\
■■~~~
\
\
\
\
\
\
\
\
\
\
\
\
\
~~
核膜
\
\
~
\\
\\
\
\
\
\
\
\
\
=
\
=
~~
≡=
~~=■■■=■■0≡=
‖
尸
(自)
(b)
基因表达过程
′32
●
●
●
●
◇
●
●
●
●
■
诽
I
~
细胞质
核糖体
|
翻译
\
\
▲
∩‖A
/
=
■■■~==■■■====
〃
/
/
=
/
/′
/
/
/
′
峨。
′
/
曰墨酸囤@
/
/
°
◎
巾∩N∧的剪切
翻译的抑制
`
S∩∩N∧
t∩‖∧
阳∩‖∧
p『eˉ们|∩N
…铆[也/{』′∏\掣^硼`、
第二篇遗传与进化
′
`
转录的产物不仅仅只有mRNA’还包括其他RNA’如tRNA`rRNA
以及siRNA`miRNA、snRNA`snoRNA’等等。
‖。mRNA是翻译的模板
转录产物中只有mRNA作为翻译的模板指导蛋白质的合成’其他
RNA不作为翻译的模板° tRNA在细胞质中作为运输氨基酸的工具;
rRNA则由核仁中的rDNA转录而来’再与蛋白质组装成核糖体的大`小
亚基’经核孔进人细胞质与mRNA结合’参与翻译过程。
2。rRNA昌有肋墓转移酶活性
在翻译的每—步’ rRNA与mRNA或tRNA都发生相互作用’ rRNA
在蛋白质合成中对肤基转移反应作用非常重要。用体外进化和体外筛选
技术获得的核酶(Ribozyme)也能像核糖体—样催化肤基转移反应°
rRNA具有肋基转移酶的活性,即核糖体是—个核酶。
目前所知的所有
核糖体功能反应都与rRNA有关’而核糖体蛋白可能只是在核糖体装配
过程中对rRNA的折叠和功能构象的形成起重要作用°
3.
tRNA是氨基酸运载工星
tRNA是由tRNA基因转录出来的,真核生物的tRNA基因数目非常
大’每种tRNA基因都有很多拷贝’通过tRNA基因的不对称转录合成的
tRNA前体经加工后,成为有活性的tRNA°成熟的tRNA具有特异性转
运氨基酸的功能’每种tRNA在特异的氨基酷-tRNA合成酶的作用下’
结合_种特定的氨基酸’并将其转运到核糖体上’参与蛋白质的合成。
研究表明’翻译时需求强度(近似为tRNA的浓度与基因组密码子频率
的比值)大的tRNA可被优先运出细胞核°在有些生物中’ tRNA不仅可
以被运出细胞核’还可以通过主动运输逆向运人细胞核。可见’ tRNA
不是从细胞核到细胞质的单向运动’而是穿梭往来于核膜内外的°
′33
●
●
●
●
●
●
●
◆
●
●
$
●
●
●
■
●
●
●
●
●
●
r
`刨′V廷
『}
″
|‖□高中生物疑点通
ⅪO◎O°mO
jU◎O.O◎O
)U◎U◎U◎O(
DN∧
转录
形
|
|
|
{
,
信使∩N∧
核糖体∩‖∧
转运∩|\』∧
/\/≡\/\/\
/\/\ˉ/ˉ\./\
/\/\ˉ/\/\
在真核生物中
十核糖体蛋曰
+氨基酸
经过修饰
|
|
|
↓
↓
|V
十~
|
/
核糖体\
翻译
∏
」
0■
延长中的多肋
下—个氨基酸
基因表达过程
4旦他RNA
(1 )小干扰RNA(siRNA)是RNA干涉(RNAi)过程中出现的_种2l~25nt的小
分子RNA’—般由Dicer核酸酶加工而成’可弓|发与之互补的目标mRNA的沉默。
(2)作为内源性的翻译抑制因子’微小RNA(miRNA)主要通过与靶mRNA的3|非
翻译区的碱基互补配对而起作用°当其与mRNA不完全配对时’抑制翻译过程;完全配
对时’则切割或降解靶mRNA。
(3)小核RNA(snRNA)主要作用是与有关蛋白结合形成小核糖核蛋白体
(snRNP)’对RNA的前体进行加工。snRNA在核内转录但在胞浆组装’发挥功能则
又在核内’所以需要跨核膜转运。
(4)小分子核仁RNA(snoRNA)
参与细胞核中前体rRNA加工与修饰’
除少数snoRNA基因单独转录外’大部
分snoRNA由蛋白质编码基因的内含子
编码。
主=考文献0……………….
|
[1]李金花.基因表达过程中相关问题剖析
[J]生物学教学’2014’11:77_79.
[2]孙乃恩’孙东旭’朱德胞.分子遗传学[M]
南京:南京大学出版社’1995:199.
●
q
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
$
●
●
●
●
●
●
●
●
●
●
·
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
′34
●
砂
■
矽
●
●
●
$
●
●
●
■
●
●
沪/隆硼′
\M吻`′
淑″`′Ⅳ
撇′`|
例}
切
w
″
饥
b
第二篇遗传与进化
■
=
■
∏
转录过程
DNA之所以能转录取决于:o特异的转录起点;@转录的
方向;o转录开始后按碱基互补配对原则准确地转录;@特异
终止部位等几个方面°转录起始的关键是RNA聚合酶与启动子
的相互作用。
启动子是指_段位于结构基因上游区、指导RNA聚合酶与
模板正确结合`活化RNA聚合酶并确保转录准确而有效起始的
DNA序列°启动子的结构影响了它与RNA聚合酶的亲和力’同
时也就决定了RNA聚合酶对它的选择与结合。以大肠杆菌RNA
聚合酶为例’该聚合酶(全酶)是由O因子及核心酶两个部分组
成的。O因子是—种专门负责模板链的选择和转录起始的蛋白因
子’是酶的别构效应物’它能使酶专_性地识别模板上的启动
子°核心酶负责转录由全酶识别已形成单链DNA的模板。正是
由于RNA聚合酶必须结合在DNA分子的特定的区域—启动子
上’这就决定了转录起始的位点。
′35
`^〃Ⅵ
℃
‖0□高中生物疑点通
其次’RNA聚合酶同DNA聚合酶_样’只能催化单核昔
酸加接到带游离3|ˉOH的多核昔酸链上’就是说RNA合成时只
能以5|ˉ→3|的方向合成互补于DNA模板链的RNA链。这就决定
了转录的方向。
正是由于这种“位点’’和“方向’’
,共同决定了DNA
的哪条链将被转录’而不是DNA的两条链同时都可转录为
mRNA(当然也有个别例外的情况,如细菌中的质粒DNA的
双链能同时在同—区域进行转录)
°
事实上’沿着一条DNA分子的碱基对顺序,排列了许多
的基因’每个基因都有_个启动子’每个启动子决定了该基因
的转录的方向’规定了转录的线以及终止子°然而又因为基因
是断裂的’相邻的基因并不完全连续排列在—条转录线上’而
且DNA的两条链具有相反的化学极性。因此’相邻基因的转
录线可以从DNA双螺旋的—条链,转换到另—条互补链上’
当这种转换出现时’DNA的转录方向必须倒转过来。
‖@
=
主要参考文献l…………….
●●●●●●■●●●●●●
中几个问
[1]邓过房对人教版《遗传与进化》教材
题的探讨0].生物学教学’2(〕15’6:68—6
6:68—6
●
●
●
9
|李华DNA只有_条链能被转录吗?[〗.生物学通
●
●
●
‖2
报’l992(5):15
~~
■
\≤_出
●
●
●
●
■
●
●
荣DNA的两条链是否都有转录能力0].生物
[3]孙秀荣DNA的两乡
学通报’1987(7):43
●●●$●●●●●●●●●●●●●●●●●●●●●■■■■T■■■=■=■●
●●●●●●●●●●●●●P●◆●●■
■
■
杉
◆
创
◆
竹
′36
●
●
●
似
●
◆
●
●
●
●
●
■
田
伯
甜
■
田
●
●
◆
岔
●
●
●
●
●
●
●
●
硼`
、
狮√『锄′Ⅱ
`
.蹿』
腆`
抑、硼卿‰′\
硼叮《扒泄VM
{d′『}
\醚}
镰
…二拜元盂
了}
刃
抑
酶
…
真核生物中基因以内含子和外显子的方式排列’乍—看是很浪费的’但它却有积极
作用。首先’许多真核生物基因的转录物可以以不同的方式剪接’每种剪接方式可以产
生不同的蛋白质。因此’这种选择性剪接允许同_基因产生出许多不同的蛋白质。据估
计’大约60%的人类基因可能进行选择性剪接°因此’ RNA剪接能够使真核生物增加其
基因组已经很巨大的编码潜能°
RNA拼接还使真核生物比原核生物又多了—重优势’很可能在基因进化早期阶段非
常重要。内含子—外显子基因结构被认为加快了新的、有用的蛋白质的出现。DNA中大量
内含子的存在提高了不同基因外显子之间发生遗传重组的可能性。这意味着通过组合先
前存在的不同基因片段可以非常快地进化出新的蛋白质’这—机制类似于通过_个功能
组件装备_台新型的机器。事实上’现今细胞内的许多蛋白质就像是由—套共同的蛋白
』
质片段组成的拼接件_样’这些片段叫蛋白质结构域。
αˉ原肌球蛋臼基因
5′
■■■■■■…】■■■■攀■■■■…=
3‖
P尸■早′■■■口口□■■…=
∧
∧
外显子
内含子
|霖蹦蕊“
‖
‖
∧
~
:|]0‖A
横纹肌ⅦR‖∧
3|平滑肌∏R‖∧
3|成纤维细胞门R‖∧
3|成纤维细胞ⅦR‖∧
脑Ⅶ∩‖∧
50
5‖
50
50
50
3
α原肌球蛋白是一种卷曲螺旋蛋白’在肌细胞内调节收缩。如图所示,其转录物
可以以不同方式进行剪接,产生不同的mRNA及不同的蛋白质°有些剪接形式只
针对特定种类的细胞°例如,横纹肌形成的α—原肌球蛋白与干滑肌中的不同’尽
管两种蛋白质米源于同一个基因。图上方的红箭头表示可添力口poly—A的位点°
α-原肌球蛋白基因可以以不同方式剪接
)主要参考文献‖….
●■■●●●●●
细胞生物学精要[M]
[1]艾伯茨细胞生物学精要
小燕’陈跃磊等译.3版」
京科学出版社’2()12.
●
●
●
●
●
■
—
~
~
『
「
巳
丁
」
『
‖
司
叫
京
『
‖
几
『
厂
凹
GGGGIGGGGGIG
●●●●●●●■●●■■■●●●■■■■■■=●●●●■
●
′37
‖‖口高中生物疑点通
|
=====二=■======■≈=…=≡=■■=====乙二…■==~==≡=■乙■■=■=■=】
!‖侧与刺陋的氨基酸结台?
■==≈==■===■■=======■≈■≈口≡■===■=■==…==■■哩=■=■=■■→】
·p |门|
∧
负载的tR‖∧移动到核糖体上
氨基基团梭基基团
tR‖
与色氨酸对应的
反密码子
与酶分离
3.反应的第二步,氨基酸从∧‖p转移
到tR‖∧,生成负载的tR‖∧和∧‖p°
特定氨基酸结合到R‖∧3’氨基酸
臂上,就形成了负载的t∩‖∧
|ˉ反应的第—步是氨基酸的活化°氨基酸与
2.氨基酸—A‖p复合物
∧丁p反应,生成的中间产物中,氨基酸的矮
仍结合在酶上°接
基端与∧‖p连接°在这个反应中, ∧『P末端的
着, tR‖∧与酶结合
两个磷酸(焦磷酸)被切下来
tRNA结合并转运氨基酸的过程
特定的tRNA分子与特定的氨基酸相连’是靠—类活化酶的活动来完成
的’这些活化酶叫作“氨酷tRNA合成酶’
(aminoacyl-tRNAsynthetases)
。
每—种酶分别对应常见的20种氨基酸。这些酶必须与tRNA分子上特定
的反密码子序列以及特定的氨基酸同时相对应。
有的活化酶只对应_种反密码子’因此就只对应_种tRNA分子;另有
_些酶可以识别两种、三种、四种甚至是六种不同的tRNA分子’每—种都
具有不同的密码子’但编码相同的氨基酸。如果把mRNA的核昔酸序列当成
加密的信息,那么20种活化酶就负责将这些信息解密°
≡…`……=
|
`
[1]RavenPH’JohnsonGB.生物学
●
●
●
[M].谢莉萍张荣庆’张贵友’译.6
版北京:洁华大学出版社’20()8.
●
●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●■●●●●●●●0
●
●
●
′38
■■■
′哦硼″》″′M′vh册=测″】翅^鹰/『\
|
第二篇遗传与进化
h
=0■■■■■■==■■■
■■B
■■■
■■■■=二■■■■=■■■■≈■■≡■■■■■■■■■■■■=
RNA是61种隅?
■→≡■■■■≡≡0■■
■■■========■■■■■
■■■■■=■■■■■
■■=≈■■
『
3|端
Raven的《生物学》第6版认为:
“大约有
酸
-
45种不同的tRNA分子。为什么是45而不是64个
反密码子
tRNA呢?因为tRNA反密码子的第三个碱基对
允许发生_些“摆动”
’有些tRNA能够识别—个以上的密码子°
”
迄今发现的密码子共64种’能编码氨基酸的密码子共61种’另3种为终止密码子。
tRNA上不存在与mRNA上的终止密码子配对的反密码子。按(]rick于l966年提出的变偶
假说’反密码子的第_位碱基与密码子的第三位碱基的配对可以在_定范围内变动(变
偶)’如U可以和A或G配对’ G可以和U或C配对’但A和C只能分别与U和G配对。体外
实验表明’有时反密码子的第_位碱基可与密码子的第三位上任意四种碱基配对°应特
别指出’在tRNA反密码子中除A、U、G、C四种碱基外还常在第—位册现次黄膘吟(它
可与A`U、C三者之间形成碱基对)’带次黄漂吟的反密码子可识别更多的简并密码子
(编码同_氨基酸的两种以上的密
;主=赋`……………
●
[1]RavenPH’]ohnsonGB生物学{M].谢莉萍’张
●
荣庆’张贵友’译6版北京:洁华大学出版社,20()8~
●
●
:
[2]郑逢泰.关于tRNA的误区及点拨0]生物学教
学’2()(}9’8:63—64.
码子)°由于存在“变偶’’
’细胞
!
只要32种tRNA就能识别6l种编码氨
;
基酸的密码子。但多数氨基酸具有
!
多种用来转运的tRNA’所以_个细
!
胞通常含有50或更多种不同的tRNA
....
分子。
●●●●●●●●●●●■●●●●●■●●●●●●●■●●●●●●●●●●●■●●●Q●●■■●
●●●●●●●
′39
′越|
~~~
′
′
`
』
、幽
"晦^′Ⅵ``′`帆‘硼″《峨师′硼
硼\〃御\}扩v》`
1
凹P
吨
|‖□高中生物疑点通
■
==~=■=■■■■■
■■■■■■■■■■■■■■■==■■■=■■■■■
■■■≡=■■■■■■■■■■
是否一定需要起始密码子?
≡■■p←=……·■■■===≡==■■■■■■■■=■■■■
■■
∏
理论层面
实验层面
无细胞翻译体系
‖‖‖00‖!‖!‖
‖!‖‖‖‖‖‖‖0
望″蹿』
…=
j,碱蕊迂/≥
(
\
/
∏]RN∧聚合物
ˉZ
\
`
用放射性标记
-种氨基酸
(如甘氨酸)
其他‖9种氨基酸
37°C
遗传密码破译实验过程
′40
~ 鳞
第二篇遗传与进化
在人教版高中生物必修2 ‘遗传与进化’’第4章“遗传密码的破译”
_节中提到“尼伦伯格和马太破译了第—个遗传密码’他们采用了蛋白
质的体外合成技术’在每个试管中分别加人_种氨基酸’再加人除去了
DNA和mRNA的细胞提取液,以及人工合成的RNA多聚尿喀陡核昔酸’
结果加人苯丙氨酸的试管中出现了多聚苯丙氨酸的肤链” 。在这个实验
中’多聚尿嘻陡核昔酸就相当于mRNA’其上的碱基序列是由许多尿嘻
陡组成的UUUUU…’并无起始密码子。那么’多肤合成是否_定需要
起始密码子?
在细菌中’翻译的起始需要7种成分:核糖体30S小亚基`模板
mRNA、fMetˉtRNAfMe}、3个翻译起始因子(IFˉl`
IF—2、
IFˉ3)
`
GTP、核糖体50S大亚基、Mg2十。
研究表明’起始密码子的功能并非使翻译开始’而是充当定位翻译
起始的位置信号。
人工合成的多聚尿喀陡核昔酸(polyU)没有起始密码子,也无SD
序列’当时认为polyU不能代替mRNA,或活性很低。但后来发现’由
于该体系中Mg2+浓度很高’以致不需要起始密码子也能指导合成出多聚
苯丙氨酸的肤链’且读码起始位点随机:当没有SD序列时’核糖体与
polyU的结合、tRNA的反密码子与polyU的结合是随机的。由于polyU的
序列都是U,故无论从哪开始读’对应的氨基酸都是苯丙氨酸。若人工
合成的mRNA中不止_种碱基(比如UUUAAAUUUAAA…)’则翻译出
来的就不会只有UUU和AAA决定的氨基酸’还会有UUA、UAA、AAU、
AUU决定的氨基酸°
但是’在生理状态下’由于Mg2十浓度太低’无起始密码子的多聚核
昔酸不能被用作多肮合成的模板。
…
″
/
二
●
\<二出
|崖票…]
●●●●O●●
●●●●●
●
[1]蒋世禄没有起始密码子多
●
●
肋也能合成吗?[]].生物学教
〕
了
〕
∑
]
∩
∑
学
●
●
GGGGGGGG
GGGGGGGGGGGGGGGGGGGGGGGGG
IGG
′4′
●
●
■
‖
●
●
●
●
●
●
●
●
●
●
IG
″舰
哦``
夕,、
抑`′W
`仆
≈凶
山
|0口高中生物疑点通
■
■■=■■■■■■■■■■■■■■■■=■=■■=■■■■■■■■■■■■■■■=■=■■■=■■■■■■■■■■■■■
逆转录酶是DNA聚台酶隅?
■■■■
|■■牢===≈■■■■■■■=■■■■=』■■=→■■■
■■■乙====~■■■=■≈=■■■■■■■
■
l970年’HM.Temin和S.Mizutani
及D.Baltimore分别从致癌RNA病毒中
0‖∧拷贝整合
发现了逆转录酶。逆转录酶是_种多
0‖∧进宿主染色体整合的0‖∧
≡
—_
功能酶,它兼有三种酶的活力:
0‖∧
厂——|
|=器
`.
|
逆转录酶先后台成
D‖∧/R‖∧和D"∧/0‖∧双螺旋
R‖∧
—
■■■■■■■■■
|
兵~
包膜
\o
`‖A
^憾撼—雹—
"≡.
|脚Ⅲ
刨莫蛋白椭
进入细胞并逆转录酶
失去包膜
+
逆转录酶
··
·驴
病毒在宿主细胞中的基因表达过程
_卜罐嚼
_
含逆转录酶的许多
新病毒颗粒各自装
配到蛋白质外壳内
_
_
Ⅵ
cD‖∧
模板
—
首先,以刚∧为模板,在逆转录酶催化下合成cO‖∧
然后,以c0‖∧为模板,在酶的作用下台成双链0‖∧
逆转录过程
(l)用RNA作模板’合成_条互补
的DNA聚合酶活力)
。
(2)以新合成的DNA链为模板合成
另—条互补的DNA链’形成双链DNA分
子(I)NA指导的DNA聚合酶活力)
。
(3)具有核糖核酸酶H的活力’专
门水解RNA—DNA杂种分子中的RNA’可
沿3|—钱5|和5|→3两个方向起核酸外切酶的
作用。
合成_条互补的DNA链’ 形成RNAˉDNA杂种分子(RNA指导
丰要参考文献‖……….……
●●●●●
[|]吕爱民’吴朝辉逆转录病毒和逆转录酶
简介‖].生物学教学’20]6(3):69—70
[2]艾伯茨.细胞生物学精要|M|丁」`
细胞生物学精要[M]丁小
●
燕’陈
跃磊等译3版.北京科学出版社》20]2
●
●■●■●●
●●●●●●●●●■●●●●●●●●●G●●●●●●●●●·●●●●■●●●
●●●●●●
′42
′挪硼
魁′v《′v
徽删
测
℃
~~~
篇遗传与进化
第
■
F
转录酶仅存枉于逆转录病毒巾蚂?
\
/
R‖∧
0‖∧拷贝■■■■■■
+
一\
擂入0"瞻旦—
/″
/
\
\
逆转录转座子通过RNA中间体移动
除了逆转录病毒具有逆转录现象外’其他—些生物也含有逆转录酶’具
有逆转录现象。
嗜肝I)NA病毒’如乙型肝炎病毒’在复制周期中也需要经过逆转录的步
骤。嗜肝DNA病毒的核酸增殖过程为DNA→mRNA—粪DNA°
科学家还发现’烟草`蛙卵`网织红细胞`哺乳动物的胚胎细胞和正在
分裂的淋巴细胞中也有逆转录酶。胚胎细胞中的逆转录酶可能在胚胎发生和
细胞分化中起某种作用’淋巴细胞中的逆转录酶可能与抗体的形成有关。
主要参考文献
逆转录病毒和逆转录酶简
[1]吕爱民’吴朝辉逆转录病毒和逆
介0].生物学教学’2()16(3):69_70
[2]艾伯茨细胞生物学精要[M|.丁′
丁小燕,陈跃
磊等译.3版北京:北京科学出版社’2()12
●●■●o■●●■■●●●●●●●●●●■●■●●●■●■●■●■●●●●
′43
=
■
舰硼叮沁′vM吻‰′趣
、
硼
′
…
达
←
耻
∏
~
~
~
~
…
中
Ⅷ
啼
御
』
■
■
越』
0
=
一
弘
r殆录|‖间旱‖‖拥NA一沥
~
~~
~
~
~
~
~
=
傅
白
″
已
‖
_
β
□
□
片
日
一
一
】
■
u
G
细胞质膜
…
户L
8释放
0
厂
蛋白酶
入
艺
』
〗
护
‖
‖
‖
‖
‖
宁
…
‖
|
|
‖
睁
…
录酶
鸿
陨
病
户
屯
~/=
受体
巴″酱_病毒R‖∧
双链D‖∧—
勘
\Ⅷ
5。整台
比
核孔
[
细胞质
HIV的侵染和增殖过程
h
逆转录病毒是正链RNA病毒’最“著名’’的要属人类免疫缺陷病毒(HIV)
。
HIV的核心外层由衣壳蛋白组成’核心内含有两个完全—样的病毒RNA、反转
录酶`整合酶和核衣壳蛋白。
因此’当HIV感染人体后’与RNA
_起注人宿主细胞的逆转录酶会以病毒
RNA为模板逆转录出DNA’并整合到宿
主的DNA中。然后在宿主细胞内再转录
出病毒RNA’并合成病毒的蛋白质(包
括逆转录酶)’组装成新的病毒后释放
出细胞。
●
●
●
●
■
●
●
●
●
●
●
●
●
可
』
GGGGGGG
|主要参考文献
|
高中生物学教学中几个疑问的
[1]王国红高中生物学教学中几个疑
探析0].生物学教学’2015’8:7()—71
!
|口…越…删驯"
林大学’2016.
性研究[D].吉
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
■
●
◇
′“
●
●
●
●
曲
●
●
叮
■
空
〗娜F`删V‰′鹏硼‖硼v沁′Ⅵ、∩/』″\
·—蔚…|艘
重画画甄题疆霉砸哩『
嘛、
拙
厂箭颠ˉ门
减数
…
减数第_次分裂前的间期
是减数分裂的物质准备阶段’
由精(卵)原细胞形成初级精
(卵)母细胞发生在该阶段°
减数分裂过程包括两次有
序的细胞分裂,即减数第_次
分裂和减数第二次分裂’在减
数分裂的两次分裂之间’还有
—个短暂的分裂间期’为区别
于—般的分裂间期’将其称为
减数分裂间期。
可见’减数第_次分裂前
的间期和减数分裂间期发生于
减数分裂的两个不同时段°
百合的减数分裂过程
●■●●●●●●●●●●
)主要参考文献
}…….………
[1]陈国庆ˉ有关减数分裂和受精作用的几点释疑[]]
生物学教学,20l6(3):7().
[2]翟中和’王喜忠丁明孝.细胞生物学[M]’
教盲出版社’2011:296.
[3]王盼左明雪人体及动物生理学[M].北
育出版社’2009:431—440.
■
北京:高等
■
京高等教
●
00
[4]姚泰.生理学[M].北京:人民卫生出版社’2006:389
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
G
GGGGG
′05
G
翔′Ⅱ√腮
硼″\逊′Ⅵ
↓
、
|‖口高中生物疑点通
■■
■■■
■■■■…==■■=乙=■■■■
0■■■‖■■=
溅绎法?
■■■■■■■■=l■■■■=】■■
■■==■■■<=
=
一
Ⅷ
婆叶b
在观察和分析的基础上提出问题以后’通过推理和想象提出解
释问题的假说’根据假说进行演绎推理’再通过实验检验演绎推理
的结论。如果实验结果与预期结论相符’就证明假说是正确的’反
之,则说明假说是错误的。这是现代科学研究中常用的_种科学方
法,叫作假说—演绎法。
秦四哥原创教学一例
′46
必做呈《遗佬身进化》
乃中哎物
假说ˉ演绎法:
@观察现象:
她在人群中多看了我-眼。澎
@提出假说:
她会嫁给我·憾
@演绎推理:
我向她求婚她会苔应°蹦
@实验验证:
′嫁给我好闽?′′ “滚! ′′@
@得出结论:
我想多了……"
呸『淬
°城扒仆~′~
占
吼
=
鳞
蹿
←
b
第二篇遗传与进化
台子(d〃)巾隐性基圃是否表迹?
■■==■■=≡二■===■=■=■■=■==■■→■=□■■■■……=■■二=~===≡=■≈■■■=■■■==■■
≡
有些教辅资料提到’完全
显性的dα个体性状之所以与dd
个体完全_致’是因为A基因
的存在抑制了α基因的表达。事
实上’这种说法是不正确的’
α
基因在αα个体和Aα个体中的表
达情况应该是—致的。
那为什么Aα个体中隐性性
状没有表现出来呢?
这是因为A基因—般是控
制合成有功能的蛋白质’而α基
质。于是’在杂合子中’如果A
因控制合成的蛋白质则不正常’或者完全不能形成蛋白质。于是’在杂合子中’如果A
基因的产物足以维持生命活动的需要,则α基因的效应就被掩盖了。
例如’豌豆种子的圆粒(d)对皱粒(α)是显性的’A是正常的淀粉分支酶同工酶
I基因’ α则是在A基因中插人了—个0.8kb的片段’导致淀粉分支酶同工酶I失活’继而
弓|起淀粉合成量下降’游离蔗糖的积累增加’种子成熟时失水而皱缩。为什么dα种子不
皱缩呢?因为Aα个体中正常的酶和无活性酶都有’但前者已足以催化足够的淀粉合成’
使种子有效的保留水分’维持圆粒。
又如,人类β珠蛋白基因(d)突
变为缺失了启动子和增强子序列的α基
因后无法表达’因此αα个体缺乏β珠
蛋白’将患严重的地中海贫Ⅲ;而Aα
个体却能依赖A基因合成足够的β珠蛋
白’表现正常。
‖
●●●●●●●●●
●●●●●●●●●●●●●●
)主要参考文献
[1]刘欣高中生物遗传与变异教学中几个问题
〗
解答[]].生物学教学.2011’36(2):69_7(
)
●
●
●
●
●
●
[2]卢良峰’路文静.遗传学[M]
业出版社’2006’46—47.
2版.北京:中国农
q0
|
’戴灼华遗传学[M].北京高等教育出
[3]王亚魏戴灼华ˉ遗|
版社,1999:333’442
●●O●●
′47
p
凸
测
`
、
…
\
〃
…
中
砂
蜗
`博
们
‖′}
…
∏
生糊的性别到底由什么决定?
性别发育必须经过两个步骤:_是性别决定’它是指
细胞内遗传物质对性别的作用;二是性别分化,它是在
性别决定的基础上’经过—定的内部和外界环境条件的
相互作用’发育为—定性别的表现型
↑.性别决定
(
|)Xγ型性别决定
这—类型的雌性个体具有—对形态大小相同的性染色体’用
XX表示;雄性个体则具有—对不同的性染色体X和Y。Y染色体通常
很小’X`Y性染色体在形态和内容上都不相同’它们有同源部分,
也有非同源部分。同源部分和非同源部分都含有基因,但因Y染色
体上的基因数目很少’所以_般位于X染色体上的基因在Y染色体上
没有相应的等位基因°
XY型性别决定在生物界很普遍’很多雌雄异株植物、很多
昆虫(比如果蝇’果蝇的性别是由X染色体对常染色体的比例决
定的)`某些鱼`某些两栖类`全部‖甫乳动物等的性别决定都是
XY型。
XY型有_种特殊形式: XO型性别决定’它多见于蝗虫、蠕蝉
等直翅目昆虫。雄性个体所产生的精子有两种’—种含有X染色
体;另—种仅含常染色体而没有性染色体。雌雄配子结合后所形成
的受精卵有两种类型’分别为XX和XO。前者表现为雌性’后者表
现为雄性’两者比例为1
: l。有学者认为XO型性别决定方式是Y染
色体在长期的进化过程中逐渐变短而最终消失的结果’或许再过
—百万年’人的Y染色体也会逐渐消失演变为XO型性别决定。
′48
′
促
碱
粹
′
~
鳞
沁
》
化
…
刑■
(2)ZW型性别决定
这种类型的性别决定方式和XY型性别决定刚好相反’雌性动物
体内有两条异型的性染色体ZW’雄性个体内有两条同型的性染色
体ZZ’如蝶类`蛾类、鱼类和鸟类等。
鳞翅目昆虫中的少数个体的性别决定方式为ZO型’雄性个体含
有两条Z染色体(ZZ)’雌性个体缺失W染色体’只有_条Z染色体
(ZO)。雄性产生含Z的精子’雌性产生含Z和不含性染色体两种比
例相等的卵细胞’雌雄配子随机结合后形成ZZ和ZO两种比例相等的
受精卵’之后分别发育成雄性和雌性个体’因此’ ZO型性别决定的
生物雌雄比例也是l
:
l°
(3)单倍体型
蜜蜂分为蜂王、工蜂和雄蜂三种’蜜蜂的性别是由单倍体和二
倍体决定的。雌蜂是二倍体(蜂王和工蜂)’染色体组成是相同的
(2″=32)
’
由蜂王的受精卵发育成;雄蜂是单倍体(′′=l6)
,
由
蜂王未受精的卵发育成。
■
\<ˉ里
2性别分化
(
{)营养对性别分化的影晌
蜂王的受精卵是发育成为正常的雌蜂(蜂王)’还是发育成不
育的雌蜂(工蜂)’取决于营养条件对它们的影‖问°营养条件中的
蜂王浆对蜜蜂的性发育起着重要作用。蜂王终生以蜂王浆为食’蜂
王的_切特征都来源于此’而工蜂只在刚出生的头两三天能够吃到
蜂王浆’以后只能以蜂蜜`蜂粮等混合成的乳糜为食。
(2)温度对性别分化的影晌
某些蛙类的鹏料在20℃条件下发育’雌雄比例大约为l
: l’如
果让这些鹏斟在30℃条件下发育’则不管其性染色体组成是XX还
是XY’都发育成雄蛙。XX型的鹏斟在高温下发育成的雄蛙’性染
色体组成仍是XX’高温只改变性别的发育方向,并不改变其性染色
体组成°还有密西西比聘在30℃和低于30℃的条件下孵化’全为
′49
●
〃
抑
″√
7}
翅′
`越′娜
′
~
、罕彦
…
、
|‖口高中生物疑点逾
雌性;在34{〕和高于34℃的条件下孵化,则全为雄性°温度对上
述动物的性别分化起着重要作用的原因’是温度对这些动物的性激
素的合成有着直接的影响。
(3)激素对性别分化的影晌
性反转是指生物个体从—种性别特征转变为另—种相反的性别
特征的性别转变现象。性反转现象是性激素影响性别发育的最生动
的现象’如产过蛋的母鸡’有的会变成可育的公鸡’出现“北鸡司
晨’的现象。因为鸡在胚胎期具有雌雄两种原始性腺’在个体发育
过程中’只有左侧卵巢发育’并具功能’右侧卵巢保持在原基状’
如果母鸡左侧卵巢发生病变受到损坏’则右侧未分化的卵巢便转变
为翠丸’产生雄性激素’出现公鸡的第二性征’从而变成能生育的
雄鸡。性反转只发生在生殖腺性别水平以及由此引起的表现型的变
化’而不涉及染色体性别的变化°
§
●●●●●●●●●●●■●●●■●
●●●●●■●●■●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●
∏
|
主要参考文献
0
[]|冯艳高中生物学教材中与性别相关的遗传问题0].生物学教学,201(
[2]黄伟林栈谈动物的性别决定方式[]]生物学教学’2()]5(4):63—64.
[3|北京大学生命科学学院编写组.生命科学导论[M|北京高等教育出
[4]刘植义等.遗传学[M]北京高等教盲出版社」982:98—102.
[5]衡卫国.生物的性别决定0].生物学教学’2004’29(12):29—30.
[6]杨建玉浅谈雌雄异体的生物性别决定的万式0].学园2()12(1):146.
[7]万志林’林光平曾本庆.生物的性别决定和性别分化[]|.生物学教学〉
[]].生物学教学’
)(1):6l—62
版社,2()()0:107
1993’18(1):45
●
[8]曹承和.栈谈性别决定万式[]]生物学通报2()08’43(1()):17
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
■
●
◆
●
●
●
●
●
●
●
●
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
′50
盯}
\…
第二篇遗传与进化
■=■=====■□==■■==■===========■===□■■==■■==■=■=■===■======】
类的SRY基圃是怎样一个基困?
二二三二三三三二二■=====■.…===========■==已==国===■========■==≈===
~
~
常
常染色质—
-MSγ
咱
徽
_
嗡
=
尸∧∩拟常染色体区
S只γ:雄性的性别决定基因
MSγ:男性特异区
染色质—
异
队∩_
人类的Y染色体示意图
砂
望
SRγ基因(sex-determiningregionofY-cllromosome’全
称: Y染色体性别决定区)是人体Y染色体上的—段基因
片段’该基因是决定男性翠丸发育的主要基因。该基因由
Sinclair在1990年发现’位于Y染色体短臂上。
MY基因是—个高度保守的单拷贝基因’它所编码的
蛋白质是_种转录因子’它通过与特异的DNA序列结合’
实现对其他受控基因的转录和表达的调控。这个过程中
SRY基因起着开关作用’与人类性别决定密切相关’有人
认为它就是性转换因子°在胚胎发育过程中’第—个月胚
胎含有原始的卵巢组织和翠丸组织’以及两种生殖导管’
但随着胚胎发育’两种性腺组织和导管中只有_套得到发
育’另—套发生凋亡。有了性转换因子’原始性腺就向翠
′5′
●
●
●
●
凸
例
…
\
…
中
扒
雁
趣趴』狐`
″i
▲
呜
〃
>酗
吃≤…
丸组织方向分化,最终发育成翠丸。否则’原始性腺将发育成卵
巢。此后的性别及第二性征发育就依赖于雌`雄性激素的作用。
目前认为’ SRY基因就是唯——个性别决定基因°因此可以
通过在血液`精液样本中寻找该基因片段’达到判断测试者性别
的目的°具体的步骤是’先使用PCR技术扩增基因上某个片段’
再利用凝胶电泳判断样本中是否含有该基因。若测试者是男性’
样本中存在该基因’测试为阳性。女性测试者将会得到相应的阴
性结果。
●●●●●●●●●●●●
主要参考文献]…………………………………………
●
●
●
●
~~
ˉ
0
[1]冯艳高中生物学教材中与性别相关的遗传问题0].生物学教学2()1()(1)6
[2]黄伟林.浅谈动物的性别决定方式0]生物学教学’2015(4):63—64
l—62
[3]北京大学生命科学学院编写组生命科学导论[M].北京:高等教育出版社,2000:107
[4]刘植义筹遗传学[M].北京:高等教育出版社’1982僚98—102.
[5]衡卫国.生物的性别决定0].生物学教学’2004’29(12):29—30.
[6]杨建玉.浅谈雌雄异体的生物性别决定的方式0].学园2012(1):146.
●
[7]方志林’林光平’曾本庆生物的性别决定和性别分化Ⅱ]生物学教学’1993’18(1):45
[8]曹承和栈谈性别决定方式0]生物学通报20()8,43(10):17.
●
●●●●■●●●●●●■●●●●●
●
■
●
●
■
●
●
■
●
●
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
■
●
●
■
■
■
■
■
■
■
■
■
■
■
●
●
●
■
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
′52
仰
●
●
融
γ
鳞
沁
飞
化
…
I
IIIII
■■→~■■■■■■■■■■■■■■=0■■■■■====■■=■=■■■■
■■■
■■=■■■=■■■■■=■=■■■=■=0■■■■■■
蝇的性别是曲什么决定的?
=■■■=■■■■■0■■■■=0■■■■■■■■■■■■■■■=■■■■■■■=■■■■■■~■=■■■===≡■■■■==■■■■
■…■■■■
∏
果蝇的Y染色体—不像人类的Y染色体—对性别决定没有作用。
相反’果蝇的性别是由X染色体对常染色体的比例决定的。这_机制是
在192l年Bridges通过对异常染色体组成的果蝇进行分析时首次证实的。
果蝇中×染色体对常染色体的比率及相应的表型
x染色体(x)
常染色体组(∧)
x:∧的比率
表型
雄采蝇
雄性
lX
2A
0.5
2X
雌性
2A
||.()
3X
超雌
2A
l.5
4X
超雌
3A
l33
四倍体雌性
4X
4A
l0
二倍体雌性
3X
3A
l.0
雌采蝇
间性
3X
4A
0.75
间性
2X
3A
0.67
四倍体雄性
2X
4A
().5
超雄
lX
3A
033
正常二倍体果蝇有—对性染色体(XX或者XY)和3对常染色体(通
常以AA表示)。这里’每个A代表—个单倍常染色体组。在复杂的实验
中’ Bridges构建了具异常染色体数目的果蝇。他观察到只要当X:A为l0
或更大时’果蝇为雌性;只要当X:A为0.5或
更小时,果蝇为雄性;而比例在05和l.0之间的
果蝇则具有两性特征°因此, Bridges称之为间
性。所有情形中,Y染色体均未对性别表型起任
何作用。然而,Y染色体对雄性育性有作用°
庄要…ˉ…
[1]斯纳司塔德’西蒙斯.遗传学原理
[M]赵寿元’乔守恰’译3版北京:
高等教育出版社’2011.
●●
●●●●●●●●●●●●●■●●●●●●●●●●●■●●●■●■●●●■●
●
′J3
`′″抛′『
、
|‖□高中生物疑点通
从性遗传是指基因在常染色体上’但由于受到性激素的作用’基因在不同性别中表
达不同的现象。
从性性状在两个
性别中都可以得到表
达’只是同_基因的
表达在不同的性别中
显隐性关系不同’在
不同性别中具有不同
的表现.
(a)非秃]页女性×秃顶男性
(b)「|女性×「‖男性
亲本‖9
非秃顶舞
亲本2d
秃顶
.ˉ
、
′忘耐
亲本表现型
「|表现型
〃
|〃
「|基因型
亲本基因型
D+D+
DD
@@|@@
配子
「|配子
亲本2d配子
h/
「|
″/〃了围
肋鳃
亲本|9配子
尸
「]基因型
全为″D
「‖表现型
非秃顶Q;秃顶d
「‖d配子
b/
串
厂
臼
嗡
〃
…
肋
/
D+
|/qD+D+
|/2D+D
|/4DD
-巴言-二-当
男女都
男性秃顶
男女
非秃顶
女性非秃顶都秃顶
男性中:秃顶:非秃顶≡3:
‖
女性中:秃顶:非秃顶=|
: 3
「|9配子
「2基因型
「2表现型
〃
●●
hh
厂
D
从性遗传一例—人类秃顶的遗传
典型的例子是人类秃顶的遗传’这种性状由常染色体上_对等位基因b+和b控制’纯
合子bb个体表现早熟的秃发’纯合子b+b则不秃发;杂合子b+b的表现型在男女中是不同
的’在男性中’等位基因b是显性的’所以表现为秃发;在女性中’它是隐性的’不发生
秃发°这样的等位基因的显性是受个体的激素平衡
影响的。
还有绵羊角的遗传也是这种情况’有角基因H
为显性’无角基因h为隐性’在杂合子H′j中’公羊
表现为有角’母羊则无角’说明在杂合个体中’有
角基因H的表现是受性别影‖问的。
庄…献隆……
~=
[1]冯艳高中生物学教材中与
性别相关的遗传问题0].生
物学教学’2010(1):61—62.
~
~
G
●
●
●
■
●
●
●
●
●
●
●
■
●
■
■
■
■
了
■
■
■
■
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
■
′54
G
G
IG
\铡′》d′v歪逃^仙
″
删^″Ⅵ
侧
″
b
〃
~
遗传与进化
■
p
困|突翌
■
■
司
■
■
≡
=
∩
Iˉ儿
『→
|
=
=
(a)正常红细胞
7400×
(b)镰刀型红细胞
7400×
基因突变导致性状改变一例
“基因突变’’是指DNA分子中由于碱基对的替换`增添和缺失而引起基因结构的改
“性状改变’’是指因环境或遗传物质的影响而使个体外观表现变化°
变;
5』∏ˉ0ˉ■U『U3,—『"∩‖∧
3,山且ⅢⅢ且5.—0"∧模板链
基因∧
基因B
厂—二ˉ一
基因0
贴
\
」
■
■
顶
■
届
已
■
■
』
=
雪
‖
‖|
『
■
自‖0■圆|「
‖
I
I
「‖
G‖
|0|
|0|
|0
h
用丽愿鸿厕
■凹
基因间D‖∧
(a)
基因间0‖∧
正常染色体D‖∧
—多肚
「
]
}
『
■
=
■
■
■
°
飞
巳
‖
…
5』∏0ˉm『『3,—"R"A
3』霹I且且I』且5』—0"∧模板链
基因∧
基因B
基因0
‖
‖
亩
|
-气
贴
\
」
■
■
歹
▲
禹
二
■
■
」
』
一
帝
)
‖
〗
∏
丫
|
■
』
二
|
|
|
|
|
|
基因间D‖∧
基因间D‖∧
(b)基因内碱基序歹|」改变引起突变
基因突变导致性状改变机理
′5J
■
″′ˉ′『
《〃『
=
|‖·高中生物疑点逾
低
硼
D‖∧
3′
(信息储存)
~
^
<
√
5′
基因型
~
尸
√
∑
∏R‖∧
(信忌载体)
5′
↓翻`
蛋臼质
(黑皮质素受体)
~
~
~
~
~
′
↓
∏
日
陆地的老鼠
面
表现型
沁
刹
…
霉
带有这种D‖∧序列的老鼠有浅色的皮毛
(b)基因型的差异可能导致表现型的差异
带有这种0‖∧序歹||的老鼠有黑色的皮毛
(a)遗传信息从D‖∧至|」R‖∧至|」蛋曰质
基因突变导致性状改变实例
基因突变不—定改变生物的性状’原因如下:
(l)内含子突变’性状不改变。
(2)某些氨基酸有多个密码子’因此基因突变也可能
不会影响到性状的改变。
(3)对于完全显性性状来说’如果是隐性突变’杂合
子的性状可以不改变’只有当基因分离后隐性纯合子的性
状才发生改变。
■●
几对概念
7—68,
●
●
●
●
●
●
●
●
■
■
●
●
●
●
●
●
●
●
●
■
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
β
●
′56
0ys
〕
『
巳
∧
Leu
∧『g
∧S∩
Lel0
渺
/
磷
…
」
\
化
阿
严
峨
α′``碱鹏吻`
、
己≈…
″
a
■
困突蛮只在分裂间期泼生蚂?
|
基因突变通常是由于间期DNA复制出错弓|起的’
由此就有教辅书推测说
基因突变只在间期发生。果真如此吗?
/
\
导致突变的常见原因
描
述
自发原因
|
0‖∧聚合酶出错可能导致点突变
0‖∧复制时发生错误
!
|
有害代谢产物
正常代谢过程中可能形成自由基等活泼的化学
物质,它们能改变0‖∧的结构
核昔酸结构改变
某些偶然情况下,
‖票岭与脱氧核糖之间的化学
键会发生断裂°碱基结构的改变(异构化)可能
导致0‖∧复制时发生错误配对
转座子是—段能插入基因组多个位点的小的D‖∧
片段°当它们插入基因内部时’可能导致基因
失活
转座子
诱发原因
香烟中的苯并(a)蓖等物质可能导致D‖∧结构的
改变
化学因素
紫外线和X射线等物理因素能对0‖∧造成损伤
物理因素
|
\
/
不可否认’基因突变主要与DNA复制出错有关’但引起基因突变的因素
包括外部因素(物理因素、化学因素`生物因素)和内部因素(DNA复制偶
尔也可能发生错误或者碱基组成发生改变)。若细胞长时间受紫外线照射’
′57
′"触vⅡ硼『脯
抑ˉ″栅幽′M″捻′『`碘
|‖口高中生物疑点通
w》
′
′w
′~~
测〈
可能使DNA中部分胸腺啼陡以环丁基环形成二聚体
(这种变化在DNA链上相邻的胸腺喀陡核昔酸间易
发生)’进而使DNA的复制和转录受阻’这属于基
因碱基对的改变。紫外线照射形成环丁基环在任何
时期都可能发生°
在自然条件下’碱基会自发发生“脱膘吟作
用’’
(核昔酸中连接碱基与脱氧核糖的糖昔键发生
断裂造成膘‖令脱落’使DNA长链出现光秃的脱氧核
糖残基)和“脱氨基作用’’
(如胞嘻陡在37℃条件
下易发生脱氨基作用’生成尿喀陡核昔酸—胞喀
陡和尿嘻陡只相差—个氨基)°如果得不到修复’
则DNA复制时C-G配对将变为U-A配对°
另—个有力的证据是’至今发现多种细胞(其
中包括不分裂的细胞)都可能发生癌变’如Ⅲ管
瘤、肝癌等。这也可以说明基因突变并不只是在间
期发生’而是任何时期都有可能发生。
■
\<Ⅲˉ4
‖
献
文
考
参
≡
女
主
GGGGGGGGGGGGGGGGGGGGGGGGGG
[l|樊|旬利基因突变只发生在分裂间期吗?0]生物学
教学,2014,1l:80—8]
[2]刘祖洞遗传学[M].2版.北京:高等教盲出版
社’1991:5()—69
[3]朱玉贤’李毅现代分子生
教育出版社’20()7:50—52
子生物学|M]2版.北京高等
●
●
●
●
●
●
■
●
GGGGGGGGGGGGGGGIGGGGGGGGGGGGGGGIGGIIGGGGGGGGGGGGGGGGG GGGGG
G
/5『
凸
鳃^′娜∩卜…趴翅′…趣′M`谬爪`/陌
硼》硼切√v、二
燃
第二篇遗传与进化
扒`删
仆
么?
■p
≡
铜
■
口
凸
匣
■
■
■
■
■
∏
可
=
=
■
∩
剥9|‖焊引惯恬
】ˉl
P→
■
‖
|
‖
Ⅲ
∏
紫外线(UV)是太阳光中可以使人晒黑和灼伤的成分’其能量比电离
辐射小得多’它不能弓|起原子激发出电子’因此不会产生自由基°能够吸收
紫外线的分子是那些有机环状化合物’当它们吸收紫外线后’外层电子变得
活跃起来。
DNA的喀陡碱基(胞喀陡和胸腺喀陡)对紫外线有很强的吸收作用°如
果相邻的两个碱基恰好都是嘻陡碱基的话’当它们吸收紫外线能量以后’彼
此之间会形成共价键形成喀陡二聚体(pyrimidinedimer)
。
■E■
紫外线
户=
\
/
尸
、
(,
幂司≥绞结
P
膨
紫外线引起基因突变的机理
大多数情况下’细胞内的紫外线辐射修复系统可以将连接喀陡二聚体的
共价键打断’或者将喀陡二聚体从DNA分子铸卜辖个切除’再利用另_条完
整的互补单链把缺口补上°
′59
毋
Ⅷ`^胁′卵
、
|‖■高中生物疑′点通
损伤的碱基
5
3
偶尔也会发生喀陡二聚体切除
处未被处理的情况’这时DNA聚合
酶无法复制形成二聚体的部分,就
跳过该部分继续前行’把填补缺口
的任务留下。不过’以后的填补经
常发生错误’因此可能在缺口处产
生基因突变。—些未被修补的喀陡
二聚体由于本身是单链结构’可能
阻碍整个DNA分子的复制进程’这
对细胞来说将是致命的。
阳光中的紫外线容易引发细胞
突变’因而将对皮肤造成严重损
害。实际上’
由于曝晒引起的细胞
DNA损伤和皮肤癌有直接关系。过
度的日光浴对人体健康有害!着色
性干皮病(xerodeImapigmentosum)
是—种罕见的遗传疾病’患者对紫
外线的耐受力很差’轻度紫外线照
射就能引起发病。由于这种病的患
者体内缺少紫外线引起的DNA损伤
的修复机制’紫外线照射就很容易
引起大面积的皮肤肿瘤°由于喀陡
二聚体的切除和修复需要多种不同
蛋白质的参与’
8个不同的基因发
生突变就会导致疾病。
3
3
′
5
′
0
∧
5
′
3
′
■
′
∩
≤
√
3
』
′
厂
◎
巴
C!—
~A~~
6■∧
3
′
5
′
丹
修复损伤
—
3
′
5
′
5
′
3
′
DNA损伤修复
|主…Ⅻ
[1]拉弗’约翰逊生物学[M]
张荣庆’张贵友’译6版
华大学出版社’2008.
●●●●●●●●●●
●
台
谢莉萍
北京:洁
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
~
~
~
′60
G
G
G
|
{
趣′《财』
`弦
仰
仰霜鹅′\`训′
峰越′`
第二篇遗传与进化
=■■==■■■■■■==■■■■■■二■■■■■■■■
0■■=0■B■■■■■■■■■凸==■■■■■■■←≡■■■=■‖■≈…≈■■■■■==■≈亡■■■~0■■=■■■==■■■■■■■■■■=
圃突蛮是愿核生糊雕一的蛮异来源隅?
■■=■■■==■■■■■■■■■■=■■■■■■■■=■■■=■■■■■■=≈=~■■■■■■■■==■■■■■■□=…■■■■■■■■■■■■■■■■■■■■■■■■■■=■■■■■■■■=■■≈===■■■■■■
对于原核生物来说’
目前高中教材只提到有拟核’并无染色体’那么’它的变异来
源是不是只有基因突变呢?
以肺炎双球菌转化过程为例’加热杀死的S型细菌(供体菌)的I)NA片段(dsI)NA)
与感受态R型细菌(受体菌)细胞表面的膜连DNA结合蛋白相结合,其中_条DNA单链
被核酸酶水解’另_条DNA单链(ssDNA)进人R型细菌细胞中’被R型细菌细胞内的特
异蛋白RecA结合’并使其与受体菌核区环状DNA分子上的同源区段配对重组’形成_小
段杂合DNA区段。
此外,
“接合”和“转导”也可以通过实现细菌DNA序列的转移而产生基因重组。
v
~~
~
~
D‖∧Ⅲ制p并从-个细胞转~….
移至另-个细胞
}
〔
」
迅
‖
』
【
『
『
「
}
|
」
巴
∧
‖
日
组
Ⅲ
成
…
形
…
的
~
′
」
|
|
…
~
~
|
卜
|
|
~
~
这
避
∩
冈
川
胞
契
—
细胞质相接形成桥
供体细胞
受体细胞
—
~
转移的o‖∧进行
|复制
~
(a)接合
~
~
受体细胞吸收
裸露的0‖∧
/
D‖∧
l上p『[
′可钮
(b)转化
|凿狱
|
|藤瞬鳃菌
……在D‖∧复制时
将细菌0‖∧裹在其
中°细菌细胞裂解
‖鳞$
释放的病毒感染新
的细菌……
……这些病毒
带有细菌的
D‖∧
·…0·王组0‖
的形成
〔
一/
、`
≡
′
〈||′′
↓′〕
乡
…
○
○
○
一▲
|
|
-
{—
-}″、
←
(C〉转导
原核生物的几种重组类型
‖……….………`
■主要参考文献
~一
[1]陈晨关于“肺炎双球菌转化,’的几点认识
:
0]生物学教学’2()()9’6:73~
:
[2]艾伯茨细胞生物学精要[M].丁小燕’陈跃
|
磊’等译3版北京:科学出版社’2()12.
●●●●●●●●●■●●●●●●●●●●■●●■●●■→宁■
●■●●●■●●●■■■●●●●
●●
●
′6′
●
■
=
■
″`′鲤肌翅^′v
抑
"
″`\孤
刨′
‖
~
…
|‖口高中生物疑点通
■■■■■■=■=■■=■■■■■■■■=■■=■■■■■=■■=■■■■■■==■■■■===■■■■■■■■■■■■=■■■■→=■■■=■■■■■■
■■■=■■■■■■=■
蛮率『0突蛮频率是‖司一个概念旧?
■≈=■=…■‖■■■■=~=≈≈≈■■==■■■■=■■■■■■=■■■=■■■■■==■■=■■■■■■■■■■■■===■■
·■■=■■■≈■■■■■■■■■■
■■■=■■
不同生物的不同墓因的自发突变频率
突变频率
基因决定的性状
生物
青霉素抗性
肺炎双球菌
l.0×l0′
l.0×l0ˉ6
l.0×l0ˉ5
皱缩种子
紫色种子
玉米
lˉ0×l0ˉ5
无色种子
2ˉ0×l0ˉ3
血友病
p
2.0×l0ˉ〕
视网膜色素瘤
人
50×l0ˉ5
软骨发育不全
突变率(mutationrate)是指在单位时间中’_个细胞发生某_突变事件的
概率。
突变频率(mutationhequency)是指单位时间内’发生某—突变的细胞占细胞
群体的比率。
可见’突变率与突变频率的含义相同’可以通用。
突变体频率(mutantlTequency)指突变体在群体中所占比率’与前两个概念就
不能通用了。
|主要参考文献‖..………
~一=
[1|刘欣ˉ高中生物遗传与变异教学
中几个问题解答[]]生物学教
学’2011’36(2):69—70~
●
●●◆
●●●●●●●●●●●■●●●●●●●●■●●■●●●●
′62
侧》
′″辩}
\′』(
!『
0
『
可’丫
飞
=
电
‖』
午=
『、
《
襟
隧
第二篇遗传与进化
■
■■=
∏
襄性纤维病(CF)致病基因控制合成的
囊性纤维化跨膜转运调节因子(cysticfibrosis
transmembraneconductanceregulator’ CFTR)’是
—种环腺昔酸(cAMP)激活的ATP门控氯离子通
道蛋白’其作用是控制氯离子进出细胞。同时’
电生理实验证明’钠和氯离子通道之间存在协同
作用’钠离子的转运也依赖于CFTR的帮助。当
基因突变时’会使氯离子`钠离子和水进出细胞
受到影响。氯离子在细胞内积累’
黍占液中过多的
钠离子转移进细胞’破坏了细胞的电解质的平
衡’水分从黍占液中转移到细胞和Ⅲ液中去’使黍占
液丢失水分而变得稠厚。
细胞外水分缺失’
黍占液堆积增多’于是呼吸
道管腔中形成栓塞而表现不同症状。在肺部’支
气管内黍占稠的分泌物阻塞了小气道’
黍占液层利于细
菌生存,最后引起严重的`弥漫性的支气管扩张。
CF的发病机理为全身外分泌腺细胞分泌的黍占
液不能被及时清除,进而引起阻塞和感染。
CFTR异常除了引起慢性阻塞性肺部疾病
外’还可诱发其他多种疾病’如胰腺导管被阻塞
导致胰腺外分泌功能不全’或使汗腺分泌异常。
气管内壁
细胞
气管内壁
细胞
0「丁R
蛋臼
呼吸道
管腔
|
/→叮
pD
~』韩液
=
(a)正常气管内壁细胞;湿滑的茹液
(b)囊性纤维病患者的细胞;被病菌感染的茹稠的茹液
跨膜区域
α)飞≤/~`
细胞外侧
{{{‖厕
细胞|
州↑》
‖(}{{(}
}
‖≡—
缺失突变——ˉ
的位点
@
调控区域—
核昔酸结合区
■0
细胞内侧
(◎)0「『R蛋臼(囊性纤维化跨膜传导调节因子)
囊性纤维病致病机理
|主要参考文献‖.………….……·…………
●●●●●●■●●●●●●●●●●●●●●●●
[1]李晓聪.有关囊性纤维病病因的释疑0].生物学教学.2012’37(3):74
[2]王培林遗传病学[M]北京:人民卫生出版社’2000:788—7|
[3]王平魏睦新ˉ囊性纤维化跨膜传导调节因子基因突变与
学杂志’2009’25(3):490—492.
[4]郭晓强.CFTR型氯离子通道研究进展0].生命科学’2007’
}:788—79()
呼吸道疾病[]].实用医
●
●
●
●
●
l9(2):189_193.
●
▲=▲■■▲■■■●●●●●●●●●●●●●●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
■
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
′63
●
由
●
●
●
●
●
●
●
●
●
;趣k』仙
"
灿′
|‖□高中生物疑点通
==■■■≡≡=~==■■=二■■■====■===■=======================■】
如侧‖x分易位与交叉互换?
=…====■=========■==宇==■=■=≡■■≡==■■■=============■■亡】
同源染色体对
丽雨丽睬
染色单体染色单体
′_—
原有组台类型重组类型
o
囚减数第二次分裂后,子代细胞
有以下基因组合的类型:
∧ˉB组台`
a_B组合`
aˉb组合和∧ˉb组合
~
屯
「
世
■
叮
日
愚
叭
|
『
■
』
I
!
交叉
←
二
=
卜√
[=百
卜i』
‖
~
卜
=
^
■同源染色体配对
回同源染色体的非姐妹染回减数第-次分裂时
色单体发生交叉互换
同源染色体分开
同源染色体交叉互换
≈
′
、
‖
■
■
·
■
`
甲
T弘
…
h
■
铂
p0….…■=·m0■
·刨qD
∩
□
<
匡
‖l
〃
{
孰
染色体断裂
染色体断裂
巴
■
…
Ⅷ
↓
凸卫户Ⅷ
凸『O■丘ˉ
~
、
庐
染色体结构变异之易位
|
叮
染色体涂染法显示染色体易位
交又互换与易位比较
‘交叉互换”是指同源染色体的非姐妹
染色单体之间的部分交叉互换’可导致基因
重组°
‘‘易位”是指染色体的某—片段移接到
另—条非同源染色体上引起的变异’大前提
是两条非同源染色体之间片段的转移,属于
染色体结构变异。
|
●●●●●●●●●■●●
)主要参考文献
●
●
●
●
[1]高洪图.辨析有关变异的
几对概念[]]生物学教学’
2011,12:67—68。
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
■
●
■
●
●
●
◆
●
●
●
●
●
●
●
●
●
●
‖
●
′64
赋,〃“
爪
叼
‘′‰"/v
℃
第二篇遗传与进化
色体数目异常有"‖些类型?各有什么表舰?
=≡=←一-ˉ-…~≡==…-…=~-=~ˉˉˉ≡=-≡≡-ˉ-≡≡‘ˉˉ==-,==≡..ˉ-=…ˉ一ˉ≡=≈=ˉ≡=
47,X》《X核型X三体个体为女性’表型正常或几乎正常;有些
时候’会有轻微智力损害或生育力降低。
47, XXγ核型他们是男性,但他们会显示某些女性的第二性
征’并且通常是不育的。1942年H.F.Klineklter描述了与此病有关的异
常性状’因而被命名为克兰费尔特综合征(Klinefbltersyndrome)。症状
包括小翠丸`胸部变大、四肢修长`双膝内翻`体毛少。
″
=
翻
巴
、
毯
滥
、
_
=
且
队
脚
仙
々
●
■
田
ˉ
尚
△
■
ˉ
■
●
■
沪
’
铀
汾
ˉ
体
°
鳃
ˉ
憾
ˉ
口
忌
ˉ
▲
朋
…
Ⅷ
…
"
旧
色
染
γ
●
已
γ
斜
Ⅻ
|
∩
日
佃
们
■
义
多
钾
●
·
自
▲
仿
′
嚼
嚼
·
吧
《
佩
●
●
■
■
≡
~
日
^
…
…
…
…
严
Ⅷ
耐
"
●
川
■
Ⅸ
…
“
且
·
且
●
′
■
∩
。
′
●
″
愚
飞
≈
^
∩
日
■
』
●
邑
凹
β
『
铜
囚
守
■
叮
』
由
Ⅳ
■
〗
~
你
自
∩
闰
剧
日
≡
佃
℃
■
归
门
■
≡
^
·
●
俏
●
句
|
■
尸
巳
|
·
矽
■
多|条染色体
向
田
■
仿
铂
伍
■
^
臼
■
∩
》
丛
砂
’
≡
▲
三
圆
图
了
司
′
〃
◆
□
■
∩
甸
巴
^
α
甲
囱
■
=
~
■
目
■
夕内铲
q`0
db
6
句饲
局闪
●怕
||
^·
0Q
‖6
8~8
|9
M
20
克兰费尔特综合征(K|jne企ltersvndrome)
47,Xγγ核型是另_种人类中可存活的三体。这种核型的个体
为男性’与反社会行为间可能有联系’但尚未有足够深人和完全的研究
以下定论。
人类除上述的三种三体外’其他性染色体异常的三体—般会引起胚
′65
●
●
●
●
■
●
●
●
●
"划′
′~遥
d′刷
|‖口高中生物疑点通
胎致死。
45’ X核型表型上为女性’但因为她们的卵巢发育不良’所以几乎不育。个体通
常身材矮小’具有践颈’听力障碍’心Ⅲ管有明显异常。HenIyHTurner率先于l938年描
述此症状’故被命名为特纳综合征(Tumersyndrome)
。
|临床
综合征
新生儿估计
患病率
染色体
组成
表型
核型
‖
|
目
|
月
|
」
短而宽的手掌,掌纹深’通贯手’身材矮
小’关节过于灵活’智力损害’宽额圆脸,
舌大并伸于口外’内毗赘皮
1/700
47`+2l
2〃+]
[)OWI】
智力低下’耳聋’轻微肌肉抽搐’唇裂和
(或)胯裂’先天心脏病’后跟凸出
l/2000
2″+l
Patau
47.+l3
许多器官先天畸形’低位畸形耳’上颖后
缩’嘴和鼻子像小孩那般大小,智力低下’
马蹄形肾或双肾’胸骨短’ 90%的患者在出
Edward
l/8000
2门+l
47.+l8
生后6个月内死亡
出生女孩的
l/2500
45。X
2门-]
rumer
出生男孩的
1/500
Kline允lteI
2′I+l
47,XXY
2″+2
48`XXXY
2门+2
48·XXYY
49.XXXXY
2″+3
50,XXXXXY
2刃+4
女性.性器官_般正常,生育力受限’轻微
精神发育迟缓
X三体
47XXX
2门+]
l/700
|窒…"
[1]斯纳司塔德’西蒙斯遗
[M]赵寿元,乔守恰,译
高等教育出版社,2011.
●●●■●●●●●●■
传学原理
3版.北京:
■$●
●●◆●●●●G●●●●●●●●●●●●●●●●●●●●●●●
●
′66
■
●
●
●
◆
■
``孤`
`ˉ硼
`棚孤
…
铆
′7`
矾``、洲″
″
第二篇遗传与进化
凸=====■□=≡□■====】
均呵盲?
≡二二■■■≡二■□■===■乙】
召‖加是孕
=
■
≡
/7弓了
/)
|`\\
一_
=
ˉ~
b
1
~~~
′
\
□
∏
~
~
~
~
~
~~
~
~
~
~
~
~
~
~
|
~
|
(
|→
|
→
′
k
/
′
/
=
二
ˉ—
/
′
/
≈
=
巴=
—
′
~
~
三倍体的减数分裂
奇倍数多倍体联会紊乱’高度不育。那么’偶倍数多倍体的
育性就完全正常吗?
不—定。
以同源四倍体为例’减数分裂时4条同源染色体可能结合成
—个四价体’也可能形成—个三价体和_个单价体’还可能形成
两个二价体以及_个二价体和两个单价体’最后使四分抱子中含
有异常的染色体数。
可见’偶倍数同源多倍体也具有不同程度的不育性°相反’
大多数偶倍数异源多倍体则是可育的。例如’六倍体小麦细胞中
含拟斯贝尔脱山羊草`—粒小麦和方穗山羊草的各两个染色体
组’减数分裂时同源染色体两两联会`分离’表现出与二倍体相
同的性状遗传规律。
=…`……
●■●●●●
|
[|∏{欣高巾生物遮传…敦学
●
中几个问题解答[J]生物
学.2()11’36(2):69—7〔).
学教
●●■
p●●●●●●●●●●●●■●●■■■●■■●●●●●●●●●●■●●●●●●
●
′67
御
″严趣′q‰′″沁′`删切
′
′
世罐
砸』扒
哪∩`鹏W
↓
|‖□高中生物疑点通
■
≈■■
■■=F
驴
~0
在二倍体生物的减数分
裂过程中’联会后的每对染
色体含有4条染色单体’叫
作“四分体’’ °二倍体生物
体细胞中有几对同源染色体
就有几个四分体。
_厂一
四分体
重组后的染色单体
四分体示意图
“四倍体’’则是指体细胞中含有4个染色体组的个体,如马铃薯就是四倍体。
同源多倍体
异源多倍体
二倍体
二倍体
二倍体
||↑{<
|
「———
↓
四倍体
三倍体
四倍体
同源多倍体与并源多倍体
}=文"
[1]高洪图.辨析有关变异的
0]ˉ生物学教学’2011’12:6
●
●
●
几对概念:
7_68
8
●
●
●
●
●
●
●
●
●
●
●
●
·
●
●
■
■
■
■
●
守
●
●
■
■
■
■
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
′6g
Q
●
●
●
◆
■
●
萨|吵叭抑`Ⅺ奶`
』严
例》
′
‖|0
、占
旧
第二篇遗传与进化
■
p
■■■■■■■■■■■=■■■=■■={■■
■■■■■■≡==■=■■■■■■■…■■■■■0■■■■■■■■■=■■■
■■■■■
体与三倍体有侧区别?
■■■■===】
p
■■■■■■■■≈
■■
■■■■■■■■■■■
~
“三体”是指二倍体中的某_对同源染色体因变异而增加了_条’比如
人的2l号染色体多了—条而成为2l三体综合征(先天愚型)
。
“三倍体’’是指体细胞含有三个染色体组的个体’可分为天然形成的三
倍体(如香蕉)和人工诱变形成的三倍体(如无子西瓜)
。
|
(X)
4
肌
§0
pM
有些三体患者生殖器官发育不良’近乎
不育(如Kljnefelter综合征’
47’XXY)’而有
些三体即使能生殖’但产生畸形后代的可能
性大大增大’从遗传病预防角度来看’应避
免遗传病患儿的出生。三倍体则因为不能进
行正常的减数分裂高度不育°
彰|室霉…
[1]高洪图.辨析有关变异的
0]生物学教学’2011’12:6
几对概念
7—68
′69
尸h|仰
硼
卿哗抓″′
…
|‖□高中生物疑点通
】
|
|
】~
~
≈≈■■■=~■≈≈■■■■■■■■■■■■■■■■■■■■■■=■■==宇■■■■■■■■■■=======■■=■■■■■■■■■■=■■=■=…==■■■■■■■=■≈=■■■■■■■■=■■■■■■■■
水Ⅷ素诱导染色体数目"倍的机捌是什么?
======■■=■■■
■■■■■■=■■=■■====≈≈=■=■■■■=■■===■=≈==二■■■■=■■■■=■===■■=■■■■■=■■=■■■→=■■■===■■==字=■■■■■=
秋水仙素特异性抑制或破坏纺锤
|『—c№
监憋瞧瞧鞠|筐
|‖N‖
结合的部位’如果结合的部位被秋水
(|||素结合’微管不仅不能继续聚合’
O
而且会引起原有微管解聚。秋水仙素
』=
O
||
C-C‖3
C
O-C‖3
‖
‖ ‖」ˉ□二=√‖人巴/灸」、/门|/Z儿曰m十刻≤○
′‖/`/』、‖ 』ˉL0刁已
就是通过干扰微管装配`破坏纺锤体
秋水仙素的分子结构式
形成’从而终止细胞分裂°
秋水仙素对蛋白质的合成等代谢活动没有影‖问或影响较小°当细胞进行分裂时’染
色体的复制`着丝点分裂等生命活动仍可正常进行。虽然纺锤体的形成受抑制或破坏’
结果导致细胞不能分裂,但姐妹染色单体仍能最终分开’因此细胞中的染色体数目成倍
增加’并进_步形成_个染色体数目加倍的细胞核。
‖||
染色体加倍过程示意图
随着时间的推移’秋水仙素因
代谢而降解,其浓度不断下降’以
致不能再抑制或破坏纺锤体。于是
纺锤体又能重新形成’介导上述染
色体数目加倍了的细胞正常完成分
裂、分化’经过_段时期以后’最
终发育成只有染色体数目加倍的组
织或器官’直至新个体产生。
主要参考文献‖……….·
●●●●●●●●●●●●●●●●●●
甲
●
●
[1]周明龙秋水仙素诱导染色体数目加倍的机制0]
:
|
生物学教学2()12’37(8):49—50
i
|
[2]邓过房对人教版《遗传与进化》教材中几个问
:
|
题的探讨0]生物学教学2()15,40(6〉:68—69
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
■
●
●
●
●
●
■
■
●
●
●
●
●
●
=
■
二
■
■
●
●
●
●
●
■
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
‖
●
′70
I
G
GG
删`|严…′!{…〃′扒卿
哪孤…卿{…州狈
严
愿腆
=p…卢
第
篇遗传与进化
l
△
==■==■■■■■========■■■===■■=========岳■■■=■===■==■============■
瓜甜二倍体花粉刺激有什么附?
山
二
=
剖『
Ⅲ
=
『
~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~
∏
三倍体西瓜的植株在减数分裂过程
中’染色体联会紊乱’因而不能形成正常
的生殖细胞°授以二倍体西瓜成熟的花
粉’并不是完成受精作用’而是刺激子房
壁产生生长素’促进子房发育成果实。
首先’在三倍体植株上授以二倍体西
瓜花粉后’花粉在柱头上萌发的过程中’
将自身的色氨酸转变成∩引|垛乙酸(生长
素)的酶体系分泌到三倍体西瓜子房中
去’引起子房合成大量的生长素°
其次’二倍体西瓜花粉本身含有生长
素’在授粉后也可扩散到子房中去°
这两种来源的生长素均能使子房发育
成果实(三倍体无子西瓜)
。
三倍体无子西瓜培育过程
主要参考文献‖ˉ………………………………
●●■
[1|管明星三倍体无子西瓜培育的几个疑难问题分析‖].中学生
物教学.2()13(1):72—73.
[2]吴小敏小议三倍体无子西瓜0]中学生物学’2()()7’1():41.
[3]胡四新.无子西瓜培盲过程中的有关疑问|J]中学生物学’
2{)O9’7:5—6。
|4]吴杰.浅析三倍体无子西瓜培育过程中的问题[M]//中华教
育理论与实践科研论文成果选编:第七卷’20l4:2
00
●
●
●
●
●
G
●
●
●
●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●■■■●●T■■●■●●●●●●●●●●●●●●●●●●●●●●●●
●
●
′7/
●
●
Ⅷ频〃瓜=′娜"饥
|〃狮、
严′』哪7Ⅱ′抑』’〃7′`|′
幽
哗
|‖□高中生物疑点通
■
F
■■■■=■■■■■■■■■■=■■■■=■■■■■■■■■■■■■■■■■■==■■■■=■■■■■·■■==■=■■■h
B=■■■■■■■■■■■■■■■■■
育无子砸Ⅷ狗什么佣Ⅲ倍体做母本?
培育三倍体无子西瓜,—般用四倍体西瓜做
母本,二倍体西瓜做父本’进行杂交。所得西瓜
种子的种皮、胚和早期胚乳细胞中,所含有的染
色体组数分别为4`
3`
5°
如果用二倍体西瓜做母本’
四倍体西瓜做父
本’即进行反交’也能产生三倍体的种子’所得
西瓜种子的种皮、胚和早期胚乳细胞所含有的染
色体组数分别为2`
3`
4°
因为种皮是二倍体’比三倍体的胚发育快’
当胚发育成熟时’种皮已过度发育’会使珠被发
育形成的种皮厚且硬’影响无子西瓜的品质’导
致西瓜口感不好。
|
【
■
■
=
!
●●●●●■●●●●●●●●●●●●●●●●●●■●
主要参考文献
●●●
[1]刘欣.高中生物遗传与变异教学中几个问题解答
[)]生物学教学20]]’36(2):69_70
~
~
[2]管明星三倍体无子西瓜培育的几个疑难问题分
析[‖中学生物教学2()l3(]〉:72—73
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
′沤
^
碱Ⅶ孤
脸…^侧撇剧"`鹤`砂缝肌蹦^渺雨
抑
…
』
…『
二篇遗传与进化
第
样理解单倍体的高度不盲?
|
~
教材提到‘‘与正常的植株相比’单倍体植株长得弱小’而且高度不育” 。怎样理解
‘高度不育’’
?
对于藻类、真菌、苔薛植物`蔽类植物等生物来说’它们的单倍体阶段就是配子体
阶段’是其生活史中的重要阶段和不可或缺的组成部分。因此’它们的单倍体不会出现
不育问题°
对于较高等动物而言’单倍体少见,且很多单倍体动物难以存活’如小鼠的单倍体
在胚胎发育过程中死亡。
对于营社会化生活的蜜蜂`白蚁等动物中的雄虫而言’它们都是孤雌生殖产生的
单倍体,可以产生精子并进行正常的有性生殖过程°如雄蜂[蜂王和工蜂是二倍体
(2″=32)’雄蜂是单倍体(〃=l6)
]产生精子的方式很特殊:减数第_次分裂中染色
体数目不变’只是细胞质分成大小不等的两部分’大的部分含有完整的细胞核,小的部
分只是_团细胞质(退化消失);减数第二次分裂实质是—次普通的有丝分裂—在含
有细胞核的那团细胞质中’姐妹染色单体平均分配’每个子细胞各含有_组完整的染色
体’其结果是每个精原细胞形成两个正常精子’而且是可育的。
尸
四倍体
单倍体
二倍体
三倍体
不同倍性的玉米
′73
●
●毋
●●
●
句
■
NG
II
I
佣砸懒′
寇鹅
肪锄
|‖□高中生物疑点通
玉米`水稻等的单倍体是来源于二倍体的变异’其体细胞中只
有_个染色体组。在减数第—次分裂时’这种单倍体由于染色体不
能联会配对’每条染色体只能随机移向两极’因而形成有整套染色
体的可育配子的概率极低。如玉米(2"=20)的单倍体有l0条染色
体’只有当l0条染色体都移向同_极时’形成的配子才可育°按理
论计算其产生可育配子的概率为(l/2)|0=l/l024’所以’玉米的单
倍体是高度不育的。
对于来自多倍体的单倍体’有如下几种情况:
(l )亲代为同源多倍体。同源四倍体是由二倍体经染色体加倍
形成的个体’如四倍体番茄(4″=48)’其体细胞的染色体组型为
AAAA°来自这种多倍体的单倍体的染色体组型为AA’是—般的二
倍体’因而其减数分裂正常’可以正常联会并形成可育配子’但这
只是少数的例子。多数同源多倍体生物产生的单倍体是不可育的,
如三倍体的香蕉只能进行营养生殖。
(2)亲代为异源多倍体。异源多倍体生物产生的单倍体(如
普通小麦`陆地棉`小黑麦等)因细胞中无同源染色体而不能联
会’形成的配子几乎都不育°如小黑麦是八倍体(8″=56)
’用
AABBDDRR表示(A`B`D、R分别代表染色体组)’它的单倍体
有4个染色体组(ABDR)’每个染色体组的来源都不同’减数分裂
时无法联会’几乎不能产生正常配子’所以其育性极低。
]
‖
●●●
●●●●●●●■●●●●●●●●●●■●
主要参考文献
=
|
|l|桑连武.单倍体的高度不育0l中学生物学,
2()()9’5:8。
|2]李培肯.浅析单倍体的高度不育0]生物学教
学、20]1’11:65.
|3]李永奇.哪些单倍体植株高度不育0]中学生
物教学’1994’6;37.
[4]陈金宾单倍体高度不育的原因0]生物学通
报1991,8:37.
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
·
●
●
●
●
■
●
●
●
■
●
●
●
●
●
●
■
●
●
●
●
●
■
●
●
●
●
●
●
●
●
β
●
●
/74
毋
■
绚
a
川
7
~
第二篇遗传与进化
≡=====.…=■■====■===…ˉ■====■==■=≤■==■=….=====■==】
物杂交育种年‖触‖侧确定?
乙■■■■■■■■≈0■■
■■q■■■■≈■■■■■
■■
0■■
■■=■■≡■=■■■■=0■■■■■■■■■■~■■==■■
■■
0■■■■==■■■■■■■
~
杂交育种的过程_般包括两个阶段:杂
交`选优;连续自交`不断选优。其中杂
交`选优过程—般需要2~3年时间;连续自
交、不断选优过程则至少需要6年时间。总
合起来杂交育种过程_般至少需要8年的时
间。而其中又由于选优的目的不同’育种时
间又会有所变动。
以培育矮秆抗病小麦为例’从具有两对
相对性状的纯合子亲本杂交’即DDTT(高
秆抗病)
×〃//(矮秆染病)’到获得基因
型D〃D的种子(F|种子)为第l年;从将F|种
子种下发育为F|植株’到F|自交得到9种基因
型的F2种子为第2年;从将F2种子种下发育成
四种表现型的F2植株’到选出矮抗植株(含
两种基因型〃TT和〃T/)为第3年;最后让
矮秆植株连续自交’并不断淘汰不符合育种
目标的植株’直至获得可推广的理想种子
(纯合率达98%以上)’这个过程大约需要
6年时间。整个育种年限为9年。
如果优良性状是在小麦种子上表现出来
的’如种子的饱满程度`颜色等’则可从杂
交获得的F2种子中进行性状的筛选’育种年
限相应可减少l年°
■出
庄霍…u……
[1]周伟.‘‘杂交育种,’中的几个奥
0].生物学教学’20()9’34(8):71
伟.‘‘杂交育种’’中的几个疑
●●●●●■●●
点问题
|2]陈卫良.浅析杂交盲种的育种年限[)]
生物学教学’2()()4’11:55—56
●■●●●●●●■●●●凸●●●●●●●●■●●●●●●●●●●●●●●●●●●●●●●●
●
′贝5
●
Ⅷ`||趴
抑砸7Mv"V》|′
硼蹦′`″′『
抑』′』/v豆越
硼`′
|‖·高中生物疑点通
=…ˉˉ=ˉ===→■….一≡=≡=ˉˉ=≡一===ˉˉ-≡■====…...=≡=-ˉ=≡=
|
“症”与“综台征,,有什么区别?
[Zhe"g]
厂五笔
[Zh白【]g]
的病jb
IZh邑Ⅶg】
OG州D
病′瘸状.
[卫he∩g]
;
|ˉ
〔~结〕
日
。腹内结块
比喻|司题难解央的关键·
2ˉ (腐)
读言
雍
释义
症
[Zh即g]
筋
五笔丁G什G
‖远行°
2用武力制裁,讨伐.
3.召集。
4.收集.
5.招
语′寻求°
6.证明′证验.
7.表露出来的迹象□
读言
部首
轻义
征
“症状’’是指有机体因发生疾病而表现出来的异常感觉
和状态°
“症候”是指疾病、症状°
“症候群’’是指因某些
有病的器官相互关联的变化而同时出现的—系列症状’也叫
综合征。
由上可知,症(zh邑∏g)是病名,特指腹内结块的病;而
症(Zh白∏g)是疾病、症状。
“综合征’’是指症候群。而网上
出现的大呈所谓‘综合症’’是错误的名词’并没有这个说法°
区分“症”和‘‘综合征”有_个最基本的原则’那就是
‘‘是否是有_系列的症状”
’如果有’就称之为“综合征”
°
/
Ⅱ=文赋、…
[1]张伟. ‘症’’和“综合征’,
之辨析[J].生物学教
学’2016’41(4):71.……….
●
′=
唾
\二二出
●●
●●
●●●●●●●●●●●
●●
′76
峨
〃
第二篇遗传与进化
■
F
■■■■■■■■■
■■
0■■
0■■
■■=■■■■■■
■■≈■■=■■=■■■■■■■■■=■■=■■■■=■■■==■■■■■■==■■■■
q■■
■■■■■■=■
殖隔离产生的机删是什么?
≈■■■==■■■■■■=■■■■■■
0■■=■■=■■■■■■==■■==■■■■■■■■■■
q■甘
l■■
■■→■■■■■■■■■■≡→■■■■-■■■■
↑.受精前隔离
受精前隔离指隔离机制发生
在生物交配受精以前’包括时
间`空间`生物的形态和行为等
方面的原因所造成的隔离。
(
|)地理隔离
因所处地理环境不同而造成
的隔离称为地理隔离’由外因引
起°对于陆生生物来说’往往指
山脉`沙漠、海洋`湖泊`河流
等造成的阻隔;对于水生生物而
言’—般指陆地造成的障碍°
(2)生态隔离
生存在同—地域内的不同生
境所发生的隔离称为生态隔离°
(3)季节隔离
季节隔离又称时间隔离’是
指由于动物的发情交配或植物的
开花传粉时期发生在不同的季节
所引起的隔离。
(4)性别隔离
在不同物种的雌雄性别间,
相互吸引力微弱或缺乏而造成的
隔离称为性别隔离。
}
广
巳
|
地理隔离
物种在不同地方出现
更
宾
碗
醒
桓
肥
朋
生态隔离
物种利用生境中不同资源
|
{
亡
行为隔离
物种有不同的交配仪式
厂ˉ
〗
|
天中的不同时候
时间隔离
交配或开花在不同季节或-
|
~
~
一-~
≤塑—Ⅲ〉
广
〔
广
|
机械隔离
结构上的差异阻止了交配或传粉
|
|
阻‖卜配子融台
配子不能互相吸引或无法正常发挥功能
|
厂
厂_
厂_——
|
嘉
=
惋
堕
山
鲤
朗
杂种胚胎无法正常发育
|
|
杂种成体在自然条件下无法成活
杂种成体不盲或生育能力下降
可育的杂交后代
生殖隔离机制
′77
G
●
●
●
●
●
●
^
铡
|‖□高中生物疑点通
(5)行为隔离
心理上具有不亲和性(如不产生性反射)或者交配行为不同’使两个或几个亲缘关
系相近的类群之间不能相互交配或交配不易成功造成的隔离称为行为隔离。
(6)形态隔离
形态隔离也称为机械隔离’是指动物的生殖器或植物的花器部分在形态上的差异而
出现的隔离。
2.受精后隔离
是指隔离机制发生在受精以后’包括杂交不亲和`杂种不活`杂种不育等。
(
|)配子或配子体隔离
配子或配子体隔离也称为生理隔离或杂交不亲和’是指虽能够发生传粉或交配’但
该物种的精子或花粉管不能被吸弓|到达卵细胞或胚珠内’或者精子在另_个物种的输卵
管中不易存活产生的隔离。
(2)杂种不活
杂种不活是指杂合子不能成活’或在适应性上比亲本的要差(指合子能成活’但胚
胎发育阶段死亡或个体发育不到性成熟’因此不能留下后代)的现象。杂种不活的原因
很多’基因型的不协调`生长调节的失败是主要原因°
(3)杂种不育或染色体不能正常配对
杂种不育或染色体不能正常配对是指杂种个体不能产生具有正常染色体组的有功能
的性细胞’不能形成合子’因此不能产生后代。
不同物种的个体’—般不能杂交’就是杂交了’也是不育的。杂种不育的原因与亲
本基因型间的不协调有关’表现在性腺发育阶段或减数分裂期间’或在以后配子体或配
子发育时。
|=文献`…″
|
[||畅秀艳伞洪臣生嫡隔离搬谈
●
‖].生物学教学’2()15’4()(5):80.
●
:
[2]拉弗’约翰逊.生物学|M].谢莉
萍张荣庆张贵友’译.6版北京:
●
洁华大学出版社’2()(}8ˉ
●
(4)杂种体败坏
杂种体败坏也叫作杂种衰败、杂种破
落’是指子二代或回交后代中的全部或部分
不能存活或适应能力低劣。例如’树棉与草
棉属于两个种’其子_代(Fl )是健壮而且可
育的’但到子二代(F2)均不能存活下来。
●●
●
●●●●
●
=二■●■●●●●◆●●●●●●●●■●■●●●●●●●●■●●●●
●
$●●●●●■●●
′7『
■
◎Ⅲ浆与Ⅲ清有什么区别?
/18o
◎Ⅲ浆蛋白与血红蛋白有什么区别?
/181
◎渗透压与组织水肿有何关系?
/183
◎兴奋在神经纤维上是如何传导的?
/186
◎什么是钠钾泵?
/187
◎什么是离子通道?
/188
◎静息电位是如何产生及维持的?
/189
◎动作电位是如何产生及恢复的?
/192
◎活体内神经纤维上兴奋的传导是双向还是单
向?
/194
◎突触有哪些类型?
/195
◎兴奋性突触和抑制性突触是怎么回事?
/196
◎突触小泡和神经递质的来源分别是哪里?∧98
◎神经递质的化学本质是什么?都是小分子吗?
/199
◎_个神经元内只有_种递质吗?
/2O1
◎_种神经递质_定是兴奋性或一定是抑制性的
吗?
/2O2
◎为什么神经递质大多是小分子却要通过胞吐运
输?
/2O3
◎神经元是如何识别神经递质的?
/2o4
◎兴奋性突触一定能使突触后神经元兴奋吗?
/2O5
◎神经递质释放后的归宿是什么?
/2o7
◎受体在兴奋传递中的作用是什么?
/2o8
◎神经递质的受体数量是稳定不变的吗?
/2o9
◎NO是怎样的一种神经递质?
/21o
◎乙酚胆碱在到达后膜之前是怎样避免被水解
的?
/2】2
◎钙离子浓度与肌肉收缩有何关系?
/213
◎可卡因等毒品上痛的机理是什么?
/215
◎激素分泌的调节方式有哪些?
/216
◎胰岛素的分泌到底受什么调控?
/219
◎如何理解胰岛素和胰高Ⅲ糖素的作用及两者的
关系?
/221
◎肌糖原为什么不能分解补充Ⅲ糖?
/222
◎肾上腺素的分泌是分级调节吗?
/224
◎肾上腺素与肾上腺激索一样吗?/226
◎受体在激素调节中的作用是什么?
/227
◎激素的受体都在细胞质膜上吗?
/2z8
◎靶细胞是如何识别激素的?
/23I
◎人体激素作用于其他组织细胞一定要通过Ⅲ液
运输吗?
/232
第
三
篇
〃
′
土
≠
′
《
′
↓
幼
「
◎动物激素发挥作用后的归宿是什么?
/234
◎人体的体温是如何变化和维持的?
/236
◎立毛肌收缩是为了增加产热还是减少散热?
/237
◎人在寒冷环境中体温是如何调节的?
/238
◎体温恒定时产热与散热有何关系?
/∑39
◎发热对人体有何益处和害处?
/241
◎炎热环境下体温维持稳态有无激素调节?
/242
◎溶菌酶是怎样_种酶?
/244
◎淋巴细胞是如何识别抗原的?
/246
◎B细胞激活都需要T细胞协助吗?
/247
◎体液免疫中的多数抗原和少数抗原的含义是什
么?
/248
◎释放淋巴因子的是T细胞还是效应T细胞?
/249
◎体液免疫中T细胞能否呈递抗原给B细胞?亿田
◎为什么抗体种类比基因的种类还多?
/253
◎移植器官被排斥属于什么免疫?
/254
◎生长素专指叼|垛乙酸吗?
/255
◎生长素促进植株生长的作用机理是什么?
/256
◎高浓度生长索抑制生长到底怎么理解?
/258
◎植物激素的运输都是极性运输吗?
/26o
◎种子萌发过程中激素含量如何变化?
/262
、酗
℃
、
\
|‖□高中生物疑点通
司
■■■■■■■■■■==■■■■=■≡■■■
■■=■■■■=■■
■■■■■■←=■■■■=■■=■■■0
■■■■
0■■=■■■■■■■■■■■■=■■=■■
么区别?
n浆与Ⅶ清有
■■=■■■■…=≈■=■■==■■■■■==~■■=■■■=■■■■■■=…0■■■===■■■■■■==■■■■■=…■■
不加抗凝素
加抗凝素
一—~
一—~
~
→=
~一一
一~ ˉ~
≈≈~■→q曲d凸…p■■b←■
■■睁■…==■尸…
ˉ乙……………`~
、~、■…≈…≡
=刑P…
皿浆
血清
白细胞和血小板
≡
—~
止』
红细胞
血凝块
血浆与血清的比较
血浆是Ⅲ液中加人抗凝剂(如柠檬酸钠)’离心或静置分层后’位于上层的淡黄色
半透明液体。Ⅲ浆的主要成分是水和溶解于水中的小分子物质(如营养物质、代谢产物
和激素等)`蛋白质(白蛋白`球蛋白、纤维蛋白原)、O2和CO2等。
血清是Ⅲ液中不加抗凝剂’静置凝固后’Ⅲ凝块周围析出的淡黄色透明液体。Ⅲ清
与Ⅲ浆在外观上相似’大部分
成分也相同’但血清经历了」Ⅲ
液凝固过程’血浆中的许多凝
Ⅲ因子(特别是纤维蛋白原)
在凝Ⅲ过程中被消耗了’而Ⅲ
小板活化后可释放出许多Ⅲ[浆
中没有的活性物质。
〗
』
●●●■●●●●●●●●●●■●●●●●●●●●●●
●●
)主要参考文献
●
[1]董明宏有关血液知识的—些疑问的解答[J].生物
学教学’2013’2:6()—ˉ62.
[2]孙庆伟’周光纪,白洁’等人体生理学[M].3版.北京:
中国医药科技出版社’2()11:54—55,70.
[3|胡集荣.人体解剖生理学:上册[M]长春:东北师范
大学出版社,199():237—243.
●
●
●
●
●
●
●
●
GGGG
GGGGGGIGGGGGGGGGGGGGGGGGGGGGGGGGGGGGGGGGG
●●●●●●●●●●●●0
′J0
\』』测蹬′W毯′″M《燃′M〃栅:廷硼
\
硼v`邀′腋
第三篇稳态与调节
■
F
■■=■■===■■■■■■=■■■■■■■■
lⅢ浆蛋臼与Ⅶ红蛋臼有什么区别?
~
因子)
水92%
血浆
55%
营养物质`
激素`气体
羔刀
4。8%血小板
0。|%臼细胞
细胞和细
胞碎片
45%
5‖儿∏‖
血小板
血浆
红细胞
臼细胞
血液的成分
血浆蛋白种类比较多’按其理化性质和生理作用的不
同’—般分为白蛋白、球蛋白和纤维蛋白原三大类。白蛋白在
Ⅲ浆蛋白质中分子量最小’含量最多’溶解度高’具有容易与
各种物质相结合的化学特性。球蛋白主要在机体的防御机能方
面起作用’也有_定的运输作用。纤维蛋白原分子量最大’是
Ⅲ液凝固的必需因子。
′J′
◆
『
姑翅
、…
|‖口高中生物疑点通
}
~
。.∏幻蛋白
400×
b。红细胞
a毛细血管
4
|75×
血红蛋白
血红蛋白是—种由_分子的珠蛋白和四个含二价铁
(Fe2+)的Ⅲ红素分子结合而成的复合蛋白质’其中珠蛋白约
占96%’Ⅲ红素占4%。」Ⅲ液中Ⅲ红蛋白的含量随性别`年龄
的不同而有所差异’这主要取决于红细胞的数量’红细胞数量
多’Ⅲ红蛋白含量就高’反之则低。
主要参考文献‖……….……
■●●●●●●●●●●●●
~
|
答[J].生物
[l]董明宏有关血液知识的_些疑问的解
学教学’20l3’2:60—62.
●
[2]孙庆伟’周光纪’白洁’等人体生理学|M‖3版北京
中闰医药科技出版社’201]:54—55’7().
[3]胡集荣.人体解剖生理学上册[M]长春
大学出版社’1990:237—243.
东北师范
●●●●●●●●●●●●●●●●●●■●●●●●●●●●●●●●●●●●●●Q●●●●●
′82
′硼‖/瓜舵趣/脚≈
|
第三篇稳态与调节
训
铡′`
织水肿有侧关系?
组织液过多而引起的全身或身体的_部分肿胀的
症状称为水肿’又称浮肿。组织水肿与血浆、组织液
的渗透压之间有着密切的关系。组织水肿的原因可概
括为以下几种。
凹
枷
·
常
正
邪
■
叼
■
可
△
■
…
~
、
=
旬
]
掣
≤
心
∏
∩
广
{
|
ˉ宅
↑.血浆蛋白减少弓|起血浆渗透压下降
当Ⅲ浆蛋白减少’血浆胶体渗透压降低Ⅲ浆中
水分较多进人组织液’使组织液增加;另—方面’由
于Ⅲ浆的吸水能力下降’组织液中的水不能及时被Ⅲ
浆重吸收运走’从而引起组织水肿。
(
|)营养不良
营养不良时,摄人的蛋白质较少’人体缺少必需
氨基酸’使体内的蛋白质合成减少’引起Ⅲ浆蛋白减
少°例如’ 2004年安徽某地区因劣质奶粉引起的‘‘大
头娃娃”事件’就是由于劣质奶粉中蛋白质含量过
低’致使生长期的婴儿缺少蛋白质而引起水肿’形成
‘`大头娃娃’’
(实为面部水肿)
。
(2)肾小球肾炎
肾小球肾炎时’毛细Ⅲ管壁的通透性增大’引起
Ⅲ浆中的大分子蛋白质经肾小球滤过作用进人原尿’
在经过肾小管时’大分子蛋白质不能被肾小管重吸
收’使大量血浆蛋白随终尿排出(称蛋白尿)以致血
浆蛋白减少’进而导致水肿。
司
组织水肿表现
/g3
|‖□高中生物疑点通
(3)肝功能受损
大约40%的Ⅲ浆蛋白来自肝细胞的合成’若肝细胞受损或肝功
能出现障碍’则会使Ⅲ浆蛋白的合成减少’引起Ⅲ浆胶体渗透压下
降’组织液增多’从而引起水肿。例如’肝硬化患者会出现“腹
水’’现象。
2组织液渗透压升高弓|起组织液增加
(
|)局部组织细胞代谢旺盛
局部组织细胞代谢旺盛时,导致代谢产物暂时性增加’引起组
织液渗透压升高’使水分不易被重吸收进人Ⅲ浆运出’而引起水
肿°例如’平时运动较少的人’爬山后常会小腿水肿。因为爬山时
小腿的肌肉群运动量大’短时间产生的代谢废物增多’引起局部组
织液渗透压升高°
(2)过敏性水肿
过敏反应时,组织细胞会释放组胺’使毛细Ⅲ管壁通透性增
大’Ⅲ浆中的部分大分子蛋白质渗出毛细Ⅲ管进人组织液,组织液
中蛋白质的浓度增加’从而使组织液渗透压升高而吸水’出现丘疹
性水肿(即局部水肿)
。
(3)机械碰撞性水肿
意外碰撞或磕到硬物’使皮肤毛细Ⅲ管壁破裂或通透性增大’
引起Ⅲ浆中的大分子蛋白质等渗人组织液’从而使组织液渗透压增
大’出现红肿现象°碰撞后揉搓则会导致毛细Ⅲ管壁通透性进—步
增大’热敷则会促进血液循环’促使Ⅲ浆渗出更多。揉搓和热敷的
做法都会导致水肿更加严重。因此’碰撞后应当立即冷敷’使毛细
Ⅲ管收缩’减少水肿和疼痛。
|
′〃
$
●
●
●
●
●
I
`删狮√二总逃八溺″》膨"`慰磁′v『√≤彦邀^′`您′顺\:
第三篇稳态与调节
《
.颂『`
3.淋巴筐阻塞弓|起淋巴性水肿
毛细淋巴管的管腔大而不规则’管壁薄’仅由内皮和极薄的结
缔组织构成’而且毛细淋巴管壁内皮细胞间有较大的间隙,无基
膜’故通透性大’大分子物质易进人°因此’淋巴的回流可以回收
血浆丧失的蛋白质’调节Ⅲl浆和组织液之间的液体平衡。当淋巴管
阻塞时’淋巴的回流会受阻’造成组织液增加而引起水肿’也称为
淋巴水肿。例如’恶性肿瘤细胞侵人并堵塞淋巴管;患丝虫病时’
主要淋巴管被丝虫成虫阻塞’引起下肢和阴襄的慢性水肿等°
4肾小筐重服收增强弓|起水分滞留
造成肾小管重吸收增强的原因是多方面的。例如’醛固酮和
抗利尿激素增多°醛固酮由肾上腺皮质分泌’它能促进肾小管和
集合管对钠的重吸收。因此’当醛固酮增多时’就能引起钠离子
滞留在Ⅲ浆中。钠离子滞留使Ⅲ液中晶体渗透压增高Ⅲ浆渗透
压升高刺激下丘脑,促进垂体后叶释放抗利尿激素’抗利尿激素
则促进肾小管和集合管对水分的重吸收’于是过多的水滞留于体
内’形成水肿。
●●●●●●●●●●
|主要参考文献∏….…………….………………………
■
[1]陈淑丽浅析内环境渗透压与组织水肿的关系|J]生物学教学2(}]5(11〉:67
[2]席德强.高中生物学教学中的几个知识点[J]生物学教学’20l0(7):69—7().
[3]唐文芝内环境渗透压的改变与组织水肿[J]生物技术世界2〔)15’11:216.
[4]李卫阁组织水肿及其发生机理[J]学苑教育2()09,12:61
[5|张玉明浅谈组织水肿[J‖中学生物教学’2()10’Z1:45—46
[6]何翠玲“组织水肿’,相关知识[J|新课程(教研)’2()l()’6:28.
[7]杨多恒人体组织水肿产生的原因及高考考查|J]中学生数理化:高中版
版’2()11,5:53.
—68
学研
●
●●●●
●G●●●●●●●●●●●●●●●■●●●●●●●●●●●■●●●●●●●●●●●●●●●■●●●●●●●●●●●●■●●●●●●●●●●●●●●●●●●●●●●●■●●
′8歹
●
●
●●
§毯
、
|‖■高中生物疑点逾
=■■■■■■==■■■■■■■■■=■■■■■■■■~~~~~
■■==≡==■■之■■■■=■■■■=…■■■■
■■■■■■■=■■==■■■■■■
■■
~~~~~~~~~~
是′‖侧传导的?
枉神经纤维止
兴
■■=■■=■→d■■…■■==■■■■■■■~→■=■=
■■■■
■■■■=…==■■■=■=
■■■■■■■■■■■■
■■■■=■■■■■■■■=→~■■≈=■~空===■■■
神经纤维可分为两种类型:有髓神经纤维和无髓神经纤维。
有髓神经纤维外有多层髓鞘包绕’髓鞘的分布不是连续的’而呈有规律的节段’两
节段间狭窄部位为郎飞结。无髓神经纤维表面只有_层均匀而极薄的髓。
受到刺激后’神经纤
维上的兴奋部位与邻近未
兴奋部位存在电位差’形
成局部电流’引起邻近
部位膜的兴奋。在无髓神
经纤维上’神经冲动沿轴
突连续均匀地传导’这是
人教版高中生物必修3教
材上展示的类型。而在有
髓神经纤维上’电流不能
通过高度绝缘的髓鞘节间
区’只能从_个郎飞结跳
到另—个郎飞结’呈跳跃
性传导。跳跃性传导使兴
奋的传导速度大大加快’
同时’由于兴奋只发生在
郎飞结处’发生动作电位
的地方减少’Na带内流也
减少’这对人和其他脊椎
动物节约能量、快速适应
多变的环境具有更为重要
的意义。
=二_辊″
—=
=-
\
叼当
`
■
』
℃
′
·
飞
、
`
歹
日
′
【
`
兴奋在有髓神经纤维上的传导
~
动作电位在神经纤维上的传导
主要参考文献〗…………
Q●●●●●●●●●●●●●●●●
‖中学生物教
[l]黄文彦.神经调节的若干问题探讨[J
学’2015(l3):34—35
●
●
[2]翟中和王喜中’丁明孝.细胞生物学[M]|b京高等
教盲出版社,2008:1l3—117.
[3]左明雪人体解剖生理学[M]
社,2()()3:51—63.
◆
北京:高等教育出版
●
●
■■●●●●●■●●●●●●●●
●●●●●●●●●●●■■■●●●●●■●●●
●●●●●●●●●●●●●●
′『6
●
●
●
●
●
●
●
●
●
●
■
■
●
$
勺q
■
==≡=≈■■■■■
O
●
■■=■■
0■B■■■■■
』
弟茬"剧β霓
钠钾泵(也称钠钾转运体)化学本质是蛋白质’能进行钠离子和钾离子间的交换。
每消耗—个ATP分子’逆化学梯度泵出3个Na+和泵人2个K十。Na+从细胞质膜内运输
到细胞质膜外’使细胞外部呈高Na+的状态;K+从细胞质膜外运输到细胞质膜内’使得细
胞内部保持高K+的状态。
所以’这种情形下的跨膜运输方式是主动运输。
胞外
lh陋附
(
嚷
‖.细胞质膜上的载体蛋白与细胞内的钠离子
结合
鞭
~
~
6.载体蛋曰的去磷酸化触发构象改变,变
回对钾离子具有低亲和力的构象,钾离子
因而扩散入细胞°该循环反复进行
2ˉ结合了钠离子的载体蛋臼被∧『p磷酸化
)
.碱K+
■Na+
(
■
〗
=
凹\@
空=
3.磷酸化过程改变了载体蛋白的构象,降低
了其与钠离子的亲和力,钠离子因而扩散
出细胞
5钾离子的结合导致载体蛋曰的去磷酸化
4改变后的构象对钾离子有更高的亲和力,
细胞外的钾离子结合至|」暴露出来的位点上
钠钾泵工作原理示意图
主要参考文献}。…
●●●●●●●●●●●●●●●●●●●●●●●●●
[l]梁文硕钠、钾离子通道和
学教学’2014(6):79ˉ
[2]范捷浅谈静息状态和复极
物学教学’20]2(1()):68_69.
钠钾泵的辨析[J].生物
化时期的K+通道[J]生
●
●
GGGGG
GGGGIGG
G
I
●G●●●●●●●●■■●●●●●●●●●●●●■●●■■●■●■■≡■
′J7
。
●
●
●
●
●
●
●
●
●
|‖□高中生物疑点通
■
F
=
=
纂
≡
■
■
I
‖
■■■■=■
离子通道是由细胞质膜上的跨膜蛋白质组成的’是—类有孔道的两亲性膜整合蛋
白’它不同于载体蛋白’具有优先让某种离子顺浓度梯度通过’而另_些离子则不容易
通过该种通道的特性。例如’钠通道开放时’Na可通过’而K+则不能通过。根据通道选
择离子的不同’离子通道分为Ca2+通道`K+通道、Na十通道、Cl—通道等’其中’K+通道是
种类最多`家族最为多样化的离子通道。
离子通道的活性由通道开
或关两种构象所调控’即是门
控的。多数情况时’离子通道
是关闭的’只在_定的条件下
开放。通道由关闭状态转为
开放状态的过程称为激活’
在特定刺激下打开’类似于
』‘门’’
’可关可闭’这类通道
又称为门通道。根据门控的机
制可分为电压门控通道、配体
门控通道和机械门控通道。
通过离子通道运输Na+`
K+时’Na+从细胞质膜外运输
到细胞内’K+从细胞质膜内
运输到细胞外’Na+和K+都是
顺浓度梯度运输’不需要消耗
ATP’但是需要借助离子通道
蛋白’所以这种情况下的跨膜
运输方式是协助扩散。
通道关闭
∧
0
O
离子通道开闭示意图
|主要参考文献‖……………·….
|1|梁文硕钠、钾通道和钠钾泵的辨析[J]
生物学教学’20l4(6):79.
|2|范捷浅谈静息状态和复极化时期的K+
通道[J].生物学教学’2〔)l2(10):68—69.
q0
■
●●
●●●●●●●●●●■●●●●●●■●●●●=●●q●●●●●●●■●●●●■●●
●●$●●
′JJ
酗′沁广〔斟∧趴翅沁\
第三篇稳态与调节
′
将正电荷和负电荷分别置于汽车或闪光灯电池的两极,这样两极之间就产生了
—个电势差(potentialdlfference)’或者称作电压°电池的—极带正电,而另—极
带负电°类似地’每—个细胞的质膜的两侧也都存在_个电势差。其中’朝向细胞
质的—侧带负电’朝向细胞外液的一侧带正电。这—电势差就叫作膜电位。
相对细胞的外侧而言,细胞的内侧带负电。这是由以下三个原因造成的:@细
胞内部带负电的大分子(如蛋白质和核酸)的含量更加丰富’而且这些分子无法扩
散到细胞外部。这些分子被称作固定阴离子(hxedanion)。@细胞质膜上的钠钾泵
每次从细胞内泵出三个钠离子,却只泵人两个钾离子。这不仅导致了跨膜电位的存
在’而且还在细胞质膜两侧建立起了_个钠离子梯度和_个钾离子梯度。o离子通
道对钠离子和钾离子的通透性不同。与能够扩散进人细胞的钠离子数相比’能够扩
散出细胞的钾离子数更多。钠离子通道和钾离子通道都有“门”
(gate),形成通道
蛋白的_部分’能够关闭或打开离子通道的中心。在神经元的轴突和肌纤维中’这
些“门”的打开和关闭是由跨膜电位控制的。因此’这些离子通道被称作电压门控
离子通道(voltage-gatedlonchannel)
°
细胞质和细胞外液(巨C「)的离子组成
细胞质中的浓度
(mM)
平衡电势
(mV)
ECF中的浓度
(mM)
比值
离子
钠离子
+60
l5
l50
l0:
l
钾离子
-9〔)
·
勺
〕
]
l5()
5
氯离子
)
(
勺
′
l5 :
l
刁
′
ll0
′J9
●
●
=
铡′‰′Ⅵ
|‖□高中生物疑点通
在大多数细胞中’细胞质膜对于离子的可通透性是恒定的’细胞内的负电性保持不
变。然而’神经元和肌纤维的细胞质膜却是可兴奋的。因为它们的离子通道的通透性可
因多种刺激而改变。当—个神经元没有受到刺激的时候’它保持着静息膜电位(aresting
membranepotential)。细胞是非常小的’因此它的跨膜电位也是非常小的°_块汽车电
池的电压通常是]2V’然而—个细胞的静息膜电位却大约只有—7()mV(—007V)。负号
表示与细胞质膜的外侧相比’细胞质膜的内侧带负电。
我们知道,细胞膜两侧电荷分布的不平衡造成了_个—7()mV的静息膜电位。但为
∩V的静息膜电位。但为
什么静息膜电位是-70
mV而不是ˉ50mV或-l0
1nV呢?为了弄清这个
问题’我们必须知道’
那些与静息膜电位的建
立有关的离子受到的两
种力作用:o离子会受
到与之电性相反的离子
或分子的吸引;@离子
会受浓度梯度的影响’
并将从高浓度区域流向
低浓度区域。
细胞外带正电
的离子’
即阳离子
(catjon)’会被细胞
静息电位的产生及测量@
内带负电的固定阴离子所吸引°同时’处于静息状态的细胞质膜对钾离子的通透性强于
对任何其他离子的通透性。因此’钾离子将进人细胞内。虽然其他阳离子也会进人细
胞’但是’钾离子的渗透对静息膜电位起着最主要的作用。电势差驱使钾离子进人细
胞’
由钠钾泵所建立的钾离子梯度却将驱使钾离子离开细胞。在—个特定的位置上’这
两种力彼此平衡’使得钾离子的流出虽与钾离子的流人量相平衡的电压’叫作平衡电位
(equilibriumpotential)。对于钾离子来说’平衡电位为ˉ90mV。当跨膜电位为ˉ80mV
时’钾离子将扩散到细胞外;而当跨膜电位为—l00mV时’钾离子将扩散进人细胞。
′90
(鹏肪`1/W蕊′})栅‖岭卿、
、
第三篇稳态与调节
℃`
已
伏特表
微电极
Ⅸ+离子通道
‖a+离子通道
‖a+-|《+泵
|
细胞间液—
更高浓度的
‖a+和0|
~
质膜
~
细胞质
更高浓度的
Ⅸ+、
p‖和蛋白质
撬
囊
静息电位的产生及测量@
如果这_过程仅涉及钾离子’静息膜电位就应该是ˉ90mV。然而’细胞质膜对于钠
离子也有_定的通透性°而钠离子的平衡电位却是+60mV。由于钠离子渗透进人细胞’
细胞的静息膜电位将有所增大。静息膜电位大于-90mV时’钾离子将扩散离开细胞’这
就使得处于静息状态下的细胞’其细胞质膜的平衡电位减少到—70mV。利用—个电压计
和_对电极’并将—个电极插人细胞质膜内’另—个接在细胞膜表面’就可以测呈出细
胞的静息膜电位。
当—个神经细胞或_个肌细胞被刺激时’钠离子通道的通透性增强°这时’钠离子就
会沿着它的浓度梯度大虽地涌人细胞内.这种正电荷的迅猛流动降低了细胞质膜内侧的负
电性’并使细胞去极化(depolarlzatlon)
(朝着与静息电位相反的方向变化)。在很短的_
段时间之后’钾离子通道的通透能力也增强’这样钾离子就沿着它的浓度梯度流出细胞。
类似地’细胞质膜对氯离子的通透能力也会增强,使
Z
凸主要参考文献……….;
氯离子流人细胞·但是,氯离子对细胞的跨膜电位
|拉弗约翰逊生物学[M|谢莉
{
的影响程度远低于钾离子·这样’细胞质膜的内侧
/主要…·
』
|
]
萍,张荣庆,张贵友’译6版北
i
又显负电性’并使细胞超极化(hypcIpolarization)
~
~
京情华大学出版社’2008
;
即细胞的跨膜电位低于静息电位。
●
●
●
●●
●■●●
●●●●●●●●●●●●●●●●●●●●●●●◆●●●●■
●
′9′
●●●●●●
■●●●●●■
●
●●
●●●●
●
●■●
|‖□高中生物疑点通
!啡Ⅷ
@
40川γ
~
~
~
~
~
~
~
~
~
~
…
γ
们
∩
◎
气
凸
∧
γ
阳
·
∩
么
|0∏γ
Ⅸ+
Ⅸ十
0∏γ
{习
ˉ‖0
『∏γ
←
霞ˉ20 |,γ
γ
巾
∩
◎
气
己
乙0∏γ
γ
Ⅶ
○
尸
勺
~~~~
~
~
~
~
低+
~
~
~
~
钠离子通道
七0
『∏γ
@
小~
则
钾离子通道
70
『∏γ
静息龟位
乏
0
息状态
栅`(酣争
@
60『∩γ
●
动作电位的产生及恢复过程
o膜静息电位时’一
些钾离子通道是开放
的。@一个刺激引起
细胞开始去极化’
当
达到闽值时,动作电
位产生°o钠离子通
道打开’钠离子扩散
进入轴突’快速去
极化发生(峰的上
升部分)°@到达峰
的顶点’钠离子通道
关闭’原来关闭的
钾离子通道开放°
◎随着钾离子通道
的开放,钾离子扩
散离开轴突,复极化
发生。◎膜恢复到原
来的静息电位之前会
发生一个超极化。
动物细胞质膜对K+的通透性大于Na+是产生静息电位的主要原
因’ Clˉ甚至细胞中的蛋白质分子(—般净电荷为负值)对静息电
位的大小也有_定的影响。Na+ˉK+泵对维持静息电位的相对恒定
起重要的作用。
当细胞接受刺激信号(电信号或化学信号)超过_定|测值
时’电位门Na非通道将介导细胞产生动作电位。细胞接受|蓟值刺
激’Na+通道打开’引起Na十通透性大大增加,瞬间大量Na+流人细
胞内’致使静息电位减小乃至消失’此即去极化过程°当细胞内
Na+进—步增加达到Na十平衡电位’形成瞬间的内正外负的动作电
位’称反极化’动作电位随即达到最大值。只有达到—定的刺激
|蓟’动作电位才会出现’
这是—种全或无的正反馈|阂值’在Na+
大量进人细胞时,
通透性也逐渐增加’随着动作电位出现’Na+
通道从失活到关闭’电位门K+通道完全打开’K十流出细胞从而再
度极化’以至于超过原来的静息电位’此时称超极化。超极化时
′92
▲
=
GG
●◇
′`^硼v
解簇∑ˉ/
芦恕
ˉ
~乙
—[—【
`
丁匀吗~神经冲动的
儿
~
方向
Ⅲ静息电位
-70mγ
50
+35
=70
◎
∩
日
=
巨
伺
再
诞
50
∩
凹
丁
′
~
2
3
时间(∏]5)
0
‖
++十+++++++++
;2|去极化
∩
。
日
^
=
三
垣
巴
蜒
-50∏γ
+
十
=50
+35
ˉ70\`
~鸿
『
(
(
《
h
■
剑
|
闭值
~~~~~~~~~
廷≡=二二二二二≡=
=50
-70
+
0
2
3
时间(ms)
回复极化
~~~~
~~~~~
|
◎
∩
日
^
=
二
坦
巴
醚
洲
斌
侧
四
+35mγ
ˉ菏,/”
删值
50
70
~
~
~
+
0
‖
2
3
时间(∏]5)
囤恢复到静息电位
-70mγ
ˉ汀0
+35
\≈
◎
∩
日
=
巨
纽
凹
醚
-50
∩
■
丁
′
~
‖
2
3
时曰(而■`
[0
动作电位的产生及恢复
膜电位使K十通道关闭’膜电位又恢复至静息状态。
需要注意的是’动作电位的形成完全是由于离子的被动扩散。然而’在每个动作电
位结束时’细胞质内的钠离子含量比
……..……..
静息时略高’钾离子含量比静息时略
:
低。连续不停工作的钠ˉ钾泵将消除
……`~
|主要参考文献
●■●●●●●●
|
[1]拉弗’约翰逊.生物学[M]谢莉萍’张荣庆,张
:
:
这—改变。这样’虽然动作电位的形
贵友译6版.北京情华大学出版社’2008ˉ
°
●
[2]翟中和’王喜忠丁明孝.细胞
●
版北京高等教育出版社,2011
●
i
成不需要主动运输’但在离子梯度的
生物学[M].4
:
…………∏{
维持中.主动运输却不可缺少.
′93
●●●●●●●●●G●●●●●●●●●●
●●●●●●●●●●●
●
●
」{}
回
里厂\≡=一
‖
』
‖
■■■■】
ˉ旦厂′ˉ
|
、
|‖□高中生物疑点通
=■■=■=========≡===■====■P============■■■■…■■=■■■■■■====■■=~■■=…■■==■■=■宇=■==■■=…■■■==
内神经纤维止兴奋的传导是双阿还是单向?
』
l
U
~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~~
当刺激神经纤维上任何_点’只要刺激强度足够大’所产生的神
经冲动可沿神经纤维向两侧方向同时传导’这就是神经纤维传导兴奋
的双向性’它是实验条件下人为刺激的结果。
庐
^
旧
匡
厂
树突
轴突
胞体
兴奋的传导方向
但在体时’轴突总是将神经冲动由胞体传向末梢’表现为兴奋传
导的单向性’这是由突触的极性决定的。
)主要参考文献‖……
●●●●●●●●●●●●●●
●
●
●
●
|1]陈国庆.关于兴奋传导的几
生物学教学’2()()9(1()):66—6
[2]姜振华有关神经递质的几
生物学教学’201()(3):69ˉ
66—6
点释疑[J]
●
●
7
个问题[J]
●
●●
●●●
●●●●●●●●●●●■■■●■■■■●●●●
■
●●●●●●●
′94
●
●
●
●
●
●
●
GG
G
I
●
●
●
●
●
●
≈′吕墨′VI獭减《′`≈
第三篇稳态与调节
′
根据信息传递媒介物性质的不同’突触
可分为化学性突触和电突触两类’前者的信
息传递媒介物是神经递质’而后者的信息传
递媒介物是局部电流。
根据突触前、后成分之间有无紧密的解
剖学关系’化学性突触又分为定向突触和非
定向突触两种类型’前者末梢释放的递质仅
作用于范围极为局限的突触后成分’后者末
梢释放的递质则可扩散至距离较远和范围较
广的突触后成分。
根据神经元互相接触的部位’高等哺
乳动物最主要的突触分为三类:轴突—树突
式、轴突ˉ胞体式和轴突-轴突式突触。此
外’还有树突ˉ树突式`树突ˉ胞体式`树
突ˉ轴突式`胞体ˉ树突式`胞体—胞体式、
胞体ˉ轴突式突触’以及两个化学性突触或
化学性突触与电突触组合而成的串联性突
触、交互性突触和混合性突触等。
根据突触的结合形式’分为包围式(_
个轴突末梢的许多分支密集地贴附在另—个
神经元的胞体上)和依傍式(—个神经元的
轴突末梢分支与另_个神经元的树突或胞体
的某_点相接触)突触。
根据突触对下—个神经元机能活动的影
响,分为兴奋性突触和抑制性突触°
细胞体
突触
—
酷
丽
突触前神经元
(a)
轴—树突触
●
●
轴—轴突触
(b)
突触的常见类型
主要参考文献0………°……。·9
●
[1]陈国庆.关于兴奋传导的几点释疑[J]
生物学教学,2009(1()):66—67.
[2]黄文彦.神经调节的若干问题探讨[J]
中学生物教学’20l5(]3):34—35.
●
●
●
G
G
●
●
●●●●●●●●●●●■●●■●甲■■■■●●●●●●●●●●●●●●
●●●●●●●●●
/95
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
心
GG
`趟′`u′v、幽
|‖∏高中生物疑点通
■
∏
■■■■≡■■■=■■■=■】■=』■■=■■≈■■■■■■■≡■■■≡■■■=■■■■■■■■■■■■■■■■■■■■≈=■■■■■■■■■■=■■■■■■■■=■■■■■■■■■■■■■■■■■■■■■■■■■■■■=■■■■=
兴裔性突触利抑删性突触是怎么Ⅲ事?
■■■m■■■=■■■■■■■■■=■=·■■■■■■■■■■■■■=■■■■■■■■■■=■■■■→=·■■≡■■■■■■■■■■■■■■■■■■
■■■■
■■■■■■■■■■■■■
■■■=■■=■■=■■
~~
门关闭镶门开放
锣.◆”书
骗
色
■◆
}翻
/■
兴奋性突触后电位
—
卜
·
◎
了
台
巨
坦
田
醛
0=
|
时间(ⅢS)
肛
.·Uγ蛰=;一_-‖可
回
神经递质
~~~~~~~~~
~~~~~
~~
~~~~
门开放
~
~
抑制性突触后电位
0
^
>
巨
坦ˉ70
田
樊
0
|
↑
时间(∏S)
山
神经递质
兴奋性递质与抑制性递质作用机理
由于递质及其对突触后膜的通透性影‖问不同’突触后电位
分为两种’相应的突触分为兴奋性突触和抑制性突触。
(
|)兴奋性突触
当神经冲动传到轴突末梢’使突触前膜兴奋并释放兴奋性
化学递质’经突触间隙到达突触后膜受体,并与之相结合’使
后膜某些离子通道开放’提高膜对Na个、K+`Cl—特别是对Na+
′96
●
■
●
G
‖
、驰矾憋』腐…侧\侧峰′〗
′`
第三篇稳态与调节
脚
的通透性’使膜电位降低’局部去极化’即产生兴奋性突
触后电位。突触后电位是局部兴奋’可发生空间和时间的
总和’当兴奋性突触后电位通过总和加大到_定程度时’
就导致突触后神经元的轴突始段首先引发动作电位’产生
扩布性兴奋’沿轴突传导’并传到整个突触后神经元。相
应的突触即为兴奋性突触。
(2)抑制性突触
同样是突触前神经元轴突末梢兴奋’但释放到突触间
隙中的是抑制性递质°此递质与突触后膜特异性受体结
合’使离子通道开放’提高对K+、Clˉ’尤其是Cl—的通透
性’使突触后膜的膜电位增大’出现突触后膜超极化’称
为抑制性突触后电位。此时突触后神经元不易去极化’不
易发生兴奋’表现为突触后神经元活动的抑制。相应的突
触即为抑制性突触。
著名的美洲箭毒和α—银环蛇毒之所以有巨大的杀伤
力,其作用机理就是与乙酷胆碱竞争突触后膜结合位点’
导致兴奋不能传递到突触后膜最终使效应器接受不到任
何信号’从而使肌肉衰竭导致生命危险。
|主=献醛…
|
[!|陈国庆关于兴畜传导的
几点释疑[J].生物学教
●
●
●
●
学’2009(10):66—67.
■
……..
●●●●●●●●●●■●■■■■■口叮7=
●●●
■●
′97
●
■
◇
■
●
●
●
●
●
|‖□高中生物疑点通
■
~
■
∏
■■=→==■■■
■■■
】■■■■≡■■■■■■■■■■■■■■■■■■三→=■■■■■■■■■■=■■三·■■
0■■==■■===■■=■■
■■
〗■b q■■=■■■■■■■■■■■==■■■■■■■
■■■==■■■■■■
触小泡$0神经递质的来源分别是"‖里?
=→■■=■■■■=■■■■■■■■■■=■■■■■≈■乙■■=■■■■=■■■■==≡==■■≈■→■■■■■】■~==≡■■■■■■■■=■■
q■■====■■■==■■
■■■■■■■■■=
突触小泡是经
过多种途径’在神经
元的不同部位形成
的。例如’有些由突
触前膜直接陷人而
成’有些由高尔基
体、内质网、线粒
体、微管等产生。
递质的代谢包
括递质的合成`储
存、释放`降解`
■
■
■
Ⅱ
冈
呵
‖
【
】
」
粗
突触小泡的产生与回收
再摄取利再合成等步骤°乙酷胆碱和单胺类递质都是在有关酶的催化下’且多在细胞质
中合成的’然后被摄取到突触小泡内储存。
神经递质在神经元的胞浆内合成’最终形成部位是突触前末梢。合成神经递质的原
料_般来自Ⅲ液’在_系列酶(位于胞浆中)的催化下’逐步合成°
小分子递质的合成酶都是在神经元细胞体中被合成的’然后再通过轴浆运输被分送
到神经元的各个部分’特别是神经末梢’用于递质物质的合成。被合成的物质必须经浓
缩并填充到突触小泡中方可作为递质被释放。
儿茶酚胺类递质是借助H+浓度梯度所提
供的能虽’由转运体输送到突触小泡内的。
神经肤则首先在内质网内合成前体’
然后在高尔基体中经过加工修饰’再以分
泌颗粒形式由轴浆运输到突触前末梢。
∏
口
‖
献
文
考
参
要
主
GGGGGGGGGGGIGGGGG
~
|1|李尚斌关于神经递质的几个常见疑
惑解答[J]生物学教学,2016(3):79.
[2]姜振华ˉ有关神经递质的几个问题[J].
生物学教学’201()(3):69.
●
●
●
●
●
●
●
●
●
GGGGGGGGGGGGIGGGGGIGGGGGGGGGGIGGIGGGGG
GGGGGGGG
/9f
■●
●
●
●●
●
哑则v√M″M`
第三篇稳态与调节
.ˉ=ˉˉ=ˉ≡ˉˉˉ=ˉ=ˉˉˉ。…日
■■■■■■≈==■■
===■■■■■=■
|
F
经递质的化学本质是什么?都是小分子蚂?
■■==≡■■■■■■≈■■■■■■==■■■■■■■≈■■
■■■■===≈■■■■■■==≈■■=■■
■■■~===
类别
代表
胺类
组胺
5-轻色胺
多巴胺
(肾上腺素—-种激素)
去甲肾上腺素
Z酷胆碱
天冬氨酸
γ-氨基丁酸
谷氨酸
甘氨酸
胰高血糖素
胰岛素
生长抑素
尸物质
促肾上腺皮质激素
血管紧张素||
儿茶酚胺类
~
~
~
胆碱衍生物
氨基酸类
多肋类
内源性阿片样物质(脑啡肤和内啡肤)
促黄体素释放素
促甲状腺激素释放激素
血管升压素(抗利尿激素)
胆囊收缩素
内源性大麻素
No
cO
∧丁P
脂质
气体
膘玲类
常见神经递质的化学本质
′99
|‖口高中生物疑点通
目前发现的递质有100种以上,主要有:
(l)乙酚胆碱(ACh)’这是最早被鉴定的递质。
(2)单胺类’包括肾上腺素(E)`去甲肾上腺素(NE)
`
多巴胺(DA)
、5ˉ轻色胺(5-HT)、组胺。
(3)氨基酸递质’被确定为递质的有谷氨酸(Glu)
、γ-氨
基丁酸(GABA)`甘氨酸(Gly)`天冬氨酸(Asp)
。
(4)多肤类神经活性物质’是近年来在中枢神经系统内发
现的大分子递质’包括垂体肤、催产素`Ⅲ管升压素`心房钠尿
肤、Ⅲ管活性肠肤`Ⅲ管紧张素Ⅱ降钙素基因相关肤、神经肤
Y`下丘脑释放激素`脑肠肤、内阿片肤`速激肤及其他肤等几
大类°
(5)近年来研究指出_氧化氮也具有递质的很多特征。
目前已知的神经递质如乙酷胆碱、多巴胺、去甲肾上腺素、
肾上腺素、5—轻色胺、氨基酸类`—氧化氮等’确实都是小分子
物质。但是’有些神经肤虽然不是小分子物质’却满足了作为递
质的4个条件:o存在’在突触前神经元内有该物质及其合成酶
的存在;@释放’从突触前末梢可释放足以在突触后细胞或效应
器弓|起_定反应的物质;◎相同的突触后效应’将适当浓度的该
物质人工施加到突触后细胞能弓|起与由神经诱发的相同的反应;
@灭活机制’具有将该物质从突触间隙除去的机制。因此’神经
递质并不全都是小分子物质。
)主要参考文献‖………………………..
■
|
[1]李尚斌.关于神经递质的几个常见疑惑解答[J].生
物学教学’2016(3):79.
[2]姜振华.有关神经递质的几个问题[J]生物学教
学’201()(3):69.
‖
△
●
●
●
●
●
●●●●●●●●●●●●●■■■■■■宇■■■=■●■●●●●●●●●●●●●■●■●●●●●●
●●●●●●●●●●
200
■
\
′
`
崔
…
第
′
硼
√
″
\趣』
白
@停靠
o融合
神经递质的产生及回收
近年来发现’_个神经元内可共存两种或两种以
上的递质(包括调质)’其全部末梢均释放(两种或
两种以上)相同的递质’这种现象称为递质共存。
在无脊椎动物的神经元中’多巴胺和5ˉ轻色胺可
以共存°在高等动物的神经元中’去甲肾上腺素和乙
酷胆碱可以共存’ 5ˉ轻色胺和P物质可共存,去甲肾
上腺素和脑啡肤可共存;而支配猫唾液腺的副交感神
经内乙酷胆碱和Ⅲ管活性肠肤共存’交感神经内去甲
肾上腺素和神经肋Y共存°有人甚至认为肤类递质可
能都是与其他递质共存的。递质共存的意义在于协调
某些生理过程°
≡…`
[1]陈国庆.关于兴奋传导
几点释疑[J].生物学
学’2009(10):66—67.
●
[2]姜振华.有关神经递质
●
几个问题{J].生物学
●
●
学2()1()(3):69·
《奋传导
有关神经递质
●●●●
●●●●●
的
教
●
的
教
●
●
GGGIGGGGI
20′
|‖□高中生物疑点通
b
~~~~~~~~~~~~~~~~
性的妈?
=ˉ二≡ˉˉˉˉˉˉˉ一ˉˉ】
—般说来’乙酚胆碱、谷氨酸`门冬氨酸、去甲肾上腺素是
兴奋性递质’甘氨酸、γ-氨基丁酸是抑制性递质。但应指出’将
神经递质绝对地分为兴奋和抑制两类是不妥的。
—个神经元轴突末端有很多分支,可与多个神经元形成突
触。神经冲动从轴突传导到突触时’有的突触兴奋’有的突触抑
制。可见’同—种神经递质对某些神经元是兴奋性的’对另—些
神经元则可能是抑制性的’这可能与突触后膜上的受体有关°
轴突未端
-动作电|
h突触舅
位
囊泡
突触间隙
b
/肌纤维膜
线粒体
/
/
●
@
锣
罗
由←~
●
月胆田胞(纤维)
神经递质的作用
同_递质与不同受体结合可产生不同
效果’如乙酷胆碱能引起骨酪肌兴奋’但
对心肌则是抑制的。不同效果的产生显然
是由于心肌上的受体和骨酪肌上的受体性
质不同所致。
主要参考文献‖.….…
●●■■●●●●●●
神经递质的几个常见疑
[1]李尚斌关于神经递匠
惑解答|J]生物学教学
●
●
●
●
●
●
●
●
●
’2()16(3):79
[2]姜振华.有关神经递质的几个问题[J]
生物学教学,2010(3):69
●●●■●●●●●■●●Q■●●●●●■●●●■■=■
=■●●●●●●●●●●■●●●●
●
202
第三篇稳态与调节
子却要遮过胞ll运输?
大量实验研究发现’突触释放递质是不
连续的’是以_包_包的或称为_单元_单
元的形式释放的’这个过程叫作量子释放。
观察突触前末梢的电子显微镜结构’发现其
中含有大量的突触小泡。已有许多证据说明
这些突触小泡是递质量子释放的形态学基础。
英国生理学家卡茨等的研究表明’细胞
通过胞吐作用释放突触小泡中的递质。单个
小泡释放的递质无法引起终板电位(突触后
电位)’只有多个小泡_起释放才能引起正
常的终板电位°如果终板电位超过|蓟电位则
引发肌膜上的动作电位。可见’要弓|起神经
冲动’需要—定量的神经递质来进行刺激’
大于某—个值才可引起神经冲动。故用胞吐
的方式可短时间大量集中释放神经递质’
弓|
起突触后膜电位变化’从而高效完成信息的
跨突触传递°
线粒体
突触前神经元
突触小泡
突触后呻经元
突触间隙
‖}lm
透射电镜
(假染色)
神经递质的储存及运输
彰)主要参考文献}.
●
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
[l]李尚斌.关于神经递质的」[个常见疑惑解答[J].生
物学教学’2016(3):79
[2]姜振华有关神经递
学2()1()(3):69
有关神经递
●
●
●
●
●
●
●
●
白几个问题[J]生物学教
质〔
●■●●●●●●●●●●●●●●●●●●●●●●●■●●●
●●●●●●●●●●◆●●●●●●●●■●
■●●●●●●
203
、k′`》′v`′『
√
=
`^′`拟V》√限
炮^幽
阴
|‖口高中生物疑点通
==■→■==■==■===~==□=■=≈==▲=■=□======□□======■===■=】
元是如侧识别神经递质的?
==■■≡乙==■■■■=≡======■===■=■=≡=■======■=≈■===≡==乙乙】
大多数突触都是—个神
经元的轴突与另_个神经元
树突或胞体接触’人体神经
系统内大部分突触是依靠化
学物质—神经递质进行传
递的’称作化学突触°
化学突触包括突触前
部、突触后部和突触间隙三
个部分’突触前部有密集的
突触小泡和突触前膜。小
泡有清亮的’也有含颗粒
的’或者在同_突触前部内
同时含有两种小泡。小泡内
含高浓度的神经递质(如
乙酚胆碱和去甲肾上腺素
等)’当神经冲动沿轴突传
到突触前部时’此处小泡的
神经递质被释放到突触间隙
突触后神经元的细胞体
搏
k
—突触前神经元的轴突
离子通道
突触后神经元的细胞体
兴奋在神经元间的传递
(为30~50nm)’作用于突触后膜’使突触后膜上受体蛋白或离子通道构象发生改变’
引起电位变化从而产生神经冲动。这种化学传递方式决定了冲动的传导方向:上—个神
绎…吓—个…树…雌
/=文献.…
●●●●●●●●●●
梁愈.高中生物学知识中的“识
|1|
●
●
●
●
别,’机制集录[J].生物
2()l1 (12):63—64.
学教学’
●
●●●
●
●●●●●●●●●●●●●●●●●●■■●●■●●●
204
诽
(|∏|
▲
0■
0
『
▲
‖
‖
~
~
~
~
~
p』
册|而‖』|
|
神经元的胞体
轴突
具他神经元的轴突
抑制性突触
兴奋性突触
突触的整合
≡个突触后神经元常与多个突触前神经末梢构成突触’所以产生的
既有兴奋性突触后电位’也有抑制性突触后电位。
突触后神经元胞体就好比是个整合器,突触后膜上电位改变的总
由]
突触后电位既有兴奋性突触后电位’也有抑制性突触后电位。
因此’突触后神经元胞体就好比是个整合器,突触后膜上电位改变
趋势取决于同时产生的兴奋性突触后电位和抑制性突触后电位的代数和。
205
●G●
州
`
\:
\
|‖口高中生物疑点通
兴奋性神经元
抑制性神经元
经元`两个兴奋
起作用
是,产生-个
!故没有动作
和
位
形成动作电位
突触的整合及作用结果
当总趋势为超极化时’突触后神经元表现为抑
制;而当突触后膜去极化时’则神经元的兴奋性升
高’如去极化达|剩电位’即可爆发动作电位’突触
后神经元表现为兴奋。
●●●●●●●●●
主要参考文献
兴奋传导的几点释
[1|陈国庆.关于兴奋
疑|J|生物学教学
67,
,2()()9(1()):66—
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
■
■
●
●
●
●
●
●
■
●
■
●
●
●
●
●
●
●
●
凸
●
●
●
●
●
‖
●
206
●
毋
◆
凸
●
◇
●
●
●
稳态与调节
h
ˉ≥
■
~
~
~
~
~~~
F
递质与突触后膜的受体结合引起后膜的兴奋或抑制后’就完成了它的使命’它必须
失去活性’这样才能保证突触传递的灵敏性’否则后膜将_直处于兴奋或抑制状态’这
对机体都是非常危险的。
在机体中’递质失活主要通过两种方式:—种是被相应的酶降解’另—种是重新被
吸收回突触前膜加以利用。
比如乙酚胆碱发挥生理
作用后’就被胆碱酪酶水解
成胆碱和乙酸而失活;肤类
递质通过氨基肤酶`竣基肤
酶和—些内肤酶的降解而失
活;而去甲肾上腺素`多巴
胺`5-轻色胺以及氨基酸递
质进人突触间隙并发挥生理
作用后’_小部分会被酶分
解失活’大部分则是由突触
前膜摄取’回收到突触前膜
处的轴浆内重新被利用。
人们研制的有机磷杀虫
剂就利用了神经递质作用的
这—特性’
由于有机磷杀虫
剂对胆碱酷酶具有强烈的抑
制作用’造成胆碱酷酶失去
水解乙酷胆碱的能力’乙酷
胆碱在害虫体内就大量积
累’使害虫神经兴奋失常’
引起害虫肢体震颤`痉挛`
麻痹而死亡。
●
o●
0
(a)神经递质在突触间隙的酶促降解
(b)突触前神经元对神经递质的重吸收
神经递质灭活的两种机制
/主熏…`=
■●●●●●●●●●●●●●●●●●●●●●●●●●●
●
[1]李尚斌关于神经递质的
物学教学2016(3):79.
[2]姜振华有关神经递质的
2010(3):69~
几个常见疑惑解答[J].生
●
●
几个问题[J]生物学教学’
●
■●●●●
207
●●●●●●●●●●●●●●●●●●●●●●●●■●●●●●●●●●●■●●●
●
●
|0■高中生物疑点通
细胞外液
●
占
…
念
二
皿
(
△
□
结
…
G
离子通道
‖a+
\
\
」
d
∩∩〖≈
_\
乙
且
~
~
寸
F赵
}
▲
斧
细胞质膜
贝
≥瓣型乙醚胆碱Ac"
吁
■君
"ˉ
『.·
L」.川·
.赠·
l
受体在兴奋传递中的作用示意图
递中’突触前膜释放的递质与突触后膜上的受体结合,这种受体就
蛋白’如N型乙酚胆碱受体°当递质与受体结合后’会影响突触后
有的引起后膜去极化,有的引起后膜超极化。
在神经冲动的传递中’突触前膜引
是_种质膜上的通道蛋白’如N型乙囤
膜对离子的通透性’有的引起后膜去‖
而有的受体存在于突触前膜’其
作用是调节神经末梢的递质释放°例
如’肾上腺素能纤维末梢的突触前
膜上存在α受体’当末梢释放的去甲
肾上腺素在突触前膜超过_定量时’
就能与突触前膜的α受体结合’从而
反馈抑制末梢合成和释放去甲肾上腺
素。突触前膜和突触后膜的α受体也
不同°
]
|
GGGGGGGGGGGIGGGGGGGGG
|主要参考文献
●
●
●
[1]朱小燕与受体有关的常见问题答疑[J].生
物学教学,2014’11:79—80.
[2]吴庆余基础生命科学[M].2版.北京:高等
教育出版社’2006`
[3]吴相钮’陈守良’葛明德陈阅增普通生物
学[M].3版.北京高等教育出版社’2009.
[4]刘明泉.与神经递质有关的常见问题答疑
[〗生物学教学’2()14’39(3):75~
~
●
●
●
●
■
●
●
●
●
●
●
G
GG
GGGGGGIGGGGGGGG GGIGGG
GG GGGGGGGG
IGGGGGGGGGGGGGG
20『
、
严
~
/
池
…
…
…
键
…
■===□~■□■==========■≡===■■===■=二■===■===■■======■=■=≡≡==■=~■=========】
神经递质的震体数量是稳定不蛮的码?
===■=…==■■=■==■=====≡=■==■==二=■=========■■■===■==←■■====■□===■■■≡=■■■】
‖
|
子
~
~
空
2■
丙
2
7
▲
匡
『
|
突触
受体蛋白
(a)
毒品分子
(b)
(c)
毒品上瘸的机理
(d)
(a)在正常的突触中’神经递质发挥作用后
与转运分子结合,被迅速地重吸收°
(b)当毒品分子与转运分子结合后’重吸收
被阻断,
留在突触中的神经递质增加’
过多地刺激突触后细胞。
(c)中枢神经系统会减少突触后膜上的受体
数目来适应这种增加’这就是上痛。
(d)除去毒品后’神经递质的重吸收恢复正
常’受体数目的减少造成神经通略的感
受性下降°这个人要保持正常的生理功
能’必须继续使用毒品。只有这种毒品
被永久性除去’神经系统才能最终恢复
原来的受体数量°
膜受体蛋白的数量和与递质结合的亲
和力在不同的生理或病理情况下均可发生
改变。
当递质分泌不足时’受体的数量将逐
渐增加’亲和力也将逐渐升高’称为受体
的上调;反之’当递质释放过多时’则受
体的数量逐渐减少’亲和力也逐渐降低’
称为受体的下调°
有些膜受体的上调可通过膜的流动性
将暂时储存于胞内膜结构上的受体蛋白表
达于细胞膜上而实现;而有些膜受体的下
调则可通过受体蛋白的内吞人胞’即受体
的内化’以减少膜上受体的数量而实现;
也有些膜受体的下调是由于受体蛋白发生
磷酸化而降低其反应性所致。
主要参考文献‖..
0 ●●●●●●●●●●●●●
的几点释疑
:
●
):66—67。
的几个问题
;
69.
·
●
●
●
●●
●●
[1]陈国庆.关于兴奋传导的几点释疑
[J].生物学教学’20()9(l())
[2]姜振华有关神经递质
[J]生物学教学’2010(3)
2()10(3)
●
●
:69
G
●●●●●G●●●●●●●●●●●●●●●●●●●●●
209
|‖口高中生物疑点通
■
F
■■■
■■■■■■=■■■■■■■■■■■■=
]…=■■=■■■
■■■■■■■■■■■■■■■■■■■■■■■■=■■■=G
■===】
〗
■■■p
■■■=■■■■=■■■■■■
NO是怎样的一种神经递质?
●
—氧化氮(nitricoxide,NO)是最早发现的能在人体内起调节作用
的气体°由于_氧化氮是气体’它能够以扩散的方式通过细胞质膜’因
此它无法被储存在突触小泡中。当需要时,精氨酸就会产生_氧化氮。
_氧化氮仅需要穿过细胞质膜的磷脂部分就可以扩散离开轴突’并进人
邻近的细胞中°
Ca2+通道
突触前神经元末梢动作电位
|二
|
0a2+→
◎
@◎
o·\
突触小泡
′‖
~~
o动作电位导致副交感神经
神经元上的电压门控Ca2+
通道开放,
Ca2+以扩散的
方式进入突触前末梢。
(DCa2+使乙醚胆碱从突触前神
经元的小泡内释放出未。
o同时’Ca2十激活了能催化精
氨酸合成一氧化氮的一氧
化氮合酶°
@乙醚胆碱与平滑肌细胞上
的乙醚胆碱受体结合’
激活G蛋白机制·被活化
的G蛋白使乎滑肌细胞松
弛,
阴茎勃起。
◎一氧化氮与鸟脊酸环化酶
结合,激活后者。活化的
酶将GTP转化为CGMp,
cGMp导致干滑肌细胞松
弛,
阴茎勃起.
□
翻
_氧
化氮
化震
乙酚胆
碱受体
@「.…兰鸟昔酸环化酶
盯∩
◎0‖p
↓
管壁平滑肌细胞
0蛋白
平滑肌细胞松弛
活化的0蛋白导致
平滑肌细胞松弛
—
NO释放引起阴茎勃起的机理
2′0
●
在外周神经系统中’_氧化氮由—些支配肠、胃
收缩和阴茎`呼吸道以及脑Ⅲ管的神经元释放°这些
自主神经元能引起它们所控制的器官的平滑肌舒张°
比如’它能够引起阴茎的海绵组织充Ⅲ而膨大。而药
物西地那非(伟哥)提高了阴茎中_氧化氮的释放
量’以延长勃起的时间。
学习记忆时’神经元突触连接重构’需要突触前
神经元释放神经递质作用于突触后膜’也需要突触后
神经元将信息反馈到突触前膜_氧化氮充当逆行信
使的作用。
需要注意的是’_氧化氮是神经元间信息沟通的
—种传递物质’但与_般递质有如下区别:
(l)它不贮存于突触小泡中。
(2)它的释放不依赖于胞吐作用’而是通过自
由扩散。
(3)它不作用于靶细胞膜上的受体蛋白’而是
作用于鸟昔酸环化酶。
主要参考文献〗……….….……….….
[1]拉弗’约翰逊.生物学[M]谢莉萍,张荣庆,张贵友
译.6版北京:清华大学出版社’2008.
[2]李尚斌关于神经递质的几个常见疑惑解答[J]生
物学教学,2016(3):79.
[3]姜振华有关神经递质的几个问题[J]生物学教
学,2010(3):69.
00
●
■
●
凸
●
●
●
G
■
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
■
■
●
●
■
■
●
●
●
●
●
●
●
●
·
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
2′′
|‖□高中生物疑点通
色
∏
尸
≡■甲===■=====乞====■■■■==■■■■■■■■■■■■字→宇■■■■■■■■■■■■■■■■■■■■■■■■■===■==~■■■=■===■■■■=■■=■■■■
乙毗胆腻任到迹后膜之前是怎样避免被水解的?
■==■====■===■=字==■■■■■■=■==■====≈■■…■■=■■=■■■■■■==』■●…■←===■■==~■■■■■==■==
乙酷胆碱醋酶具有高效性’—个酶分子_秒钟就能催化分解25000↓[mol的乙酚胆碱
(ACh)’突触前膜释放的ACh在到达突触后膜之前是怎样避免被水解的呢?
避免被水解的主要原因有以下两个°
(
|)过量底物抑制作用。底物抑制作用是指酶的催化反应由于底物浓度过高’
其反应速率反而会下降的现象°在蛙的神经肌肉接点的突触前膜中突触小泡的数量多达
l00万个’而每个突触小泡中的ACh分子有5000~l0000个。由于l个ACh分子作用于受体
只能引起03‖V的去极
化’若要产生60mV
的终板电位就需要释
放100~200个襄泡°因
此’在ACh释放的瞬
间’其释放量就非常
大’使得突触前膜处
ACh的浓度非常高’
足以达到对突触前膜
上的乙酚胆碱酷酶产
|效应’从而使ACh有
Ⅶ
严墨■
突触后神经元
\受体
神经递质作用过程示意图
生过量的底物抑制效应’从而使ACh有
机会到达突触后膜而无明显消耗°
(2)突触的结构。突触前膜与突
触后膜之间的距离只有20~30nm’还不
及ACh囊泡的直径(为30~50nm)大。
这样近的距离有利于突触前膜释放的
ACh迅速到达突触后膜而不被乙酚胆碱
酪酶水解。
●●●
)主要参考文献
|
[1]刘明泉突触前膜释放的乙酷胆碱是怎
乙酷胆碱酉旨酶的水解到达突
样“逃脱,,
触后膜的[J].生物学教学’2()17(2):72
●
●
[2]左明雪细胞和分子神经生物学[M].北
京:高等教育出版社’2000:96—15]
●
[3]陈守良动物生理学[M]4版.北京北京
大学出版社’2()12:67
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
2′2
I
=
■■
∏
虽然体液含钙量少’但它起的作用却很大。钙的其中—个作用
就是抑制神经肌肉的过度兴奋°Ⅲ钙浓度降低到7mg/l00mL时’神
经骨酪肌兴奋性增强’会出现手足搐溺症或惊顾。这时静脉推注钙
制剂’提高Ⅲ钙浓度’惊顾即可停止。
~
■
~
~
鹤
|
…
…
御
≡
踞
鳃
α
″
/
…
钮
啡
_
…
◎
匈
ˉ
■
■
互
尸
●
‖
』
ˉ
Na+和Ⅸ+
通道
突触前神经元
突触前膜
…
泊
刨
=
^
…
防…≡
″4斟
●
·
~
G
突触后神经元
突触后膜
′降脑`ˉ
突触间隙
神经递质
受体
钙与兴奋的传递
要搞清楚钙与神经肌肉兴奋性的关系’首先要知道兴奋性`兴
奋和兴奋ˉ收缩偶联是不同的概念。兴奋性是指可兴奋细胞接受刺激
后具有发生兴奋的能力’细胞的这种能力强’则容易兴奋’否则不
容易兴奋;兴奋则是细胞受到外界刺激而发生的反应’所谓的细胞
兴奋实质上是细胞受到外界刺激后在细胞膜上产生了动作电位;兴
奋-收缩偶联是兴奋产生之后的事件’是把细胞兴奋的生物电活动转
变为骨酪肌收缩的机械活动的中间偶联环节。
2′3
凸
|‖□高中生物疑点通
钙离子是兴奋ˉ收缩的偶联因子。钙离子具有
“膜屏障作用’’
’即会对钠离子内流产生竞争性抑
制,细胞外高钙使钠离子内流受到抑制’细胞兴奋性
有所下降。这就是为什么Ⅲ钙浓度过高会导致肌无力
的原因。
当Ⅲ钙浓度较低时’钙离子的“膜屏障作用’’减
弱’细胞兴奋性增高’骨酪肌细胞容易兴奋。但肌浆
内的钙离子’并没有因为细胞外低钙而减少。因为骨
酪肌细胞有丰富的肌浆网’肌浆网内储存有足够的钙
离子’骨酪肌细胞兴奋使其肌浆网钙离子释放’可以
迅速提高肌细胞浆内钙离子浓度’当肌细胞浆内钙离
子浓度达到l0~5mol/L(为静息状态时的l00倍)
’
引发兴奋-收缩偶联’故此环节未受影‖问。所以’低
钙时’_方面因膜屏障作用减弱而使细胞兴奋性增
高’而另_方面’兴奋-收缩偶联未受影响’所以表
现为肌肉抽搐。
=
」
|主要参考文献l….……….
●●●●●●●●巴●●●●●●
●
与肌肉抽搐
[1]郭增平低钙、补钙`钙离子拈抗剂
[J]生物学教学2009(8):28
[2]王加真张军钙与肌肉收缩|J]」|
报1996,4:319—321.
临
●
■
●
沂医专学
].中学生物
[3]周韦低血钙为什么会引起肌肉抽搐?[J
‖p
教学’2014’4:70
●
●
●
●
●
■
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
2/4
刁
曰
尸
■
…=早■■=≈=·■p ■■→■■■■■■■■=■字==■■≡■■■0■■■■■■■=■=■■~■■■■■■≡0■■■■■■■■■■==■■■■■=■■=■■0■■■■=■≡■■■■■■■
·■■■■■
呵卡圃等毒品止臆的机鲤是什么?
■■■■==■~■■三■■■■■■■■■←=■■≈■■■■=■■■■=≡■■=■■≈■■■■■■≡■■■■■=■■
■■■|■■■===■■■■=■■■
0■■■■■■■■→=■■■■==■■■=
经典的机制是可卡因通过与多
巴胺转运体结合’抑制多巴胺的重摄
取。大脑内的多巴胺能使神经元持续
兴奋’使服用者产生快感并成臆。
可卡因会影‖问大脑中与愉悦传递有关
的神经细胞(即通常所说的边缘系
统)’可卡因会与突触间隙中的转运
蛋白紧密结合。在正常状况下’这些
蛋白会清除已发挥过作用的多巴胺。
在这里’所有的转运蛋白也都被占据
了’没有转运蛋白能够将多巴胺清除出
去’使多巴胺在突触间隙中的停留时间
延长’不断刺激突触后细胞。
当边缘系统中神经细胞上受体蛋
白长期暴露于高浓度的多巴胺分子中
时’这些神经细胞就会通过减少它们
表面的受体蛋白分子的数量来“减小
音量’’ 。这样’可卡因的使用者就上
滤了。
由于细胞表面的受体过少’使用
者甚至要依靠这种毒品来维持边缘系
统的正常活动。只有这种毒品被永久
性除去,神经系统才能最终恢复原来
的受体数量。
■_
▲
巴
■
受体蛋白
可卡因的作用机理
庄票…0……………
|
川王蹭候帕树…等可卡…帆
制的研究进展[J].中国康复理论与实
●
●
●
践2010(10):942—944.
:
!
[2]拉弗’约翰逊生物学[M|谢莉萍张荣
庆’张贵友’译6版北京:清华大学出版
社’2008.
●
●●●
●●●
●●●●●●●●●●●●●●●●●●■●●●●●●●●●■■●●◆●●●
●●●●●●●●
2′5
毗″`d严割』
赃
|‖□高中生物疑点通
■≡=二===■■=空■…■■==■=■→===■≡======≡≡二二■==-■=■=■====■≡===】
激素分泌的调节拘式有"‖些?
===■===~■==■=■=====≡户=====≈←=====>■■====≈======…邑======】
内分泌
=n瞒
旁分泌
一7
|
了
三可
↓
效应
自分泌
■■←
|型
细胞
|型
细胞
|
激素-
~|
一」
甲午
—
↓
效应
-
↓
效应
||型
细胞
||型
细胞
||型
细胞
|型
细胞
激素分泌的几种调节方式
↑。激素分泌的分级调节
激素的分级调节是指从中枢神经系统发出的信号’通过下丘
脑—垂体ˉ其他内分泌腺组成的内分泌主轴’这种调节作用由以
下三个主功能轴承担:下丘脑ˉ垂体ˉ甲状腺轴、下丘脑ˉ垂体ˉ
肾上腺皮质轴、下丘脑ˉ垂体ˉ性腺轴。以下丘脑为中心的内分
泌调节系统’就是通过上述三个功能轴来调节甲状腺激素、糖皮
质激素和性激素分泌的。其他腺体并不受此类调节轴的控制。
有人将胰岛素`肾上腺素等激素的分泌调节,也归人此调节
轴中’并臆造出—些诸如‘‘促肾上腺激素释放激素”等错误概
念’这明显是错误的°
2神经系统对激素分泌的调节
部分腺体的激素分泌过程’受到自主神经系统的直接调
节。高中生物学教材涉及的激素中’胰岛素`甲状腺激素、肾上
腺髓质激素的分泌都可直接受自主神经系统调节。
2′6
已
●
●
■
■
●
`1鹏叼\栅二栅〈翅′v}辙′p烂\
′
第三篇稳态与调节
『1
(
|)自主神经调节肾上腺髓质激素的分泌
肾上腺髓质激素包括肾上腺素和去甲肾上腺素。肾上腺髓质受交感神
经节前纤维支配’当交感神经兴奋时’节前纤维末梢分泌乙酷胆碱作用于
肾上腺髓质的部分细胞的受体’引起肾上腺髓质激素分泌的快速增加。这
种调节方式与人体的应激反应有关。当人体突然受到外界有害刺激时’交
感神经ˉ肾上腺髓质系统会立刻做出反应’使机体出现心率加快、Ⅲ糖升
高等现象。这种调节方式比下丘脑ˉ垂体ˉ其他内分泌腺功能轴的调节速度
迅速得多’体现出自主神经系统直接控制激素分泌的优势。
(2)自主神经调节胰岛素的分泌
胰岛素的分泌受交感神经和迷走神经的共同支配°当迷走神经兴奋
时’胰岛素的分泌量增加;迷走神经还可以通过刺激胃肠道激素的分泌’
间接促进胰岛素的分泌。当交感神经兴奋时’胰岛素的分泌则会被抑制。
另外’下丘脑腹内侧核也可使胰岛素的分泌量减少。
3.腺体自身对激素分泌的调节
部分腺体自身具有感知体内环境或效应物变化的能力’它们可以根据
这些变化’
自主地调节其激素分泌量。
(
↑)甲状腺的自身调节
碘是甲状腺激素合成的必需原料’
甲状腺自身也可以感知体内碘浓
度’并适应其浓度变化。在Ⅲ碘升高初期’
甲状腺激素合成有—定量的增
加;当Ⅲ碘超过—定限度时’
甲状腺激素合成与分泌速率将在维持—段高
水平后出现明显的下降;而当Ⅲ碘含量不足时’
甲状腺出现碘转运机制的
增强’并提高甲状腺激素的合成与分泌速率。
(2)胰岛的自身调节
胰岛细胞本身具有感知Ⅲ糖浓度变化并改变胰岛内激素的分泌量的能
力。高Ⅲ糖浓度可以促进胰岛B细胞的分泌而抑制胰岛A细胞的分泌’从
而增加体内胰岛素的含量并减少胰高Ⅲ糖素的含量。当Ⅲ糖浓度恢复正常
2′7
℃《
℃《
、
|‖□高中生物疑点通
时’胰岛素和胰高Ⅲ糖素的分泌便回到正常水平。Ⅲ液中的氨基酸、脂肪
酸、酮体等也可以刺激胰岛素的分泌,其中精氨酸和赖氨酸的作用最为明
显。单纯的氨基酸等物质的增多只会引起胰岛素分泌的轻微变动’但当
Ⅲ糖含量升高伴有氨基酸和脂肪酸含量升高时’胰岛素的分泌量会明显
增加。
4激素间的相巨影‖问作用
除上述三种主要的分泌调节途径外’激素间相互影响也可以调节激
素的分泌。例如’肾上腺皮质分泌的盐皮质激素和糖皮质激素可以促进
肾上腺髓质激素的分泌;胰岛素可以直接作用于邻近的胰岛A细胞而抑制
胰高Ⅲ糖素的分泌,也可以通过降低Ⅲ糖浓度’间接引起胰高lⅢ糖素分
泌的增加。
■●●●e●●●●●●●●
●●●●●●●●●■●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●
0
)主要参考文献
◆
●
[1]王颖激素分泌的调节万式[〗生物学教学2016,10:80—81
●
3版北京:高等教育出版社,2002:550
[2]王镜研’朱圣庚,徐长法生物化学:上册[M].3版北京:高等教育出版社
[3]郑春和高中生物学新课程知识释疑_‘‘稳态与环境,,模块[J]
报’2010,45(11):28—32
[4]杨秀平动物生理学[M].北京:高等教育出版社’2002:302ˉ-304ˉ
[5]于频.系统解剖学[M].4版北京:人民卫生出版社’1998:295ˉ
生物学通
窑
●
●
■
●
I
●●●●●●●●●●●●●●●●●●●●●●●●●●Q●●■■●●●■●●●●●■●■●
■
■■●●●●●●●●●■●●●●●●●●●●●■●●●●●●●●●●●●●●●■■◆
2′8
●U■
●
●
●
●
●
●
●
●
●
●
●
■
…′`u′叼沁′怔
`
第三篇稳态与调节
■
■
■
■
■
■
IIIIIII
腆岛素的分泌到厩受什么调控?
~
∏
●胆囊收缩素
\乙酚胆碱
胰高血糖素●
G[尸-‖
腺昔酸环化酶
■
●生长抑素
磷脂酶c
}! .绊∏…‰…:(;…=
人甘油二醋
Gq
ˉ|尸3△
厂
蛋白激酶C
~\声
\二■
α
『
『
■
■
■
—
α
◎
尸
■
↓
删
|
丁
^
雕
枷
~/
|
寸
丁
白
∧
●
蛋
—
◎
●
●
●
●
●
田望
感蛊已
|〈赣●
ca20
涎
葡萄糖
G[0丁2
转运体\
●
‖目
匡
二
/
曰
叼
巳
盯
老
习
鬼
~
~
~
|
山
旧
胰岛素分泌的调节
葡萄糖转运体是—类镶嵌在细胞质膜上转运葡萄糖的载体蛋白’它广泛分布于体
内各种组织。根据葡萄糖转运方式’葡萄糖转运载体可分为两类:_类是钠依赖的
葡萄糖转运体(SGLT)’以主动方式逆浓度梯度转运葡萄糖;另—类葡萄糖转运体
2′9
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
0
|‖口高中生物疑点通
(GLUT)’以协助扩散的方式顺浓度梯度转运葡萄糖。目前已知GLUT主要有7种’即
GLUTl~GLUT7。GLUT4主要分布在胰岛素应答性组织’如肌肉和脂肪’这些组织的葡
萄糖转运对胰岛素呈敏感反应。GLUT4与其他异构体最重要的区别是:在没有胰岛素刺
激情况下’它只保存在细胞的囊泡中。
Ⅲ糖浓度高直接作用于胰岛B细胞。胰岛B细胞对Ⅲ糖浓度的变化非常敏感’在持续
高Ⅲ糖的刺激下’胰岛素的分泌可分为两个时相:第—时相是在Ⅲ糖升高开始3~5mln’
胰岛索的分泌增加’主要来源于胰岛B细胞贮存的胰岛素释放;第二时相是在Ⅲ糖升高
l5min后胰岛素分泌增加’主要是激活了胰岛B细胞胰岛素合成酶系’促进胰岛素的合成
与释放。葡萄糖刺激胰岛B细胞分泌胰岛素的机制是通过ATP介导的°当Ⅲ糖浓度增加
时’细胞外的葡萄糖在GLUT2的作用下进人胰岛B细胞内’葡萄糖随即被葡萄糖激酶磷
酸化’成为6-磷酸葡萄糖。6-磷酸葡萄糖氧化生成ATP’ATP能特异性地抑制细胞质膜
上的ATP敏感性钾通道’导致细胞质膜去极化’进而激活电压依赖性钙离子通道’使钙
离子内流’细胞内钙离子浓度升高’从而激活胰岛素合成和分泌所需要的—系列酶或蛋
白’然后将胰岛素分泌至细胞外。
Ⅲ糖浓度高通过下丘脑间接作用于胰岛B细胞°下丘脑能通过GLUT2、葡萄糖激
酶、ATP敏感的钾离子通道感受外周Ⅲ糖的变化并对其进行调控。在下丘脑的腹内侧
核(VMN)和下丘脑外侧(LH)均含有葡萄糖敏感的神经元’分别称为葡萄糖应答性
(GR)和葡萄糖敏感性(GS)神经元。与胰岛B细胞类似’GR神经元通过ATP敏感的钾
离子通道来感受葡萄糖’Ⅲ糖升高使细胞内ATP/ADP增加’钾通道关闭’细胞去极化’
GR神经元动作电位频率增加。GS神经元具体如何感受葡萄糖变化尚不清楚。下丘脑中
的葡萄糖感受器接收到葡萄糖信号后刺激迷走神经兴奋’通过迷走神经传出纤维末梢释
放乙酚胆碱’作用于胰岛B细胞表面特异性受体’启动胰岛B细胞的第二信使’从而刺激
胰岛B细胞合成并分泌胰岛素°
总之’胰岛B细胞胰岛素
分泌的调节是_个复杂过程’
受到营养物质`激素`细胞因
子等多种因素的共同调控。
∏
~
献
文
考
参
要
主
彰
●●$●
生物学教
|1]王晓群胰岛素的分泌及作用释疑[J]
学’20l6(8):77—78.
●
M.奈特人体生理学彩色图
[2]HansenJT’KoeppenB
谱[M]朱大年’译.北京人民卫生出版社’2()()5.3
●
■
●
●
●
●
●
●
■
●
●
●
■
●
●
●
●
●
●
●
●
●
●
■
■
■
●
■
●
●
■
●
■
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
220
●
●
■
●
●
●
●
●
●
第≡篇稳态与调节
Ⅷ糖素的作佣及碉者的关系?
≡二二二宁ˉˉˉˉˉˉ=ˉˉˉ-ˉ卓碍……≡色==营≡=■宙==ˉ=色=ˉ,-ˉˉˉˉ==2
‖‖|〖|哪|}删‖阔岛素‖}‖||闻后
在调节Ⅲ糖方面,胰岛素与胰
高Ⅲ糖素的作用是拈抗的:胰高血
糖素主要促进肝糖原的分解’使Ⅲ
糖升高’作用强烈’还能促使脂肪
分解。胰岛素主要促进肝细胞、
肌细胞`脂肪细胞摄取`储存和利
用葡萄糖’抑制氨基酸转化成葡萄
糖’降低Ⅲ糖浓度°
至于“胰岛素的分泌量增加会
抑制胰高Ⅲ糖素的分泌”和‘‘胰高
Ⅲ糖素的分泌会促进胰岛素的分
泌’’的提法是有具体条件的。前者
是在Ⅲ糖浓度高的情况下发生的。
此时机体要尽快降低血糖浓度,所
以胰高Ⅲ糖素的分泌受到抑制。后
者是在Ⅲ糖浓度低的情况下发生
的。而Ⅲ糖升高后的关键在于Ⅲ糖
进人细胞内得到利用。血糖能否进
人细胞内’就取决于胰岛素。因为
胰岛素能够促进葡萄糖进人细胞
中’进—步实现葡萄糖的氧化分
解,合成糖原,转变成脂肪`氨基
酸等’从而降低Ⅲ糖浓度。因此’
胰高Ⅲ糖素的分泌势必会促进胰岛
素的分泌。
=≥胰岛
胰腺分泌胰岛素
进入皿液
/″
—I
|■一稳态;正常血
成糖原
脏中
■
糖浓度
ˉ
|
≡—
…丙亩-
肝脏把糖原分解为
葡萄糖
\
胰高血糖素≤-一
无进餐
血糖ˉ平衡的调节
主要参考文献‖..…
●●●■●●●
bq二=二
●
[1]王国红
●
●
●
疑问的
●
高中生物学教学中几个
探析[J]生物学教学’2015
●
●
●
(8):70—7]
●
●
■
●
●
●
●
●
●
●
●
●
■
●
■
●
=
●
■
●
●
■
■
■
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
’2′
·吕
●
●■
●
●
●●
●●
●●●●
◆●●●●
●
●
●●●●●●
●●●●◆心●砂
●●●●●●●●
●
购′″`腆/∏
|‖□高中生物疑』点通
′
|
肝细胞
胰岛素的作用
|
|
胰高血糖素
的作用
胰岛素与胰高血糖素的作用
肝脏的主要功能之_是维持Ⅲ糖水平的稳定。在用餐后到下次进餐前’以
及肌肉运动时’肝脏会释放葡萄糖到Ⅲ液中。释放出来的葡萄糖’主要被脑、
骨酪肌和红细胞吸收。
糖原在糖原磷酸化酶的作用下先产生葡萄糖-lˉ磷酸’然后在细胞质基质
中’在磷酸葡萄糖变位酶的催化下再转化为葡萄糖ˉ6ˉ磷酸。糖原分解后产生
磷酸化的葡萄糖。与未磷酸化的葡萄糖相比’它们不会被运出细胞。
在肝脏中’葡萄糖ˉ6-磷酸在葡萄糖ˉ6—磷酸移位酶的作用下被运往内质网
(ER)。在那里’葡萄糖ˉ6-磷酸在葡萄糖—6—磷酸酶(与催化糖再生最后_步
的酶是同—种酶)的作用下转化为葡萄糖。肝脏则不将葡萄糖作为能源物质。
葡萄糖-6ˉ磷酸+H2O—→葡萄糖+Pi
222
q}
山
●
、≥撇咖翅′W壤′"娜v\硼Ⅵ/哪vh√v≤钳嫂Ⅱ哦蜘′∏沁′p√
第三篇稳态与调节
^′″`膨抑
接着’葡萄糖从内质网
转移到细胞质基质。肝细胞
将糖原分解后产生的葡萄糖
释放到Ⅲ液中’以维持Ⅲ糖
浓度’这样的过程_直持续
到糖再生途径能产生较多葡
萄糖为止°
而在肌肉中’
由于缺
乏葡萄糖ˉ6ˉ磷酸酶’葡萄
糖-6ˉ磷酸无法去磷酸化°
它进人糖酵解过程’为肌肉
收缩提供能量。
肌糖原作为能量储备’
不参与Ⅲ糖升高的调节°胰
高Ⅲ糖素不会激活肌肉细胞
的磷酸酶级联反应(肌细胞
的细胞质膜上没有胰高皿糖
素受体)。肌糖原只会在肾
上腺素的作用下发生分解’
故肌肉组织不参与Ⅲ液中Ⅲ
糖浓度升高的调节°
p
p
b
胰高血糖素的作用
}≡=I………………………
●
■
●
●
[1]Ga∏ett.Biochemistry[M].6thedCengagePress’2()17:779.
●
[2]VOet.Biochemist1y[M].4thedJohnW1ley&Sons,201():661.
●
●
[3]StryerL’BergJM’TymoczkoJL’etal.BiochemistIy[M].8th
■
●
■
ed.622—623。
●
●
●
●
●
[4]KoolmanJ’RoehmKHColorAtlasofBiochemistry[M].
●
●
●
●
2ndedˉThieme’2005:156ˉ
●
●
●
●
●
[5]VOetD’VOetJG,PrattCWFundamentalsofBiochemistrv
●
●
●
[M].4thedUmtedStates:Wjley’2015:525.
●
●
●
●
●
[6]HarvevRA.Llppincott,sIllustratedReviewsBiochemistrv
●
●
●
●
[M].5thedLippmcottWiⅡjams&Wl1kms:13O
■
●
■
●
●●
●
●
●
●●●
●●●●●●●●●O●●●●■●●●●●●●●●●●●●●●■●●●●●
●
●
●●●●●●●●●●●●●●●●●●●●●●●●●●
223
●
●
●
●
●
●
●
●
●
■
●
■
●
●
●
扮
●
●
●
◆
◆
■
●
●
●
●
●
●
■
●
●
●
"
|‖□高中生物疑点通
司
《
C
胆固醇
司
↓cγP{|A|
△5—孕烯醇酮
i/
\『γ同,
3β-‖SD
孕酮
‖7α-轻孕烯酉
烯醇
尸
■
酮
\i…
|7α-轻孕酮
/\【
{|-脱
°γP2{畅/
Cγ
{‖-脱氧皮质酮
/
Cγ尸{{B
皮质酮
脱氢表雄酉
γ.y’/
Cγ
脱氢表雄酮
■
(D|ˉ|巨∧)
「
CγP{7★
~
≡
O|ˉ{
O|ˉ|
■
■.
O
O
~~
O
肾上腺皮质激素的分泌
224
·
■
凸
■
●
●
◆
●
●
●
●
●
●
●
●
■
β
■
■
■
β
第≡篇稳态与调节
卜潞≡d
卜潞≡d
八Z
坞
‖
`
《
〃
缚
√
」
一
■
霉丝)
鞭
交感(神
经)干
0‖
。
0‖
…
闺上腺髓质
2=0‖=000‖
‖‖2
酪氨酸
zˉ!‖』ˉ‖‖2
多巴胺
0
=0"2=‖‖2
肾上腺素
主动脉前神经节
{撇读
0‖
勒
0‖
0‖2
肾上腺皮质
肾上腺素
揣
+
■
℃
■
■
巾原k升
什
什
{
宁
++
+
喘
‖
『张’
|」
志宾
游离脂肪
(
酸(「「∧)
脂肪分解
崇
尸您
犀′
中枢神经系统兴奋
气管舒
肠受抑带
‖尸
|
去甲肾上腺素和
肾上腺素的代谢
产物从尿中排出
肾上腺髓质激素的分泌
从上图可以看出’
肾上
腺素是由肾上腺髓质分泌’
直接受神经支配;而肾上腺
皮质激素是由肾上腺皮质分
泌’是与甲状腺激素分泌类
似的分级调节°
)主要参考文献}………………………..
[1]拉弗’约翰逊ˉ生物学[M]谢莉萍张荣庆’张贵友’
译.6版.北京情华大学出版社’2008ˉ
[2]HansenJT’KoeppenBM.奈特人体生理学彩色图
谱[M]ˉ朱大年译北京:人民卫生出版社’2005.
●
■
●
●
●
●■●●●●●●●●●O●●●●●●●■●■■●■■■■■■O●●●■●●■●●O●O●●●●●●
●
●●■●●
225
●●
■●
●
●
●
●●
●
●
\趣|
|‖□高中生物疑点通
△
尸
■■■■■■■三■■■■=■■■■=…■≡=■■■=■■■■■■■■■■=■=■■■■■■■■■■■■
■■■■==■■■■=■■==■■■■■■■■=■■■■
肾止腺素与肾止腺激素一样‖马?
曰■■==≡≈■=≡≡■■■■■■■■■■■■=■■===≡=■===■■■■=岂=≡乙■■=■■■■■■≈■■■…=■≈■■■■■■■■
□■
■
球状带
~
束状带
网状带
肾上腺
髓质
~
肾上腺的结构
肾上腺素属于肾上腺激素的—种。
肾上腺皮质:
受垂体前∩十激素
(∧0『‖)调控
肾上腺分为皮质和髓质两部分’其中皮质
又分为球状带、束状带和网状带三部分。皮质
球状带是分泌盐皮质激素的’如醛固酮激素,
可以调节人体的水盐平衡;束状带分泌的是糖
皮质激素’负责调节糖、脂肪和蛋白质的代
谢’同时还具有减轻炎症的作用;网状带分泌
雄性激素’主要负责维持性欲和体毛分布°肾
上腺素是肾上腺髓质分泌的’具有收缩Ⅲ管`
升高Ⅲ压的作用。
肾上腺髓质:
受交感神经系统
调控
肾脏
肾上腺
肾上腺分泌的调控
)主要参考文献
[1]孙甫芳.对高中生物学教学
个知识点的分析[J].生物
学’2014’2:6()—61ˉ
芳.对高中生物学教学中几
学教
226
■
■
●
●
●
●
●
●
●
●
●
●
●
■
●
激素调节是体液调节中的
重要内容。各种激素’根据化
学结构可分为两大类:—类是
含氮类激素’例如胰岛素、抗
利尿激素、甲状腺激素等;另
_类是类固醇类激素’例如雄
激素和雌激素°两类激素化学
结构不同’作用机制也不同,
与受体之间的作用也不同。
含氮类激素到达靶细胞
后’与细胞质膜表面特异的受
体结合’引起受体结构的变
化’而这种变化又引起与受体
游离激素
●
!.哼
=
●
分子紧密连接的腺昔酸环化酶
激素调节基因表达过程
变构而激活’继而再引起激素
带来的生理效应。不同种类的细胞有不同的受体’
甲状腺细胞的受体只能结合促甲状腺
激素(TSH)’肾上腺皮质细胞的受体只能结合促肾上腺皮质激素(ACTH)。而有些
细胞质膜上有多种受体’可分别与多种相应的激素结合而发生作用。
类固醇类激素都是小分子’扩散进人细胞后’可与细胞质中的受体分子结合’形成
」窒襄…)………………
[1]朱小燕.与受体有关的常见问题答疑[J].
生物学教学’2014’1l:79—8O
●
;
[2]吴庆余基础生命科学[Ml2版北京高等
:
教盲出版社’2006.
●
:
[3]吴相钮,陈守良’葛明德陈阅增普通生物
学[M].3版北京:高等教育出版社’2009.
●
“激素—受体复合物’’
’该复合物
在—定条件下穿过核膜进人核内,
与染色质上的_种酸性蛋白相互作
用’促使基因表达,合成某种蛋白
质(酶)’进而引起这种激素的生
理效应。
●
●
●
●
●●■●●●●●●■■■口●■■■●●●●■●●●●●●●●●●●●■●■
■●●●●●●●●●●●●
227
●
●
●
h
IIGL
I
则′\‘′隐到‖
则′″`则′v铡′吻√惫M′`′″`〃Ⅵ铡′√
|‖口高中生物疑点通
h
】
==…=■■=■■■■
l■■■■■■■■■■≡■■■■■■■■■
■■■
■■■■■■■■■■
】■■
■■=■■■■■■■■■==■■■■■■■■■■■■■■■■■■=■■===
素的受体都任绷胞质膜一k旧?
乙■■■~■■=■■■■■■■■■==→=■■■■=■=≡=■■■■■■
■■
■■■
■■→≡■■■
■■■■■■=■■■■■■■■■■■■■■■=■■=■==h■■
■■
受体是指能与特定的生物活性物质选择性结合的生物大分子。有些教
材中的插图也都只是把细胞质膜表面的受体体现出来’这使得学生认为只
有细胞质膜表面存在受体°实际上’根据受体所处位置不同’受体有细胞
质膜表面受体和细胞内受体两种类型。
那些体积太大’或是具有极性以至于不能穿过细胞质膜的激素’包括
所有肤类和糖蛋白类激素’以及肾上腺素和去甲肾上腺素这些儿茶酚胺类
激素’这类激素与位于靶细胞质膜外侧的蛋白质受体结合’不进人细胞°
肝细
\
∧
‖
腺甘酸环化酶
\
G蛋
〗
受体蛋白
G『
糖原
肾上腺素的作用机理
◆
●
时
22J
●
●
●
G
瓜
\
郎`′
‖『
‖qd
第三篇稳态与调节
′/
@…*
血浆
S
蛋白质载体
细胞质膜
S
@
细胞质
o类固醇激素通过细胞膜
@在靶细胞内,
类固醇激素
与细胞质基质或细胞核内
的特定蛋白质受体结合
@激素_受体复合物进入细胞
核0连接至|」D‖A分子上,
弓|
起基因的转录
@诱导蛋白质的台成
@蛋白质产生
S
|
、
染色体
细胞核
『∏∩‖∧
组织液
蛋白质
|
类固醇激素的作用机理
′〃7
血浆
细胞质
三碘甲状腺原氨酸
圃←~@
质载体
细胞质膜
受体蛋白
圃
组织液
∩
细胞核
甲状腺激素的作用机理
229
●
●
●
●
●
●
●
●
●
●
GGGI
GI
GGGI
h
‖
|‖□高中生物疑点通
如果把它看作从内分泌腺到靶细胞的信号传递者’那么在靶
细胞内就需要第二信使来发挥激素的作用。很多水溶性激素
与其受体的结合_般是可逆的’并且十分重要。它结合到受
体上并激活第二信使系统后’便与受体分离’通过血液运到
身体的其他靶细胞处。最后’酶(主要在肝中)将其降解为
非活性衍生物。
细胞内受体主要存在于细胞核中’少数存在于细胞质
中,能识别并结合脂溶性信号分子。例如’类固醇激素由于
本身是脂类’所以是脂溶性的’甲状腺素是非极性氨基酸的
衍生物。因为它们的非水溶性’它们不能在体液中扩散’而
是被血液中的蛋白质载体运输。当它们到达靶细胞时’便
与载体脱离’通过靶细胞质膜进人细胞内°—些类固醇激素
之后结合到细胞质的蛋白质受体上形成复合物’进人核中。
其他的类固醇类激素则在结合受体以前直接进人核中°不论
其在核中结合受体还是以激素—受体复合物的形式被运到核
中’其余的过程几乎—样°脂溶性激素’包括所有的类固醇
类激素、甲状腺素`其他亲脂性调节分子如视紫红质或维生
素A’都可以轻松地进人细胞。
|
/=文献}
●●●■●●凸●●●●●●●●●●●●●●●●●●●●●●
●
●
[1]黄文彦.神经调节的若干问题探讨[J].中学生物教
学’2015(13):34_35.
[2]拉弗,约翰逊生物学[M]谢莉萍,张荣庆’张贵友’
译.6版.北京情华大学出版社’2008.
●
$
导
■
●
●
尸
匹
G
GGGGGGGGGGGGIGGGGGGGGGGGGGGGGGGGNGGGGIGGGGGGG
IGGGIGGGGGGGG
230
仆
●
$
●
●
●
●
■
■
●
◆
叶
●
●
●
●
仰
●
●
●
‖
●
●
●
■
◆
■
●
肿
■
曝
■
●
●
■
■
●
$
铀
盯
●
≡===■→=====~===■学■==→■============≈===≈=======≈=≈=≡≡】
靶绷胞是如何识别激素的?
◇
■
□
~
■
`
■
(b)肋类激素的作用机制
不同激素的作用方式
在动物体内’每—类细胞都有独特的受体蛋
白’它们使细胞能识别相应的信号分子并弓|起相应
的反应°这些信号分子有多肋`蛋白质`糖蛋白`
同醇以及脂肪酸的衍生物等。能够识别这些信号分
子的是具有独特受体的靶细胞。
激素通过血液的传送到达相应的靶细胞’以调
节细胞的各项生理活动。不同的靶细胞可以识别不
同的激素’比如:胰岛素的靶细胞可以是肝细胞`
骨酪肌细胞和脂肪细胞;胰高Ⅲ糖素的靶细胞是肝
细胞;
甲状腺激素的靶细胞则几乎是全身的组织细
胞;促甲状腺激素的靶细胞是甲状腺细胞;黄体生
成素的靶细胞是卵巢或翠丸的间质细胞;黑色细胞
刺激素的靶细胞是上皮色素细胞等。
|=冀赋`……^
|
川粱露向巾华物带知识中的帜{
别’’机制集录[J].生物学教学’
|
2011 (12):63~64.
●●●●O●●●●●●●●●●■●●■亏■7●■■●●●●●■●●●●●●●●Q●e●
●
●
23′
|‖□高中生物疑点通…
~
~~
过Ⅷ液运输旧?
定
~~~
脏细胞
—肝
胰岛素
k■
乙
肝脏
0
凶
b._种激素的
运输和接收
\
胰腺
二小动脉
神经递质
翻
■
睁
突触小泡
神经纤维轴突—
a神经递质运输和接收
神经递质与激素的运输和接收
人体激素传输信息的方式有多种:
(
|)远距分泌:大多数激素经血液运输至远距离的
靶组织发挥作用’这种方式为远距分泌。
(2)旁分泌;—部分激素分泌后经组织液扩散而作
用于邻近细胞’也叫作邻分泌。例如’性激素在卵巢局部的
232
■
~
翅八严′"硼聊~
第三篇稳态与调节
`
作用’胰高血糖素刺激胰岛B细胞分泌胰岛素。
(3)自分泌:是指有些激素分泌后’经组织液扩
散又作用于该分泌细胞而发挥反馈作用。
(4)内在分泌或胞内分泌:有些激素可直接在
合成该激素的细胞内发挥作用。例如’胰岛素可抑制B细
胞自身分泌胰岛素的活动’肾上腺髓质激素抑制自身合
成酶的活性。
(5)神经分泌:激素由神经元合成后沿轴突运送
至末梢释放’可弥散作用于邻近的细胞’或直接释放到
Ⅲ液循环中发挥作用’如下丘脑神经元分泌的调节肤通
过垂体门脉系统作用于腺垂体。
(6)腔分泌8激素直接释放到管腔中发挥作用’
如某些胃肠激素可直接分泌到肠腔中。
●●●●●●●●●●●●●●●●●●●●
主要参考文献
|
[1]吴举宏关于激素及其调节方面的问题探讨[J]生
物学教学’2015(2):59—61.
[2|李国彰.生理学[M].2版.北京:人民卫生出版
社,2()03:261—338’42a
[3]孙庆伟’周光纪’白洁,等人体生理学[M].3版.北京:
中国医药科技出版社’2011:352—355`
●
●●■●●●●●■●●●●■●●●
==▲▲■■●●●●●●■●●●●●■■■■■■■■←■=≡
·
●
●●●●●●●●●■■
233
◆
仙
◆
凸
坠
侈
■
◆
份
●
`′″`则/Ⅵ
|‖□高中生物疑点通
■
~
~
O
ˉ巳ˉˉ」
』
!
‖
串
脂溶性激素
转运蛋臼
水溶性激素
o激素分泌出
来进入细胞外
液井通过皿液
运输
分
@激素通过血
液运输,从血
液扩散到组
织液
~
~
◎非靶细胞缺
乏受体,激素
对此不起作用
@靶细胞具有
受体,被激素
激活
霉罐/
未参与作用的
激素被肝脏或
肾脏清除
激素的作用及去向
各种激素’根据它们的化学结构可以分为两大类:
—类称为类固醇激素’由肾上腺皮质和性腺所分泌’如皮质醇、醛固酮、雌激素、
雄激素`孕激素等。这类激素的化学分子结构很复杂’不容易被消化’同时也不容易
被分解成小分子物质直接排泄出来’因此’作为药物使用时可以口服°它们在发挥作
234
●
■
胎
●
◆
■
●
●
●
●
●
◆
●
●
●
●
●
●
●
■
●
●
●
●
●
●
怂
■
■
●
●
◆
◆
●
■
●
●
●
■
■
●
●
●
■
■
●
●
●
′Ⅵ′\撼』′『′《慰′p/咙二
第三篇稳态与调节
`
用后,主要被运送至肝脏’经过肝脏加工成可溶性的物质’从肾脏由尿排
出’还有_部分则是经胆道进人肠道由粪便排出。
另_类是含氮激素’包括氨基酸衍生物类激素以及多肤和蛋白质类激
素。其中的氨基酸衍生物类激素’如甲状腺激素、肾上腺素、去甲肾上腺
素等,在发挥生理作用后被降解而灭活;多肤和蛋白质类激素’如促甲状
腺激素`促肾上腺皮质激素、抗利尿激素、生长激素`胰岛素、胰高Ⅲ糖
素等易被胃肠道中消化酶所分解而破坏’临床应用_般不宜口服而需注
射。这类激素在发挥生理作用后’主要被肝脏分解’小部分在肾脏`小肠
等其他部位分解°
激素在发挥其调节作用后’即被降解而失去其生物活性’此过程称为
激素的灭活。肝脏是激素灭活的主要场所’例如’雌激素和醛固酮在肝内
与葡萄糖醛酸结合失去活性’雄激素在肝内与硫酸结合失去活性。肾上腺
素、去甲肾上腺素可以在肝内进行脱氨或与葡萄糖醛酸结合而灭活。甲状
腺激素降解的主要途径是脱碘’ 80%的甲状腺激素(T4`T3)在外周组织被
脱碘酶脱碘’脱下的碘除供再利用合成甲状腺激素外’其余大部分随尿液
排出’ 20%的甲状腺激素(T4、T3)在肝内降解’与葡萄糖醛酸或硫酸结合
后’随胆汁人肠道由粪便排出。许多多肤类及蛋白质类激素也主要在肝
脏内灭活,如胰岛素主要在肝中灭活’胰岛素分子二硫键断裂形成链’继
而在胰岛素酶催化下进_步水解成氨基酸而失去活性。脑垂体后叶释放的
抗利尿激素也与肝内葡萄糖醛酸结合被灭活。
)主要参考文献l……………………….
●
[1]陈磊.动物激素发挥作用后的归宿[J].生物学教学’
2010(3):62—63.
[2]吴相钮.陈阅增普通生物学[M].2版.北京:高等教
育出版社’2005:135—136.
[3]朱大年.生理学[M].长沙:湖南科学技术出版社’
2000:203。
[4|章有章.生物化学[M]北京:北京医科大学出版社’
2000:185.
●
●
●
●
●
●
●
●
●
■
●
●
●
GG
GGGG
235
‖
‖
‖
●
●
●
●
●
●
●
●
毋
●
●
●
●
●
●
●
●
●
●
GG
●
●
■
●
●
■
●
谷
●
■
●
O
|‖□高中生物疑点通
■
尸
=】
』
■■■■■■■■
∧体的钵温是姐侧蛮化『0维椅0g?
■■==■■■■■■
人利其他高等动物机体的内部温度是相对稳定的,故称为恒温动物。而低等动物’
如爬虫类、两栖类,其内部温度随着环境温度的变化而变化,因而称为变温动物°正常
的体温是机体进行新陈代谢和生命活动的必要条件。
人体各部分温度有差异:肝脏温度
为38{〕左右’在全身各器官中最高;
脑产热量较多’温度接近38℃;
口腔
温度正常值为36.7~37.7℃;腋窝温度
的正常值为36~37.4cC。
研究结果表明’—般情况下’体温
的日节律同肌肉活动状态以及耗氧量等
没有因果关系’而是由_种内在的生物
节律所决定的。但肌肉活动时’由于代
谢增强’产热量增加,可导致体温升
高。此外’情绪激动、精神紧张、进食
等情况对体温都会产生影响°
体温的恒定由机体的产热和散热来
维持。体内营养物质代谢所释放的化学
能’其中50%以上以热能的形式用来维
持体温其余不足50%的化学能(自由
能)则载荷于ATP分子之中’经过转化
与利用最终也变成热能’并与维持体温
的热能—起’随血液循环传送到体表并
散发于体外。人体的主要散热部位是皮
肤°机体散热的方式主要有辐射`传
导、对流和蒸发四种。
36℃
32℃
表面
、
~
′
厂
~
日
∑
广
凹
▲
刁
尸
…
司
‖
‖
〗
人体不同部位的温度
/主霉…`……
[1]傅忠扬.人体的体温[J]生物学教
●
学’20ll(l):58.
●
●
■
●●●●●●●●●●■●■■■■■●●■●■●■■●●
●●●●●■●●●●■●
■
236
●
●
…^则″v√γ《幽′Ⅵ飞
第三篇稳态与调节
=≡====■■≡=======→==空=~====■■≈===】
热还是腻少敞热?
==←=■==■==…=←====→===■==~→===←≈=】
中图版高中生物教材必修3《稳态与
环境》中’关于人的体温调节机制图’
明确表示立毛肌收缩是为了增加产热°
立毛肌收缩的能量来源是ATP’在
消耗ATP时必然有些能量会以热能的形
式散失’从而增加产热’因此立毛肌收
缩会‘‘增加”产热’不过通过立毛肌
收缩增加的热量太少了’几乎可以忽
略不计°
对于鸟类或其他哺乳动物来说’立
毛肌收缩可以使毛羽竖起变得蓬松’可
以提高保温能力’也就是“减少”散
热°但人身上没有毛羽’通过这种方式
来减少散热几乎没有意义。
因此’对于身上无毛羽`不利用毛
羽来保温的人来说’寒冷时立毛肌收缩
意义不大°人的立毛肌只是进化过程中
保留下来的_种生理结构’对调节体温
已经没有什么意义了。
立毛肌
立毛肌示意图
∩主墓…`……………
●
[1]张_陶勇立毛肌收缩是增加产热还是减少散
●
热?—对中图版高中生物教科书“体温调节机
●
●
制图’’的讨论[J].中学生物教学’2013’5:72.
●
●
●
●
●●
●
●●●●■●●●●●●●●●●●●●●■●■叮■■■■U■●■=■≡==
237
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
■
~
|‖□高中生物疑点通
人体主要通过调节体内生理过程来维持比较稳定的体温’但这不是体温调节的唯_
方式’体温的调节方式还有行为性调节’作为生理性调节的补充’通过人体有意识地改
变行为活动来调节机体的产热和散热方式’如根据环境温度变化而增减衣物等。
人体体温的相对恒定’是机体产热量和散热虽保持动态平衡的结果’所以在寒冷环境中
机体产热多’散热也多°机体的散热方式分为生理散热和物理散热两种°皮肤是人体的主要散
热器官。皮肤可以通过辐射`传导和对流等物理散热方式直接散热’其散失热量的多少’主要
取决于皮肤和环境之间的温差。在寒冷环境中’皮肤毛细Ⅲ管收缩’以减少皮肤的Ⅲ流量’从
而使皮肤的散热虽减少’这
效应器
—散热过程属于生理散热。
在寒冷环境中’通过机体的
调节’由生理散热散失的热
量减少,但由于外界环境温
度较低’通过机体的直接散
热变得非常容易’而且也散
失了大量的热量’这时人感
觉到冷就是散热速度快`散
糯
”暴劲建怨
…
曾蝉5
|兰挫
/瞻腾;
感受器
内部状态改变
撬奎—~
发生负反馈调节,然
∏
鱼圃
控制中枢
了汤
\J■
]7℃调定点
后恢复到正常体温
铲
将信息
控制中
(
卷
常体温
控制中枢
√眨
`铝j`
]7◎C调定点
定点
信息
至控
中枢
受器
嚣
发生
滤\ˉ镭芽
内部状态改变
传送对
的反应
血管舒张;汗腺分泌
觉多‖冷就是散热迷皮快、散
体温调节过程示意图
热虽多的表现。
人体处于寒冷环境中时’骨酪肌会发生节律性收缩产生大量热量’骨酪肌的这种战
栗是受下丘脑支配的。在寒冷环境中’寒冷刺激了皮肤的冷觉感受器’冷觉感受器产生
兴奋并将兴奋传至下丘脑’再经传出神经支配骨酪肌收缩。
肾上腺素和甲状腺激素是直接参与人体体温调节的最重要激素。当人体处于寒冷的
环境中时’肾上腺素分泌增加’糖的分解加快’人体产热量增加°人体若长期处于寒冷
的环境中’则通过增〗‖甲状腺激素的分泌来提高
基础代谢率(在单位时间内维持清醒状态的生命
活动所需的最低能量)
,
由其产生的能量绝大部
分用于维持心脏`肾脏、肝脏和脑等内脏器官的
生命活动。
)主要参考文献
|……
[l|刘红.人的体温及其调节[J]
生物学教学’20l2’9:8()·
●
●
■●
●●■●■●●●●●■■■●●●●●■●■●●●●●●●
●
23J
~
●
●
●
●
G
大
神经系统控制—
总产热量=总
的′
散热量’
持佰定。
才能使体温保
/
)\
对体温升高的反应
释放的热量
/
对体温下降的反应
{
汗腺受刺激释放
汗液,汗液在皮
肤表面蒸发,蒸
发带走热沮{使
身体冷却
真皮扩张血
管释放热
体温调节过程示意图
在炎热环境中’体温处于动态平衡’如不考虑传导与对流散热’则意味着生理产热=
生理散热+辐射散热。
进人寒冷环境后’生理产热增加’辐射散热也增加’并且辐射散热增加幅度较大’
而下丘脑则通过减少生理散热’使人体总的散热量与产热量处于动态平衡状态’维持体
温的相对恒定。
所以’
由炎热环境进人寒冷环境时,散热减少是指生理散热减少’实际上总的散热
量与产热量都是增加的。
人体的总产热量和总散热量保持动态平衡’才能使体温保持恒定。即便持续高烧39℃’
239
D●●●
■●●●●0
o●●●
●●●●●●□
●◆●●●0
●●●●●·
■
●
●
●
●
·
●
●
●
●
●
合
●
●
●
●
●
◆
●
●
●
●
|‖□高中生物疑点通
产热量仍等于热散量。体温调节中枢与体温调
定点学说可以来解释其中的原因。
下丘脑是调节体温的基本中枢。来自各
方面的温度变化信息在下丘脑的PO/AH区整合
后’发出的信息经下列生理途径调节体温:
通过交感神经系统控制皮肤Ⅲ管收缩反应和
汗腺分泌’影‖问散热过程;
通过躯体运动神
0∧
巳
▲
了
日
‖
β
○
□
○
斗
了
·
○
了
◎
日
β
巳
▲
日
$
刮
‖
◎
β
{
‖
《
‖
《
‖
■
□
‖
刽
‖
△
■
■
《
‖
○
坦
氟
夜
名
召
疆
假
剿
埠
-正常情况下神经元放电\
==致热源作用下神经元放电\
≡
0
35
36
37
38
39
4O
什脉甸降泌,彭‖|叫献热辽性;
扭皿月|M伞还功仲
下丘脑温度/℃
经改变骨酪肌活动(如肌紧张、寒颤等)
;
P○/AH区热敏神经元与冷敏神经元的
单位放电频率对局部脑温变化的半对数曲线通过甲状腺和肾上腺髓质分泌活动的改变来
A冷敏神经元B.热敏神经元
调节代谢性产热过程。
体温调定点学说认为’体温的调节类似于恒温器的调节’
由PO/AH区热敏神经元和
冷敏神经元共同活动(放电频率相等时)设定了—个调定点’如37℃°PO/AH区体温整
合中枢就是按照这个调定点来调节体温的。如果体温恰好在该调定点水平’此时机体的
散热量和产热量相等;
如果体温超过该调定点’热敏神经元发放冲动频率增多’首先发
动散热机制’散热加快’使散热量大于产热量,直到体温恢复到调定点水平;
如果体温
低于该调定点,冷敏神经元发放冲动频率增多,首先减弱散热机制’使散热量减少’体
温升高’如体温仍不能达到调定点水平’再继续发动产热机制’产热加快’减少散热量
增加产热量直到体温达到调定点水平。
调定点学说认为’由细菌感染引起的发热’是由于在致热原的作用下PO/AH区热敏神
经元的温度反应|司值升高’而冷敏神经元的|阂值则下降,决定这两种神经元放电频率相等
的温度值上移’即调定点上移(如上移到39℃’如图所示’注意热敏神经元与冷敏神经
元放电曲线的交点所对应的下丘脑温度)。因此’当体温没有达到新的调定点(39℃)
之前’冷敏神经元发放冲动的频率继续增多’主观感觉冷’先是减少散热量(皮肤血管收
缩)’但仅靠减少散热仍不能使体温达到新的调定点水平’于是发动骨酪肌寒颤产热’使
0
叫
产热量大大增加’直到体温升高到39℃以上时才出现
}奎霍…`=`
散热反应。只要致热因素不消除’产热和散热过程就继
散热反应。只要致热因素不消除’产热和散热过程就继
续在此新的体温调定点水平上保持平衡’这就是说’发
热时体温调节功能并无障碍’而只是由于调定点上移’
体温才升高到发热的水平的。当高温高湿天气机体中暑
时’主要是不能及时散热’使体内热量积蓄导致的。
●
■
二一
[1]朱宁波.体温调节中产
:
●
●
●
热和散热的分析[J].生
‖
物学教学,2016,8:69.
●●●●●●●●●●●●●■●●●●■●●●●●●●●●●●●●■●
匹
240
●
●
◆
●
●
●
●
●
●
◆
●
◆
●
●
●
●
●
●
导
●
●
●
■
■
●
●
GG
G
GG
GG
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
甚越洲
在高热环境`剧烈运动等情况下’如果体内产生的热虽不能及时散发出去’将引起
体温升高。体温高于40℃称为体温过高。人的体温高于4l℃时将引起中枢神经系统活动
障碍’出现说胡话`神志不清等症状;超过43℃时就会有生命危险°—般认为人的致死
体温为45.5℃’这可能与蛋白质在45~50℃之间开始发生非可逆变性有关。
体温持续地高于正常水平’称为发热(fever)。发热的原因很多’有感染`组织损
伤`内分泌失调、免疫异常、恶性肿瘤、毒物和药物作用等,其中以感染引起的发热最为
常见。
发热对病人有益还是有害呢?长期以来人们在不断研
究探讨这个问题。有人认为发热是人体抵抗和消除病菌的—
种防御反应;也有人认为体温升高会给人体带来许多不良影
响。若高热持续过久’可使人体内各器官`组织的调节功能
失常’从而危害身体健康。
~
↑.益处
目前医学研究证实发热是许多疾病初期的_种防御反应’可增强机体的抗感染能
力’例如使对抗细菌的抗体产生增加;增强人体白细胞内消除毒素的酶活力及肝脏对毒
素的解毒作用等’从而抵抗—些致病微生物对人体的侵袭,并促进人体恢复健康。
2害处
(1)发热使人体食人的各种营养物质在体内的代谢增强、增快’从而大大增加了机
体对氧的消耗’加重人体内器官的工作负荷’严重时可导致器官功能衰竭°
(2)发热时’人体产生热量过多’机体必须加速散热’以尽可能调整体温’从而导
致心率增快’加重心脏负担。
(3)高热还可影响人体消化功能。有时胃肠道运动
缓慢’病人出现食欲不振`腹胀`便秘;有时胃肠道运
动增强’病人出现腹泻甚至脱水°
(4)持续高热最终导致人体防御疾病的能力下
降’这样不但不利于疾病恢复’反而增加了继发其他感
染的风险。
24′
主=考文献‖…`
~
[l]王盼’左明雪.人体及动
物生理学[M]2nded北
京:高等教育出版社,
2()()1:325—329。
●
●
●
●
●●●凸●●●●●●●■●●●■宇●●●●●●●●●●■
●
●●●●●●
田●o■●O●●
Q●
●
■
●
●
●
●
■
●
■
■
●
●
●
●
●
●
●
●
■
■
●
●
●
●
●
仍
●
●
●
G
G
|‖□高中生物疑点通
■
■
』
=→■■■□=■■■■==■■==■■■■■■■■■■■■■■■■■■
0■■≡■■≡■=罕==■■■■■■■■■■■■■■=■■=→≈■■=■■■■■■■■■■■■■■≈■■■■■■■■■■=■■■■■
炎热师境下体温维摘稳态有无激素调节?
==≈二■=哼≡=~■■=←■■■字≈■■≈■=■■=■■=■=≡■■■≈→≈=≈■■■=■■■=■■===■■■■≈≈===~■==→~乙=■■■■■■■■
p=霉膨……}
下
)
位干皮肤`下丘脑及
其他器宫的温度感受
慰{
器感知温度
温度过高
■
■
■
≤体温下降
←
体温上升
~
正常体温
‖
温度过低
.战栗
.血管收缩
.行为调节
舔加衣物等)
位于皮肤`下丘脑及
其他器宫的温度感受
器感知温度
下丘脑启动产热机制
体温调节过程示意图
苏教版高中生物教材必修3《稳态与环境》第l2页写道:
“在炎热环
境中’皮肤里的温觉感受器接受刺激’也将兴奋传至下丘脑体温调节中
枢°通过神经-体液调节’皮肤血管舒张’Ⅲ流量增多’散热量增加;汗
腺分泌增多’汗液的蒸发带走更多的热量;
甲状腺、肾上腺等分泌的激
素量减少’降低了细胞的代谢水平’引起机体细胞产热量减少°人体就
是这样通过神经系统和内分泌系统等的调节来维持体温相对恒定的。
′’
242
●●
●G●●
●●●G●
●●●●●
●●●■●
●●●●●●
●
●
■
◆
●
●
●
●
仍
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
伯
●
●
●
●
●
●
●
●
■
々
p
肿
`毗腕
翻
第三篇稳态与调节
■
在炎热环境中’机体能否降低甲状腺激素等有关激素的分
泌量’从而使机体产热量下降?答案是肯定的。
受基础代谢率的制约’机体甲状腺激素的分泌呈会相对降
低’但不会大幅下降。因此’炎热环境中机体靠限制产热’增
加散热来维持体温恒定’散热量的调整应占有主要地位°即炎
热环境中的体温调节以神经调节为主’但也有激素调节°
动物最主要和最直接参与体温调节的激素是甲状腺激素和
肾上腺素’二者分别通过甲状腺和肾上腺髓质分泌活动的改
变来调节代谢产热过程。若动物长期处于热紧张状态’会通过
降低甲状腺的功能’使基础代谢下降’此时动物摄食量下降`
嗜睡’以此减少产热。由此可以得出,在高温环境中’
甲状腺
激素等激素还是参与体温调节的’通过分泌量的减少来减少产
热°因此在高温环境中’机体—方面通过神经调节以增加散
热’另_方面通过减少甲状腺激素等激素的分泌量以减少产
热’二者共同维持体温的相对平衡°
因此’在高温环境下’散热的调节方式以神经调节为主’
再辅以体液调节。
」室要…]
●●■●●●●●●■●●●●■●●●●●●●●●
●●●●
●
■
[1]王爱义.炎热环境中的体温调节有无体液调节[J]
生物学教学’2010’4:39
●
●
●
●
曹志发.在炎热环境中运动时的体温调节[J]徐州
[2]
师范学院学报:自然科学版’1985:109—116.
[3]杨秀平.动物生理学[M]北京:高等教育出版社
●
●
●
●
◆
■
■
■
■
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
弓
q■
‖ ■●●■●●●●●●■●●●●●●●■●●●●●●●
243
°
·
●
●
●
■
■
●
●
●
●
台
●
●
●
●
●
●
▲
●
●
●
◆
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
吩
●
●
●
●
●
●
●
◆
●
●
■
●
■
●
●
●
◆
■
■
■
■
田
■
钟
心
■
■
●
●
●
◆
●
●
●
●
◆
●
■
●
■
●
●
伯
●
印
巾
"MMⅧ啊√√、^酸′砸Ⅷ吻√√`^扒哪韧√…
|‖□高中生物疑点通
·
5
o溶菌酶水解肤聚糖
肤聚糖
细胞质膜
原来的杆状
杆菌
◎在低渗环境,
水迅速进入
细胞
>
●
@内部的压力导
致细胞裂解
溶菌酶的作用机理
溶菌酶又称胞壁质酶或Ⅳ-乙酷胞壁质聚糖水解酶’
是_种能水解致病菌中黍占多糖的碱性酶°它主要通过破坏
细菌细胞壁中的肤聚糖』V≡乙酚氨基葡糖和Ⅳˉ乙酷胞壁酸
之间的β(1→4)糖昔键’使细胞壁不溶性黍占多糖分解成可
溶性糖肤’导致细胞壁破裂’内容物流出而使细菌溶解。
溶菌酶还可与带负电荷的病毒蛋白直接结合’与DNA`
RNA`脱辅基蛋白形成复盐’使病毒失活。因此’该酶具
有杀菌`抗病毒等作用°
溶菌酶广泛分布在人体的体液和肝、肾、淋巴组织
等处。人的泪腺`唾液腺`乳腺和呼吸道黍占膜均可分泌
溶菌酶’吞噬细胞的溶酶体也可释放溶菌酶。此外’动
物组织中也有溶菌酶’以鸡蛋清中含呈最多’其他植物
组织及微生物细胞中也存在。
2“
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
p
●
●
凸
G
G
b
魁l′Ⅵ`
飞
、
℃
h
乞
」
』
伪
第三篇稳态与调节
~
溶菌酶可参与机体的多种免疫反应’改善和增强巨噬细胞
的吞噬消化功能’激活其他白细胞的吞噬功能’从而增强机体
的抵抗能力。另外,它对维持肠道内菌群的平衡、防止肠炎和
变态反应也有重要作用。
溶菌酶是—种无毒`无副作用的蛋白质’所以广泛用于抗
菌`抗病毒、抗肿瘤细胞、消炎`消肿等方面°其中Aegis溶菌
酶被喻为后抗生素时代的开创者。
目前’在食品加工工业中’
溶菌酶已成为新型食品添加剂’发挥防腐保鲜的功效’甚至在
基因工程`细胞工程中’溶菌酶也是必不可少的工具酶’用于
制备细菌原生质体。
|主要参考文献]。ˉ.…….…………………………
●●●
[1]苗茵辨析‘‘溶酶体’’和“溶菌酶’’[J].生物学教学’2012(7):78.
[2]郑国铝细胞生物学[M]北京:高等教育出版社’1992:275—276.
[3]翟中和,王喜忠丁明孝细胞生物学[M]北京高等教育出版社,
2000:183—187·
[4]韩贴仁分子细胞生物学[M].北京高等教育出版社’1994:99—201.
[5]陈燕’江明峰’叶煌辉等溶菌酶的研究进展[J].生物学杂志’
2009,26(4):64_66.
●
●
●
●
●
●
■
●
●
●
●
●
■
●
●
●
●
●
GG
●巴●●●●●●●●●●●●■●●●●■●●●●■●●●●●●■●●●●●●■●Q●●●●●
●●●●■●●●●●●●●●●●●●■●●●●
245
●
●
■
●
●
●
●
●
●
凹
●
●
◆
●
●
●
●
●
G
●
●
■
●
●
●
●
●
◆
●
●
凸
●
●
●
●
GG
●
●
●
●
●
●
●
●
■
●
●
"沁^u′∏
|‖□高中生物疑点通=
(MHC)的分子标志’它是
人体的全部细胞的细胞膜上都有主要组织相容性复合体
_种特异的糖蛋白分子’是在胚胎发育过程中产生的。
每_个人的MHC都
是不同的’而个人的免疫
系统能认识这些自身细胞
的身份标签’在正常情况
下不会攻击带有这些标签
的自身细胞。病毒、病菌
和其他的致病因子在其表
面也带有表明它们特殊身
份的分子标志°
当—个人侵者所携带
的“非己”标志被识别
后’ B淋巴细胞和T淋巴
细胞受到刺激’便开始反
复分裂’同时分化成为不
同的群体’以不同的方式
对人侵者做出反应。一部
分成为效应细胞与人侵者
作战并将其消灭掉;另_
部分分化成为记忆细胞进
人静止期’待以后对同_
类型的人侵者的再次人侵
做出快速反应。
抗原
|
」
问
』
∩
妇
(b)外来的微生物
(a)体细胞
的抗原
(c)抗原呈递细胞
MHC蛋白及作用
●●●●
)主要参考文献
[1]梁愈.高中生物学
‘‘识别’,机制集录[J]
学’2011 (12):63—64`
知识中的
生物学教
●
●
■
●
■
●
●
■
●
●
●
■
●
田
●
●
●
■
■
■
■
■
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
246
◇
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
■
■
■
●
●
●
●
●
●
●
●
●
严
}比
第三篇稳态与调节
0■■■■===≈■■』■■■乙=■■=空■■==■=≡≈=■■■=乙===■■==■■■■■=■■■
■■■■■■■■■■■≈=≈→…■■
绷胞激活都
要T绷胞协肋蚂?
■■=■■=■■■■■■==■■■■■■■■■■■乙二==■■■■=■■■■=■■■■■■■■■~■】■=■■■■■■==■■■■~=■■==■=
根据诱生抗体时是否需要T细胞参与’可将抗原分为两类’即胸腺依赖性抗原和非胸
腺依赖性抗原。
(
|)胸腺依赖性抗原(丁D抗原)
绝大多数蛋白质抗原如病原微生物`大分
子化合物`Ⅲ清蛋白等刺激B细胞产生抗体时’必须依赖T细胞的辅助,称TD抗原’又
称T细胞依赖性抗原。先天胸腺缺陷和后天T细胞功能缺陷的个体’ TD抗原诱导机体产生
抗体的能力会明显低下°
(2)非胸腺依赖性抗原(丁|抗原)
某些抗原刺激机体产生抗体时无需T细胞
的辅助’称TI抗原’又称非T细胞依赖性抗原’如细菌脂多糖`肺炎双球菌荚膜多糖`聚
合鞭毛素等。
胸腺依赖性抗原与非胸腺依赖性抗原的比较
|
胸腺依赖性抗原(TD抗原)
可溶性蛋白或完整的细胞`病毒、寄生虫等
蛋白质及其衍生物
结构复杂’有多种不同的表位
非胸腺依赖性抗原(TI抗原)
荚膜多糖、脂多糖及聚合鞭毛素等
抗原种类
化学组成
多糖等
结构简单,有重复表位
化学结构
激活B细胞产生抗体无需APC细胞和T
细胞辅助
激活B细胞产生抗体需APC细胞和T细胞辅助
免疫应答
可引发细胞免疫和体液免疫
|
只引发体液免疫
不产生记忆细胞
●●G●●●●■●●●●●●
)主要参考文献
|…·…
|
[1]秦超勇.B淋巴细胞的激活[J
学’2()17’
]:63—64ˉ
[2]朱立平.人B淋巴细胞的激活
化[J].中国免疫学杂志’1985’1
[3]曹雪涛.医学免疫学[M]6版.」
生出版社’2013.
淋巴细胞的激活[J
人B淋巴细胞的激活
]生物学教
●
●
`』增殖与分
55—59.
b京:人民卫
B细胞
(b)TI抗原
(a)TD抗原
飞
′
●
两种类型的抗原
●
●$●●●●●●●●●●●●●●●●●●●●●●●●●●●●●
●●●■●●●●●●●●●G■G●■
■
207
●
●
■
■
妒
■
●
●
●
●
●
◆
◆
●
●
|‖口高中生物疑点通
■
西
≈■=======■■=■■=■■==■=■~=■■=======■■======■=■=■=====≈■~宇====■■■■====■=■■■===
液免疫巾的多数抗卿‖少数抓膘的含×是什么?
=======●=====■=■■=■====宇=→≈=→=≈======■■=■■=====■===■己■=■■~=■==■■=■===■■=□■
现行人教版高
中生物必修3《稳态
与环境》第37页提
到:
‘‘大多数病原
体经过吞噬细胞的
摄取和处理’暴露
皿
叹
抗
原
与
杭
体
结
合
抗
激
辅助性丁细胞
体液免疫过程示意图
什|这种病原体所特
有的抗原`将抗原
传递给T细胞……少数抗原直接刺激B细胞……” 。这里“大多数”和“少数’’是什么意思?
第_种观点:
‘·大多数,’和‘‘少数”是不同抗原中的大多数种类和少数种类°大多
数抗原指胸腺依赖性抗原(TD)’其过程需要APC细胞将病原体内吞`处理和呈递’变
成Th细胞能够识别的抗原肤。
第二种观点:
“少数抗原,’是指同—种抗原的少数°这是从B细胞的活化需要双信
号刺激的角度来考虑的。第_信号是抗原本身(或抗原所引起的非特异性免疫产物)直
接刺激B细胞表面的抗原受体’第二信号是Th2细胞提供的活化信号’并依赖所分泌的淋
巴因子的协同作用。
自然界大多数抗原属于胸腺依赖性抗原’教材中所说‘‘大多数抗原,’应为该种抗
原’毕竟高中课程很大程度上需要强调—般规律的学习°从教材中体液免疫示意图看’
应该是支持第二种观点。如果按照第_种观点’应该分2个过程来表示’囚为少数种类的
抗原(胸腺非依赖性抗原)能直接刺激B细胞’但不生成记忆细胞。按照第二种观点’
大多数抗原隐藏在病原体内部’需要吞噬细胞
「主≡硼
处理才能被识别’少数抗原是位于病原体表面
处理才能被识别’少数抗原是位于病原体表面
的抗原决定簇’直接刺激B细胞。双信号作用
下既能产生抗体’也能产生记忆应答。
●●●●●●●●●●●
{门泡荐莹关丁…
免疫学知识「∏|题|J|
学2()()8’]|:75—76
●●●●●●●●●●●●●
●
●
●
●
●
●
●
●
■
●
■
●
●
■
■
●
吁
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
24J
第≡篇稳态与调节
■
∏
■■■■■■■■■■■■■■■■■■■■■→■==■■~■■■■■■■■==■■=■■■■■■■■■■■=■■=■■=
■■=■■■■■■字
■■■===
■■=■==■■■■===■■■■■■■■
敝淋巴困子的是T绷胞还是敝碰T绷胞?
=≈==■■■■■■■■■■■■=←■=→■■==0■■=■■■=■■■■■===≈=■■■■=】■■■■=■=
≡
=■■=■■≡■■■=■■■■■■■■■
…=…=■■■■■≡■■■■■■===
在现行人教版高中生物学教材中是这样描述体液免疫的: “大多数病原体进人人体
内经过吞噬细胞的摄取和处理.使抗原决定簇暴露于抗原的表面’并将抗原呈递给T细
胞’刺激T细胞分泌淋巴因子。”而2010的全国高考卷中有试题提到: “效应T细胞可以释
放淋巴因子。’’那么,释放淋巴因子的‘‘T细胞”和‘‘效应T细胞”是否是—回事呢?类
似地’人教版教材的体液免疫示意图中标有‘‘T细胞” ,该“T细胞’与细胞免疫示意图
中的‘效应T细胞’,是同_种T细胞吗?
首先’需要了解T细胞的来源及分类’ T细胞在胚胎期来自肝或卵黄襄’在成体时期
来自骨髓的造Ⅲ干细胞。T细胞需要在胸腺中分化和成熟’因此称为胸腺依赖淋巴细胞
(thymus-dependentlymphocytes)’简称T细胞°成熟的T细胞离开胸腺’进人外周免疫
器官(淋巴结`脾脏等)和外周Ⅲ’在那里定居并行使免疫功能。
T细胞并不是均_的群体’ T细胞包括调节T细胞`效应T细胞和记忆T细胞等°根据
T细胞的功能,可将增殖分化的效应T细胞分成若干亚群’以下是几个主要的亚群。
辅助T细胞分泌淋巴因子
249
硼v`u′v…
|‖□高中生物疑点逾
(l)辅助性T细胞(Th)’可进—步分为Thl和Th2两种类型’是
调控免疫应答的重要细胞’其中Thl主要介导细胞免疫’ Th2主要介导体
液免疫°
(2)细胞毒性T细胞(T℃)’是介导细胞免疫的主要效应细胞。
(3)抑制性T细胞(Ts)’为—负调节性细胞,抑制免疫应答’可
抑制Th`Tc和B细胞的功能。
淋巴因子是指由淋巴细胞经刺激而合成并分泌的_类生物活性分
子’是细胞因子的_种。它们介导细胞之间的信息交换与相互调节’参
与免疫应答和炎症反应过程。T细胞产生的细胞因子主要有白细胞介素
(ILˉ2、ILˉ4`IL—5`IL-6、ILˉl0`IL-2]等)`肿瘤坏死因子`干扰
素等°其中ILˉ2`IL—l0等能促进B细胞的增殖; IL—2l能刺激T细胞、B
细胞和NK细胞的增殖和分化°
综上可知’教材在抗原呈递过程中提及的能够产生淋巴因子的T细
胞是辅助性T细胞’它活化的信号是:病原体通过抗原呈递细胞摄取并
在细胞内加工处理’暴露出特定的抗原分子。细胞免疫过程使靶细胞裂
解的效应T细胞实际是杀伤性T细胞’它活化的信号必须有两个—病原
体侵人的靶细胞表面显示的抗原信号和辅助性T细胞产生的淋巴因子。
|主要…`一………………
|l|蒋忠民解析‘免疫调节’,的几个疑问|J|ˉ生物学教学’2()15(9):80—81.
[2]胡玉佳.现代生物学[M]北京:高等教育出版社’l999:29]一295.
[3]朱立祥“人体的免疫调节’’的教学组织[J].生物学通报’201()’45(5):2
●●●●●●●●●●●●●●●
●
l—25
|4]斯坦菲尔德科洛麦卡诺分子和细胞生物学[M]姜招峰邱蓉’吴茵’译.北京:科
学出版社’2()02:284.
[5|刘欣顾咏梅高中生物学‘‘免疫’,教学难点解析[J]生物学教学’2()11
[6]陈守良.动物生理学[M].4版北京:北京大学出版社’2()12:389—390.
’36(4):67—68
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
■
●
●
●
●
●
■
●
■
●
●
●
●
●
●
回
●
●
■
■
■
●
●
●
●
白
●
●
◇
●
●
■
●
●
●
●
●
●
■
■
●
●
■
●
■
■
■
■
●
●
■
●
●
●
●
●
●
●
●
●
●
●
■
●
●
■
250
●
●
●
们
●
●
●
憎
◆
●
毋
●
●
●
秒
●
仕
●
〃``』帜
…
矿
蹦
第=篇稳态与调节
0
■■■■■■■■■■====■■■==■■=■■■■■=≈0■■■≈==≈■■≡=≈■■■~■■■=■■■
0■■≡≡l■p
能否呈递抓愿给B绷晌?
~■■■■■■←■■≈=■■
■■■=』■■=~■■=■■■■
■■■■■■■■=■■■■■■■■■=■■■■■■■■■■~=■■■■■■~→
铜‖囚Ⅲ口T固|
|
■
川
已
~
~
~
~
了
卜
』
‖
抗原呈递示意图
巨噬细胞
印
~
惋
■
吟
辅助性丁[淋巴]细胞
Ⅶ
‖
口
^
◎
|
巨噬细胞呈递抗原
能呈递抗原的细胞即抗原呈递细胞(APC)’是指能够加工`处理抗原并将抗原信
息呈递给其他淋巴细胞的_类细胞’在机体免疫识别`免疫应答中起重要的作用°APC
可分为两大类:_类是专职性APC’具有显著的抗原摄取、加工`处理与呈递功能’包
括树突状细胞`单核细胞`巨噬细胞`B淋巴细胞;另_类是非专职性APC’包括内皮
25′
●
$
●
●
●
■
●
白
●
◆
■
吐
佣
●
●
■
职
‖
●
●
曲
心
伯
巴
●
●
■
■
●
●
●
●
●
心
●
●
●
◆
◆
■
●
●
●
◆
◆
鹏
"
、$础
、
|‖口高中生物疑点通
细胞`成纤维细胞、上皮细胞、间皮细胞`嗜酸性粒细胞等。由此可以看出’ T细胞没
有呈递抗原的功能’而B细胞在介导体液免疫的同时还具有呈递抗原的作用。
从B细胞活化途径考虑’抗原与B细胞表面受体BCR直接结合(第—信号)
’ T细胞
活化成Th2细胞’ Th2细胞生成配体CD40L与B细胞表面受体结合(第二信号)’在Th2分
泌的淋巴因子的协同作用下’
B细胞被活化。
由上可见’ T细胞需要B细胞提供的MHCI类分子复合物作为其活化的第_信号’
这是由于T细胞具有MHC约束性’ T细胞只能识别由B细胞或其他APC加工`MHC分子呈
递的抗原肤’活化的T细胞不是直接呈递抗原’而是产生分子信号(表面分子发生了变
化)’进—步刺激B细胞的分化和发育’完成体液免疫。在免疫应答过程中, T细胞、B
细胞之
‖类抗原
∏类M川C
丁细胞
CD4或CD8
有核细胞呈递抗原
∏
』
GGIGG
GIGGGGGGGGGGGGGGGGGNGGGGGG
‖主要参考文献
[1]李飞正确理解B细胞与T细胞的木‖互作用[J].生物学
●
●
●
教学’2()]1(3):66—67.
[2]金伯泉’熊思东.医学免疫学[M].北京:人
社’2008:l27—l29`
[3]汤雪明.医学细胞生物学「M]北京
社’2()〔)4:543—544,525—52Q
京:人民卫生出版
科学出版
●
●
●
●
●
●
●
●
●
●
G
[4]于善谦’王洪海’朱乃硕等.免疫学导论[M]北〕
等教育出版社施普林格出版社y2()()4:]73_]74
免疫学导论[M]北京:高
●■●●●●●●●●●●◆●●●●●●●●●●●●●●●■●●●●●●■●●●■●●●●●●●●●●●●●●●●●●●●
●
●
252
●
●
●
●
■
■
伯
碎
●
抑
人体中抗体种类至少有l0||种’远超过基因种类数。因此’抗体多样性并不是简单的
}门基|大|选择性表达导致的。抗体多样性的形成机制有两个:
—是B细胞在发育过程中’决定抗体可变区的基因发生DNA重排°抗体轻链可变区
基因包含V基因片段和J基因片段’两者都有多个不同的拷贝’ B细胞发育过程中’随机
选择V`J各_个拷贝连接成编码可变区的外显子’而且在连接过程中’连接片段之间会
被酶切去或添加若
γ2
γ』
∧4…蜒=一丛」2=|Ⅱ」纠上内含子
c
ˉ.γlˉ…ˉ ˉ-
-一
/i〈■
ˉˉ舅ˉ≡≡≡℃—0
v芍r宁■
「核什酸’这个过
程叫作VJ重排。重
--■~
链可变区基因在V和
功能基因
|』酱,
J基因片段之间’还
V]
」3
内含子
〔
有D基因片段’会发
前体帜"∧转录5』…
三
■
~
3
γ3
生VDJ重排。DNA
里排’再加上轻链
袱"A
5
与重链有多种可能
的组合’就能产生
蛋白履
多种抗体。
↓翻″
‖
|肚…坠
!
』
』
」坠
`==
——
可变区
恒定区
二是活化的B细
抗体分子
抗体表达示意图
胞会发生体细胞高
频突变’进_步增加抗体多样性。B细胞活化后,每次细胞分裂中’V区基因每l00()个
碱基对中会有l对发生改变’远高于其他体细胞的DNA突变频率(每次分裂中每l0|0个碱
基对中有l对发生改变)。V区基因大约含360个碱基对’因此每次分裂形成的2个B细胞
中就有l个发生抗原受体(即抗体)突变。突变会
彰)重=瞒`……=
※响瞬帅』…"畦」』那峰…与揽腻*
■
示■
·
1一=≡丁口么坚而/.f而∏户什^′.【b『P/△飞乏【户舟→++′0
[◇么归‖石∏〗‖
/\
b」‖工『一
和力更强的B细胞会继续增殖’其他的则会凋亡。
T细胞活化后不会发生高频突变’因此其抗原
受体多样性只取决于DNA重排。
二一
●
[l]刘欣’顾咏悔高中1
●
疫’’教学难点解析[J]
学’2()l](4):67—69
●
●
高中生物学‘‘免
生物学教
●
●
●
●
■
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
■
■
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
253
GG
G
GG
GG
I
GGG
G
GGGG
℃
‖·高中生物疑点通
■
r
■■■■=
■■■■■■
↑.移植排斥的免疫学墓础
同种异体器官移植后’由于供、受者之间的组织相容性抗原不同’它们可以刺激相
互的免疫系统’ 弓|起宿主抗移植物或移植物抗宿主的移植排斥。在实体器官移植中’移
植物中完整的活细胞`脱落的细胞或由于移植前灌洗不彻底而残留在器官中的淋巴细胞
(又称过客淋巴细胞passengerlymphocyte)都可以是启发免疫应答的抗原°移植抗原
诱发的细胞免疫和体液免疫应答都参与排斥过程。
2移植排斥反应分为宿主抗移植物反应和移植物抗宿主反应
(
|)宿主抗移植物反应
~
~
↑ˉ供体肾脏
在进行同种移植后’移植抗原
(即组织相容性抗原)可刺激受体的
免疫系统发生免疫应答’通过细胞免
疫和体液免疫的共同作用(_般以细
胞免疫为主)使移植物受损’称为宿
主抗移植物反应。可表现为以下几种
类型:o急性排斥反应;@超急排
斥反应;o慢性排斥反应;@加速
~
~
5ˉ连接血管
\
4。为新肾脏腾出空间
6=连接输尿管
如何进行肾脏移植
排斥反应。
(2)移植物抗宿主反应
移植物中的免疫活性细胞针对宿主体内组织相容性抗原发生免疫应答’其结果使宿
主受损’称为移植物抗宿主反应。
≡…
[1]刘年万.移植免疫简介[
学通报’1996(6):23—24
移植免疫简介[
上述资料说明’在器官移植时的排斥反
应’既有细胞免疫’又有体液免疫’但以细胞
免疫为主。
●●●●●●●
●
J].生物
●●●●●
●●●●●●●●●●●●●■■●■●●●●■●■=
●
254
●
●
●
●●矽
叭
′戚罐
i
′
7=午
1
`
少√
翻
A
第三篇稳态与调节
≡
■
尸
《植物生理学》指出:
“荷兰的F.Kogl (l934年)等从玉米油、根霉`麦芽等分离
和纯化刺激生长的物质,经鉴定是‖;|垛—3ˉ乙酸(indole—3-aceticacid’ IAA)’其分子
式为Cl0H9O2N’相对分子质量为l75.l9。这个工作大大推动了植物激素研究的发展。IAA
是生长素类中最主要的—种植物激素。
现已证明,除了IAA以外’植物体内还有其他生长素类物质。例如’苯乙酸
(phenylaceticacid’ PAA)存在于—些作物如番茄`烟草等中’
4-氯_∩引|跺ˉ3ˉ乙酸
(4ˉchloroˉ3—indoleaceticacld’ 4ˉCl-IAA)存在于豌豆`山熏豆等未成熟种子中’
叼|
垛ˉ3—丁酸(indole-3ˉbutyricacid’ IBA)也是植物的内源生长素类物质。
”
《植物生理学》指出: “在20世纪30年代中叶’人们确定生长素是∩;|垛ˉ3—乙酸
(jndoleˉ3ˉaceticacid’ IAA)。后来又在高等植物中发现了其他几种生长素’但IAA是
到目前为止含量最丰富`生理作用最重要的生长素。
”
可
0|
…ˉ…
O‖2_000‖
C叮
‖
‖
‖引跺ˉ3ˉ乙酸
(|∧∧)
4ˉ氯—〗引跺ˉ3—乙酸
(4-0|-|∧A)
‖;|垛-3-丁酸
(|B∧)
●●●●●●●●●●●●●●●●●●●●●●
)主要参考文献
}…….
[1]潘瑞炽.植物生理学[M].7版·」
社2()12.
[2]泰兹’奇格尔.植物生物学[M]
译.5版.北京:科学出版社’2015,
b京:高等教育出版
●
●
宋纯鹏王学路等
●
●
●
G
IG
GG
I
GGGGGGGGGGGGGGGIGGGGGGGGIGIGGGGGGGGGI
25J
●
●
●
●
●
◆
●
●
●
●
●
■
●
●
●
●
●
●
■
G
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
■
●
●
●
●
■
●
●
●
●
●
●
●
■
●
●
|‖■高中生物疑点通
背光|贝||
生长素多
■
r
F
』
·‖』
乡
向光(则
生长素少
细胞壁
元
一望
盯p
‖
『p
|
‖十■
』!0
/
/
∧『p
素-△
受体
∧『p
}{
生长素作用机理
‖
≈一
根据大家公认的酸生长假说(acidgrowthhypothesis)’氢离子介导生
长素对细胞壁松弛的作用。氢离子来源于细胞质膜H+ˉATPase’人们认为生
长素增强细胞质膜H+ˉATPase的活性。酸生长假说有下面5个主要预测:
(
l )如果磨损表皮使氢离子接近细胞壁’则酸缓冲液能够单独促进细
胞短期生长。
(2)生长素应该能增加质子外排的速度(细胞壁酸化)’并且质子外
排的动力学与生长素诱导的生长十分—致。
(3)中性缓冲液应该能抑制生长素诱导的生长。
256
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
′q`′v`圈^
b`
第三篇稳态与调节
包壁的物)贡
(4)能促进质子外排的
复合物(除了生长素外)
’
应该能促进生长。
(5)细胞壁应该含有适
合酸性pH值的‘‘细胞壁松弛
因子”
。
这5个预测都已经得至||证
实°如果表皮磨损’酸性缓
冲液能引起生长速度的迅速
增j‖。在l0~l5mln的延滞期
后’生长素刺激质子外排进
人细胞壁’这与生长动力学
_致。
已经证明’—且表皮磨
损’生长素诱导的生长可以
被中性缓冲液抑制。壳梭抱
菌素(Fusicoccin)是真菌类
植物毒素’它既能刺激质子
迅速外排’也能刺激茎干和
胚芽鞘切段的短暂生长°最
后’在酸性条件时’细胞壁
松弛蛋白扩展素(Expansjn)
通过减弱细胞壁多糖组分间
的氢键使细胞壁松弛°
细
生长素的作用机理
■
|∧∧
○
▲
勺
←
6。0
200
^
=
|60
三
…
半
|20岳
←
5·5
皿
=
°
5。0
80
4·5
~
40
~
-|0
0
|0
20
30
40
50
60
时|百]
(m|∩)
王米胚芽鞘中生长素诱导的伸长
动力学曲线
∏
■
■
∏
GGGGGGGIGGGG
[l]泰兹奇格尔植物生物学[M|.宋§
纯鹏’王学路等译5版北京:科
|
学出版社’2()l5.
·...」…………………ˉ…..……....
257
●
●●
●
●
●
●
●
●
●
●
■
●
●
●
●
■
◆
●
●
●
●
■
●
●
●
″‰′0`〃Ⅵ
|‖∏高中生物疑点通
三-三=三三≡三三=←-====-===■=≡==一=≡====……-=--=======→====-■=====】
高浓度生长素Ⅷ制生长到底怎么理解?
===■=■≡==■=======≈苗≈=≡====■≈亩===■■=■|■·=■==■≡■……=====■…=========~=~====】
在人教版高中生物《稳态与环境》教材有关生长素的发现史
中’介绍生长素的两重性’即低浓度生长素促进生长’高浓度生长
素抑制生长’具体实例是:顶端优势和植物横放时根向地生长。
~
■
+|∧∧≈~~
+
^
◎
半
划
迅
割
强
凶
滨
理
/
′
对照生长
(不加|∧∧)
~
~ ~
\
|08
|0ˉ7
|0ˉ6
|0ˉ5
‖0ˉ4
|0ˉ3
|0ˉ2
|∧∧浓度(∏O|/[)
生长素作用的两重性
很多教师和学生对上述教材中语言描述以及图示的疑问集中
在:o图示中的生长素到底是内源生长素还是外源生长素?@高
浓度的生长素能抑制生长’抑制生长到底怎么理解?
在《新编植物生理学:绿色植物的生活》
(戴尧仁’倪逸声’
葛明德译’北京大学出版社出版)—书中就指出: “IAA的活性也可
以在由植物中取出的_小片组织中看到’如果将植物如豌豆的茎的
‖
●
●
●
●
●
●
●
●
●
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
25『
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
(/』搬啊〈增i′∩…垒′,l翅A′\
′
第三篇稳态与调节
狮
飞
可
生长部分切下’并放置于含有蔗糖和无机盐的培养Ⅲ中,生长将非常
缓慢;然而’如果加人少量的IAA’就会大大促进其生长’这种促进
作用在_定范围内与加人的生长素浓度呈正比例变化°通常能得到—
种最适的浓度超过这_浓度生长又会变慢’并最终被完全抑制。
,’
多本植物生理学方面的书都有类似的描述’所以教材图示中表示的是
外源生长素对植物器官生长的影响。
‘抑制生长时’植物到底能不能生长’’的问题’这是相对于对照
实验而言的。例如’把生长状况相同`等长的某种植物胚芽鞘分成若
干组’置于相同的培养液中’对照组中加人适量的蒸馏水’各实验组
中加人等量的不同浓度的生长素,然后在避光的相同条件下培养。_
段时间后’测定每组胚芽鞘长度的平均值。如果某生长素浓度下胚芽
鞘的平均长度比对照组的长,说明该生长素浓度是促进生长的;如果
某生长素浓度下胚芽鞘的平均长度比对照组的短’说明该生长素浓度
是抑制生长的。所以’高浓度的生长素抑制生长’并不是植物不长’
而是该浓度下生长得比没有添加外源生长素的还要慢。
事实上’植物体内本身也产生生长素’因此’在不添加外源生长
素的情况下’植物也能正常生长。植物体内真正由于生长素浓度过高
而导致植物死亡的情况极少发生’但抑制某些部位的生长是经常发生
的’如顶端优势现象。现代研究表明’植物的生命活动是多种植物激
素相互协调、共同作用的结果’超过最适浓度所引起的抑制作用主要
是由于生长素诱导了乙烯的合成。如果把植物抑制生长的现象只是理
解成植物生长素两重性的表现’也是不科学的°
|塞露…`…`
[1]王国红.高中生物学教学中几
●
●
;
个疑问的探析[J|.生物学教
●
●
●
学’20l5(8):70-ˉ71.
●●●●●●●●●●●●●■●■■■●■≡■■二==■■●●
●■●●●●●■●●■●
259
●
■
■
●
●
■
●
●
●
估
●
●
●
●
●
●
●
●
●
●
●
●
◆
●
巴
●
●
●
◆
●
●
■
●
●
■
◆
●
●
●
●
●
●
●
■
●
●
●
测吵吻\d′沁
|‖■高中生物疑点通
』
植翱激素的运输都是极性运输‖马?
|
■■==■=■■==■■■■====■=~■===■■■P■====■■■乙≈===■=■==■≡≡=■…====←=======■■F
含有放射性标记生长素
的琼脂块(供体)
,…
B
(受体)
可以运输至|」受体
∧
山
而
_
≡
】
顶
段
→
≡
的
除
切
~~~~~~~~~
下
体
供
日
吓
基端(B〉
广司∧
(受体)
不能运输至|」受体
幼苗
证明生长素极性运输的实验
生长素:生长素的极性运输与植物的发育有
密切的关系°例如’向性运动`扦插枝条`不定根
形成时的极性`顶端优势。对植物茎尖用人『i合成
的生长素处理时,生长素在植物体内的运输也是极
性的’且生长素活性越强’极性运输也越强。
|涂生长素极性运输现象之外,还发现在植物体
内存在被动的`在韧皮部中无极性运输的现象。成
熟叶片合成的[AA大部分是通过韧皮部进行非极性
的被动运输。大部分生长素结合物的运输也是通过
韧皮部进行的,例如’萌发的玉米种子巾生长素结
合物就是通过韧皮部从胚乳运输到胚芽鞘顶端的。
/`
|
|
|
|
|
|
|
|
生长素
生长素的极性运输示意图
260
■●●●●
p
●●●
■●●
′″Ⅷ′‖、趴}`/
第三篇稳态与调节
、
赤霉素:在植物体内的运输没有极性,可以双向运输°根尖合
成的亦霉素通过木质部向上运输,而叶原基产生的亦霉素则通过韧皮
部向下运输’其运输速度与光合产物运输速度相同’为50~l00cm/h°
细胞分裂素:_般认为细胞分裂素的合成部位是根尖’然后经
过木质部运往地上部位产生生理效应。研究还发现’茎顶端能合成细
胞分裂素。此外’萌发的种子和发育的果实也可能是细胞分裂素的合
成部位°
脱落酸:脱落酸的运输没有极性’主要通过韧皮部运输’也可
通过木质部运输°叶片内的脱落酸运输主要依赖韧皮部’而根系合成
的脱落酸主要依赖木质部运输到茎叶部°脱落酸主要以游离型的形式
运输’部分以脱落酸糖昔的形式运输。脱落酸在植物体的运输速度很
快’在茎或叶柄中的运输速度大约是20mm/h°
乙烯:
乙烯的运输是被动的扩散过程’—般情况下,乙烯就在
合成部位起作用°但其生物合成过程_定要在具有完整膜结构的活细
胞中才能进行°乙烯的前体ACC可溶于水溶液’
|大|而推测ACC可能是
乙烯在植物体内远距离运输的形式。
彰)主要参考文献}……………………….。
●
●
●
G
[l]吴举宏.关]二激素及共调节刀面的「|{]题探讨|J|.生
物学教学,2()]5(2):59_61.
[2]陈展.关「忙[物激索的运输方问|J|生物学教
学’2()()9(l):71
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
■
■
●
●
●
●
●
●
●
●
■
●
●
●
●
●
GGGGGGGG
26′
日
□
日
■
□
■
●
◆
●
●
●
■
$
巾
●
●
●
◆
◆
●
●
钮
◆
●
●
仕
■
●
●
●
●
●
∏
●
●
●
G
|‖·高中生物疑点通
■
→F
■■→【
=
一
完
…
加子丽蹬过煽□口激素窜
‖||{囤|巴
O
●
=■■=
激
…
胚
[
而
子
胚
层
粉
糊
|
}
‖
}
种子萌发过程中’多种激素共同发挥调节作用。参与调节的激素主要包
括生长素`细胞分裂素、赤霉素和脱落酸。激素含量具体变化见下图。
赤霉素
50
40
3o
脱
落
酸
、
细
胞
分
裂
素
含
量
言
吕
吕
干
重
=
◎
日
β
斗
旦
|
≡
◎
>
吕
干
重
=
赤
霉
素
含
量
20
{0
0
|0
2O
30
40
50
60
时间(d)
种子萌发过程中激素含量的变化
~
彰
从图中可以看出脱落酸对种子萌发起抑
制作用’在种子破除休眠过程中’赤霉素与
脱落酸之间存在拈抗关系。各种激素含量的
变化说明了种子萌发过程是多种激素共同发
挥调节作用的结果。
)主要参考文献‖..…………
●●●●●
■
亭.种子萌发过程中的生理
[1]祝丽环’黄掉.种子萌发过程中的生
变化[J|生物学教学’2()11(4):65_66
[2]高信曾.植物学[M].2版.北京高等教盲
出版社’1987:14—16
■
仲
●
●
●
●
[3]潘瑞炽董愚得.植物生理学[M].2版北
京:高等教育出版社’1984:47—52
■
●
●
●
●
●
■
●
●
◆
●
●
■
●
●
●
◆
●
■
=
●
■
●
●
●
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
IGGGGGGGGGG
IGGGGGGGGGG
G
‖娥§!蹦262!:.·
·
Q
0●◆●●●●●●●●●●●●●●●●●●
■■●●●●●●●●●●●●●●●●●●●●
》●●●●◆●●●●●●●●●●●●●●●●●
队●●●●臼●●●●●●●●●巴●●●●●●●e●
■
岛嘲晕■●●●●●●●●e●●●●●●●●●●●●●●■■
腮龋::;.:::::::::::::::8:::::
GG
第
气
|
|
引
|
|
匪
四
篇
—
王
■
Ⅱ
{
●
◎种群密度调查方法应该如何选择?
/264
◎种群增长曲线的增长率是如何变|
◎种群增长曲线的增长率是如何变化的?
/267
◎血细胞计数板如何使用?
/269
◎微生物的分解作用与呼吸作用等同吗?
/271
◎◎抵抗力稳定性与恢复力稳定性如何区分? /z74◎
测′`0′藤池
|‖■高中生物疑点通
■
尸
■■■■0■■■■=■■■■■■■■■■■■=■■■■=→=■■■■■■■==■■====■■■■■→==■■==■■■■■■=■■■≡=■■■■=■■
=■■■■=≈=■■
群密窿调查万法碰该如侧选择?
≈■=■■■■■■…■→=■■==■■===■■■■≡■■■■■■■≈→■■■■■·■■=■‖■=■■■=■■■■■=■■■■→■■■
■■■■■■■■=■■■=~
~
种群密度(populatjondensity)是指种群在单位面积或单位体积中的个体数’
种群最基本的数量特征。对种群密度进行调查研究时,怎样选择合适的方法呢?
是
↑.逐个计数法
在调查分布范围较小`个体较大的种群时’可以逐个计数,直接统计}|}调查范
围内的种群个体数及调查范围的面积或体积,再计算种群密度。
2估算法
对于植物以及活动范围小的动物的种群密度的调查’—般选择样方法。例
如’调查草本或木本植物的密度、昆虫卵的密度和作物植株上蚜虫的密度`跳蛹
的密度等°
样方法:在被调查种群的分布范围内’随机选取若干个样方’通过对每个样方
内的个体计数’求得每个样方的种群密度以所有样方种群密度的平均值作为该种
群的种群密度估计值。例如,若各样方的种群密度分别为/V|`M`M、…`M’则该
种群密度的估计值为(/Vl+M+M+…+№)/刚。
(
|)随机取样的方法
在抽样时’如果总体中每_个个体被抽选的机会均等’且每—个个体被选与其
他个体间无任何牵连’那么’这种既满足随机性’又满足独立性的抽样’就叫作随
机取样(或叫作简单随机取样)
。
o点状取样法。点状取样法中常用的为五点取样法(图l
)’当调查的总体为非
长条形时’可用此法取样。这种方法适用于调查植物个体分布比较均匀的情况°
@等距取样法°调查的总体为长条形时’可用等距取样法(图2)’先将调查总
体分成若干等份’
由抽样比率决定距离或间隔’然后按这_相等的距离或间隔抽取
样方的方法’叫作等距取样法。
264
●
●
●
●
●
●
●
●
■
●
■
■
▲
●
■
●
●
●
●
●
●
●
●
第四篇生物与环境
Ⅱ
□□□□□□
图1
五点取样法
图2等距取样法
(2)计数的方法
样方的形状可以多样’_般为方形或圆形。长方形样方计数时’计位于长方形内部
及顶边`左边和左上角处(或相邻两条边及其夹角)的个体;圆形样方计数时’计位于
圆形内部及左半圆周上的个体’右半圆周及两个半圆接触的个体不计;正方形样方计数
时’计样方内部及样方顶边、左边和左上角处的个体’其他边缘不做统计’即“左上原
则’’
°
‘‘左上原则’,是_般的、习惯上的统—标准.样方的边界线越长’位于其上的个
体数往往越多。对于方形样方而言’在计数时选择的相邻两边不同’其结果往往也不
同。因此’会使调查结果的准确性降低。若圆形样方和方形样方的面积相同’则圆形样
方的边界线(周长)较短’位于其上的个体数较少,对调查结果的影响较小。因此’相
对于方形样方’圆形样方具有—定的优势—减小了样方边缘效应的影‖间。
例如’图3所示的—个样方(图中圆圈表示蒲公英个体的分布)’按照上述计数方
法’该样方中应计数的个体如阁3中涂色的圆圈’样方内部有6株蒲公英’样方顶边`左
边及左上角处有4株’故该样方内蒲公英为6+4=10株。
)○
)
○
○
…
…
○
○
○
图3样方法示意图
265
■
$
◆
◆
●
●
●
●
泞
●
●
●
俄
●
◆
●
●
$
●
●
●
●
●
●
◆
●
●
●
●
●
心
■
`^‘′∏k〃吻√
`M吻`u广
|‖□高中生物疑点通
样方大小应视被调查的生物种类而定。_般而言’草本植物、灌木和乔木的样方大
小依次为1m2`16m2和l00m2。样方的多少也会影响调查结果。样方太少’其统计的结
果误差往往较大;通常样方越多’其统计结果越接近真实情况°
在调查活动能力强、活动范围大的动物时’常用的方法是标志重捕法。
标志重捕法:在被调查种群的活动范围内’捕获—部分个体’做上标记后再放回
原来的环境’经过_段时间后进行重捕’根据重捕到的动物中标记个体数占总个体数的
比例’来估计种群密度°密度估算公式如下:
个体总数Ⅳ
再次捕获个体总数〃
~~
初次捕获标记数M重捕的标记个体数′″
要点:
(l )标志个体释放后与其他个体均匀混合。
(2)标志方法不会伤害动物或
影响动物的行为。
(3)研究区域呈相对封闭状态’没有个体的迁人和迁出。
对于有趋光性的昆虫’可以用黑光灯灯光诱捕的方
法调查它们的种群密度。黑光灯通电后可产生波长在
350nm左右的紫外线。农业害虫对波长为330~400nm的
紫外线敏感,具有趋光性。用黑光灯诱捕具有趋光性的
昆虫不属于样方法’而是属于去除取样法’是用估计法
估计种群的绝对量。其原理是:在_个封闭的种群里’
用同样的方法连续捕捉被调查动物’随着连续的捕捉,
导致种群内个体数逐渐减少,造成每次捕获数逐次递
减’但捕获的总累积数则逐渐增加’当单次捕获数降到0
时,捕获的总累积数就等于该种群的总个体数°以捕获
积累数为X轴’每次捕获数为Y轴’根据数据描点作直线
向右延伸与X轴的交点即为种群估计数。
=
′
丁
『
(主要参考文献]…………….…….·
[1]祝远超有关样万法的几个问题[J]生物学教
|
学,2(}15(11):78ˉ-79.
[2]魏万青金版教程.高二同步.生物实验[M].2
版呼和浩特内蒙古大学出版社,2009:103.
一▲▲二▲■●●●■●●■■●●●■●
■
●●●●●●●●●●■●●●■■■■■■宇■=■=■
●●●●●●
266
■
●
●
●
●
●
●
●
●
G
=
↓
‖
|
|
删
氟
挚
÷
猫
贯
~
时间
←
种群连续增长的J型曲线与S型曲线的数学模型
种群的实际增长率称为自然增长率’用′来表示。
自然增
长率可由出生率和死亡率相减来计算出°
自然界的环境、条件
是不断变化的,因此所观测的种群实际增长率也是不断变化
的。为了进行比较’常常在实验室不受限制的条件下观察种群
的内票增长率(innaterateoflncrease)′m。
↑.
J型曲线~与种群密度无关的种群连续增长
模型
假定在很短的时间d/内种群的瞬时出生率为b’死亡率为
〃’种群大小为Ⅳ’则在无限环境中种群的瞬时增长率′=b-〃’
它与种群密度无关°即
dMd′=(b—β)Ⅳ=′Ⅳ
267
●●
●●
●●●
●●●●●●
●●●●●■
●
●
●
●
●
●
●
●
●
●
●
■
仙
●
●
●
●
■
●
●
■
●
●
●
●
■
●
■
●
●
●
■
|‖·高中生物疑点通
其积分式为
川≡Me″
′是一种瞬时增长率(instantaneousrateoflncrease)
’ ′>0’种群数量上升;
′=0,种群稳定; ′<0’种群数量下降。
在理想状态下’种群的增长不受外界条件和自身数量的限制’种群的出生
率和死亡率不发生改变。因此’种群的增长率′一直保持不变°
2。
S型曲线—与种群密度有关的种群连续增长模型
在S型曲线中’我们增加了两点假设:@种群有—个环境容纳量(carrying
capacity)
(通常以K表示)°@增长率随密度上升而降低的变化是按比例的’
即每增加—个个体’就产生l/K的抑制影响。换句话说,假设某—空间仅能容纳
K个个体’每—个个体利用了l/K的空间’ /V个个体利用了MK的空间,而可供种
群继续增长的“剩余空|可,
’就只有lˉMK了。
“S”型曲线的最简单的数学模型可以解释并描述为在上述‘‘J’’型的指数
增长方程上乘上_个密度制约因子lˉMK’这样就得到了生态学发展史上著名
的逻辑斯筛方程(Logisticequation)
:
dMd『=′Ⅳ(l-MK)
其积分式为川=K/(l+eαˉ〃)’其中α的值取决于M’表示曲线对原点的相对位置。
在种群增长早期阶段’种群数量/V很小’ /\//K值也很小’因此lˉMK接近于
l’所以抑制效应可以忽略不计’种群增长实质上为′Ⅳ’呈几何增长°然而’当
/γ变大时’抑制效应增强’直到当Ⅳ≡K时,
l-MK变成了l-K/K=()’这时种群的
增长为零,种群达到了_个数量不变的平衡状态。
由上述叙述和方程可知: S型增长曲线种群增长率′_直在变’随着Ⅳ的增
大’
′—直在下降。
′≡…0……
—
[1]牛翠娟娄安如’孙儒泳.基础生态
●
学[M].3版北京:高等教育出版
社’2015
●
●
■●●
●●●■●●●●●●●●●■■●●■■●●●■■■■■■■●●●●●●●●
●
26g
●
●
●
●
●
●
●
◆
●
●
■
●
●
●
●
●
●
●
●
●
●
◆
●
●
●
●
●
●
◆
●
●
●
●
■
吩
●
●
■
L
严}』蝉′’M`、/皇′\』′′!翅抑雄′『M′w`′硼(翅挪M``
第四篇牛物与环境
狮
‖
绷胞计数板"侧使用?
Ⅲ细胞计数板是_种生物学或医学仪器’用以对人体lⅢ液中红细胞`白细胞进行显
微计数’也常用于_些细菌`真菌`酵母菌等较大细胞或微生物的计数。我们应该如何
来使用它呢?
↑.血细胞计数板的构造
Ⅲ细胞计数板的形状如图1所示’Ⅲ细胞计数板是_块特制的厚载玻片’载玻片上
由4个槽构成3个平台。中间的平台较宽’其中间又被—短横槽分隔成两半’每个半边
上面各刻有—方格网’每个方格网共分9个大方格(大方格用三线隔开A`B、C、D`
E等)’每个大方格边长—般为1mm’中央的_大方格A作为最常用的计数室’用于红
细胞`Ⅲ小板`细菌等较小细胞的计数’而四周的大方格(B、C、D、E)用于较大细
胞的计数’如白细胞°中央计数室的规格常有两种:_种叫希利格式(l6×25型)’是
_个计数室分为16个中方格(中方格之间用双线分开)’而每个中方格又分成25个小方
格;另—种叫汤麦式(25×16型)’是_个计数室分成25个中方格’而每个中方格又分
成l6个小方格。两种规格的中央计数室都由40()个小方格组成。
}
|Ⅷ.慌
|
↓
二Bˉ瞒」ˉ在二
l
l
|」"|
|
|
|
主飘溺≡
0ˉ25m『W0=
|二b||{|}|{|{附|||目|ˉ
‖加肌
↓ˉ…』』
|阎‖
{[
}‖|
|
|
|
↑而丽
←_→
图2
‖
!
‖
‖
‖
‖
‖
■
【
【
∏
|
‖
】
【
〗
】
印
|!|影蕊
0.|0阳网
(
刁而m加2
图1
血细胞计数板实物照片
↑个大方格∧的面积‖们m2
‖个大方格∧的面积‖∏]m2
共‖6个中方格‖4OO个小方格
共25个中方格’4O0个小方格
希利格式(‖6×25型)
汤麦式(25×‖6型)
血细胞计数板构造示意图
2。血细胞计数板的计数方法
中央计数室的边长常为1mm’则计数室的面积为lmm2’盖上盖玻片后’计数室的
269
●G
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
∩
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
G
G
+
十
+
+
~‖
一厂
+
]
「
}
+
『
「
『
|
{
十
口
{
‖
+
『
}
|
『
『
『
↓
〖
‖
丁
『
′′u′`′扒
划′v葡
″
`翅〗
|‖□高中生物疑′点通
高度为0」mm’所以计数室的容积为0.lmm3’每个小方格的边长为O05mm’每个小方
格的容积为l/4000mm3。l6×25型的每个中方格的边长为025mm’每个中方格的容积为
l/l60mm3, 25×l6型的每个中方格的边长为O2mm’每个中方格的容积为l/250mm3。
使用Ⅲ球计数板对酵母菌计数时’经常是测定每个小方格或中方格中细胞或微生物
的数量’再换算成lmL培养液中细胞或微生物的数呈。
培养液中细胞或微生物的数量/mL=每个小方格细胞或微生物平均数
×稀释倍数×4×10(’
16×25型计数室的计数:
培养液中细胞或微生物的数量/mL=每个中方格细胞或微生物平均数
×稀释倍数×l.6×l05
25×l6型计数室的计数:
培养液中细胞或微生物的数量/mL=每个中方格细胞或微生物平均数
×稀释倍数×25×l05
使用血细胞计数板对白细胞计数时则不同’应选取四角大方格(图l中的B`C、D、
E区域)为样方来计数°每个大方格的体积都为0.lmm3’再利用以下公式计算’最后得
到结果。
细胞数/mL=每个大方格细胞或微生物平均数×l04×稀释倍数
~
~
‖
「
3.注意要点
(l )待测培养液应用吸管吸取置于盖玻片的边缘’使菌液缓缓渗人,多余的菌液用
吸水纸吸取’从而确保计数室的高度为0.lmm。
(2)用显微镜计数时’对于压在小方格界线上的’应只计相邻两边及其顶角的个体°
(3)从试管中吸取培养液进行计数前’要轻轻振荡试管几次,
目的是使培养液中的
酵母菌均匀分布。
(4)计数时’包括死细胞或微生物及
微小杂物均被计算在内’这样得册结果往
往偏高’结合染色法排除死细胞等的影响
可以减小实验的误差°
主=文Ⅷ
一
|l|戎军.血球计数板及其使)
中学生物教学’20l5(19):4
用万法[J]
↓1—43.
●●●●●
●■●
●●●●●●●■●●●●●■■
●■●●●●●●●●●●
270
{′
柳
叼〗
℃§、\M‖剔
巴
第四篇生物与环境
==■■========■…·■=■====■=======乙==■==■==■■=≈==■====■=□■■=■====■=≡■=■■■】
微生糊的分解作俐与呼服作闲等问码?
====■=…≈===========≡===■=三二二≡≡■===■■==■======≡=≡■■=■=====≡芭=■乙===■==
分解者主要是营腐生生活的细菌、放线菌、真菌等各类微生物,
某些土壤动物也有_定的分解能力’通过分解动、植物残骸中的多
糖、蛋白质、核酸脂类等物质,获得个体生存的能源和营养物质’
同时将庞大的动、植物残骸分解`清除掉’最终将其中的各类物质以
不同的形式归还到环境中。
有机碳
无机碳
~—\
人
—
¥
慧÷Ⅷ
胞外分解作用
胞内分解作用
微生物的分解作用
分解者的分解作用包括细胞外(胞外)分解和细胞内(胞内)分
解°胞外分解指各类分解者分泌出各种胞外酶将大分子的多糖、蛋白
质`核酸、脂类等物质水解成不同的小分子的二聚体或是单体(蛋白
质水解产物可有短肤)。胞外酶是分解者排到细胞外起催化作用的各
类水解酶。小分子营养物质被各种分解者以不同的方式吸收到细胞内
利用。胞内分解指营养物质在分解者的细胞内进行的生物氧化作用’
主要以有氧呼吸的方式或无氧呼吸的方式将营养物质分解成CO2’
回
到无机界°此过程可用上图表示。
27′
●
●
●
●
●
●
●
●
●
●
■
●
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
`^′铡′√<
|‖口高中生物疑点通
(
|)对淀粉的分解
植物的种子、块根`块茎等器官中含有丰富的淀粉。许多分解者都能
水解淀粉’如细菌`放线菌`许多种类的真菌。它们能分泌αˉ淀粉酶`
β-
淀粉酶`异淀粉酶等’将淀粉水解形成麦芽糖`葡萄糖。
(2)对纤维素的分解
纤维素在植物体中的含呈可占l5%~45%’甚至50%’是地球上储量
最丰富的多糖化合物。能分解纤维素的分解者有梭状芽抱杆菌、
黍占细菌`
瘤胃细菌`真菌及放线菌等。真菌、放线菌能分泌纤维素酶将纤维素水解
成葡萄糖。纤维素酶是_类纤维素水解酶的总称’又叫纤维素复合酶’包
括C|酶`C狐酶和β—葡萄糖昔酶等。细菌的纤维素酶不能分泌到胞外’它结
合在细菌的细胞膜上’水解纤维素时’细胞需附着在纤维素上°
(3)对蛋白质的分解
动`植物体均含有蛋白质。能分解蛋白质的分解者种类很多。梭状芽
抱杆菌`假单胞杆菌、小球菌、放线菌`霉菌等能分泌蛋白酶、肤酶’将
蛋白质水解形成短肤和氨基酸。不同的分解者能分泌出不同的蛋白酶’水
解不同的蛋白质’如明胶蛋白酶、酪蛋白酶、胶原蛋白酶、角蛋白酶等。
同_分解者产生的蛋白酶常常是几种蛋白酶的混合物’可分别水解不同种
类的蛋白质。
(4)对核酸的分解
动`植物残骸中的核酸被链球菌`葡萄球菌、芽抱杆菌等分泌的多种
核酸酶水解’如有特异水解DNA的核酸酶(内切或外切)’也有特异水解
RNA的核酸酶(内切或外切)’形成不同的核昔酸。
(5)对脂类的分解
脂类物质广泛存在于生物界。细菌(如灵杆菌`荧光假单胞杆菌)
`
放线菌`霉菌(如白地霉、青霉、曲霉)等能分泌脂酶水解脂肪’形成甘
油和脂肪酸°脂酶不是高度专_性的’但水解脂肪分子中甘油不同部位酷
键的脂酶是不同的°磷脂可被解磷巨大芽抱杆菌、蜡状芽抱杆菌等分泌
的磷脂酶水解。磷脂酶有A、B`C、D4种’分别催化、断裂不同的磷脂
键’形成甘油`脂肪酸、胆碱。
~
■
=
■
2沤
●
●
■
●
●
●
◆
●
●
◇
●
●
●
●
●
●
●
●
●
●
●
G
G
`\‘``〃`Jv
O/
第四篇生物与环境
(6)营养物质的吸收
在各种胞外酶的作用下’大分子变成了小分子。作为营养物质的小分
子物质被分解者细胞吸收’进人分解者体内。不同性质的营养物质进人分
解者体内的方式不_样(吸收方式不—样)。脂溶性的小分子物质’如
苯`脂肪酸通过自由扩散进人细胞内;短肤`氨基酸和_些糖类通过主动
运输或协助扩散进人细胞内。不同的分解者吸收相同的营养物质’方式不
—定相同°
(7)胞内分解作用
分解者将各种营养物质吸收后’在细胞内进行生物氧化作用’分解这
些物质。
(8)需氧分解者
大部分种类的分解者在细胞内分解各种营养物质是以有氧呼吸为主的
方式进行的’产生的CO2进人无机界。许多种类的需氧分解者在分解氨基
酸过程中,还能通过水解脱氨和脱竣作用分解氨基酸’产生CO2°
(9)厌氧分解者
少数种类的分解者(包括兼性厌氧分解者)在细胞内分解各种营养
物质是以无氧呼吸的方式进行的’产生的CO2进人无机界,如硝酸盐还
原菌和硫酸盐还原菌。还有_些分解者,如酵母菌、梭状芽抱杆菌`乳
酸菌、大肠杆菌等能将吸收的营养物质,主要是糖类’以发酵的方式进
行分解’虽不形成CO2 (酵母菌可产生CO2)’但产物能被其他菌吸收利
用,最终形成CO2。
综上所述’可知分解者通过分泌胞外酶将大分子有机碳化合物水解
形成小分子’吸收这些小分子后,在细胞内将它们氧化分解形成无机的
CO’’从而维持了生态系统中的碳循环。
|窒霍…]……=
[1]黄福贞.分解者在生态系统物质
●
循环中的作用[J].生物学通报
●
●
●
●
1996(12):15—16.
●
●●●●●●●●●●●●●·●■■■●■●●●●■■■
●●●●●●●●●●●●●●
●
273
●
●
G
G
G
N
GG
购^〃腆Ⅷv‰′
|‖□高中生物疑点通
=■■===■=========■…■=■…●■…~==°=======■====≈■====`.-=■==■===二=≡≡=====■→=■=■=】
抵抗力稳定性与愤复力稳定性如何区分?
===========■=====■==■====■====■=→≈=宇==■=============■→■=≈===≈===========】
引
↑.抵抗力稳定性
抵抗力稳定性也称为抗变稳定性’指的是生态系统抵抗外界干扰
并使自身的结构与功能保持原状(不受损害)的能力’其核心是“抵
抗干扰’保持原状”
。
“干扰”是指破坏稳定状态的外界因素’这种
“干扰”的破坏程度是比较小的;
‘‘保持”是指与干扰同时表现的系
统内在的自我调节能力°
■
■
2恢复力稳定性
恢复力稳定性也称为弹性稳定性’指的是生态系统在受外界干
扰因素的破坏后恢复到原状的能力’其核心是‘‘遭到破坏’恢复原
状’’
°
“破坏”是指受外界因素的影响使生态系统较远地偏离了原来
稳定的范围;
“恢复”是指外界因素消除后’生态系统重新建立稳定
状态。
3.两类稳定性既相对立叉相联系
抵抗力和恢复力这两类稳定性是相对立的’即抵抗力稳定性强的
生态系统’其恢复力稳定性较弱。对于不同的生态系统来说’很容易
比较出两类稳定性的强弱。例如’森林生态系统与草原生态系统相
比’前者结构复杂’后者结构简单;前者的抵抗力稳定性比后者强’
而后者的恢复力稳定性比前者强。对于同_生态系统来说’很少直接
将抵抗力稳定性与恢复力稳定性比较’因为这种分析本身就不合适,
也没有实际意义°
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
274
●
●
●
●
●
●
●
●
●
●
●
●
健//Ⅱ柳《//′…′\/鳃′′M{~
严`
第四篇生物与环境
硼吻知′
抵抗力稳定性与恢复力稳定性的关系如图1所示’两条虚线之间的部分表示生态系
统功能的正常作用范围’当—个扰动(干扰因素)使系统偏离这个范围时’偏离的大小
可以作为抵抗力稳定性的定量指标(T)’而恢复到原状所需时间可以作为恢复力大小
的定呈指标(S)。曲线与正常范围之间所构成的面积则可以作为总稳定性的定量指标
(TS)’这—面积越大’说明这个生态系统的总稳定性越低°受到同样的外界干扰时’
生态系统偏离正常范围越远’说明抵抗力稳定性越差;而生态系统遭到破坏后’恢复到
原状所需的时间越长’则说明恢复力稳定性越差。
爪
干扰
撒
闰
崭
账
憎
州
|
|
恢复力指标
匡
O
时间
图1
抵抗力稳定性与恢复力稳定性的关系
4比较两类稳定性须强调星体的环境条件
对于同—个生态系统’_般不易同时表现出两类稳定性。当然’也存在着特例。例
如,热带雨林由于其具有丰富的物种组成’结构比较复杂’_般具有很强的抵抗力稳定
性。然而’当其受到_定强度的破坏后,也能较快地恢复。再如’对于荒漠`极地苔原
或冻原’
由于其物种组分单_`结构简单’其抵抗力稳定性很弱。但是’在遭到严重破
坏后’恢复的时间也十分漫长°对于这样的生态系统来说’抵抗力稳定性和恢复力稳定
性都弱。
所以,若不考虑外界环境条件’无法直接将抵抗力稳定性与恢复力稳定性进行比
较。如果要对_个生态系统的抵抗力稳定性和恢复力稳定性进行说明’必须强调具体的
环境条件。相对来说’环境条件好’生态系统的恢复力稳定性较强;环境条件差’甚至
是极其恶劣’则恢复力稳定性和抵抗力稳定性都较弱。
275
曲
●
●
●
●
●
●
●
●
●
●
●
●
●
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
◆
|‖口高中生物疑点通
‖
5。提高抵抗力稳定性还是恢复力稳定性
提高生态系统稳定性的关键是人为活动。生态系统的稳定是生态系统
发展到—定阶段的必然产物’是抵抗力稳定性与恢复力稳定性协调统_的
必然结果°例如’采用恢复生态学技术来治理退化的生态系统’主要是根
据生物群落演替理论’强调生态系统的自我调节能力’并辅以有效的人为
手段,从而尽快使退化的生态系统从受损的状态恢复到健康的状态。此过
程只体现了逐渐提高系统抵抗力稳定性’尽管对应着系统的每_个恢复阶
段都有相应的恢复力稳定性’但却并不能说逐渐提高恢复力稳定性°提高
生态系统的自我调节能力’准确来说就是要提高生态系统的总稳定性’即
减小阁l中的总稳定性的定量指标(TS)’只不过在采取提高生态系统稳
定性的具体措施时’更多地倾向于抵抗力稳定性的提高°
如果对生态系统的干扰程度处于生态系统正常自我调节能力的范围之
内’那么生态系统抵抗干扰的能力必将发挥出效果’同时其恢复时间也必
然较短。概括地说’提高或保持生态系统的稳定性’—方面要控制干扰程
度’对生态系统的利用应该适度’不应超过生态系统的自我调节能力;另
—方面’对人类利用强度较大的生态系统’应进行相应的物质`能量投
人’以保证生态系统内部结构与功能的协调。
/圭=醚`●●●●●●●●●●●●●●●●●●●●●●●●●●
●●
|
[l]李永加’刘丹丹.“生态系统的稳定性,,相关问题解
读[J].生物学教学’2()12(12):48—49.
[2]曹凑贵’严力胶’刘黎明生态学概论[M]北京:高等
教育出版社,2()()2:268.
[3]张树虎“生态系统的稳定性’,—节内容的教学处
理[Jl生物学教学’201()’35(8):16
[4]孙儒泳李庆芬』牛翠娟’等基础生态学[M].北京:
高等教育出版社’2()()2:291
●
●
●
●
●
●
●
●
●
G
G
●●■●●●●●●●●●●●●●●●●●●●●●●●●■●■●●●●●●●■●●●●●●●●·●●●●●●●●●■
●
●
●●●●
●
●
●●●●●●●●●●■●●
;溅蹦!276§;§::·
■■●●●●●●●●●●◆■●●●●■●
●■●■■●Q●●●●●●燃●●G●●■●●
F…●●●●●●●●●●●●●●●●●●砂●●■●
■ˉ■■●●■●●●●●●●●●●●●●●●Q●●■p
●●●●●砧■●●●●●●●●●■●■●●●●●■●●
印
●
●●●●●●●●●●●●●●●●●●●●●●●
竹
●
●
●●●●●
●■●■●
■■■
■
皇
〕微生物培养中平板为何要倒置?
/278
〕抗生素对微生物有何作用?
/28o
〕鉴定纤维素分解菌的培养基中为什么加土豆
汁?
/282
〕花药离体培养与花粉离体培养是_回事吗?
/283
〕植物能否吸收蔗糖?
/285
〕植物组织培养为何选用蔗糖?
/287
〕植物体细胞杂交如何筛选出杂种细胞?/288
〕植物体细胞杂交获得的杂种植株可育吗?
/289
〕如何确定体细胞杂交后杂种植株的染色体数目
和基因型?
/29o
〕单抗制备所用的B细胞是浆细胞吗?
/291
〕杂交瘤细胞是如何被筛选出来的?
/292
〕单抗制备过程为何进行两次专一抗体检测?
/294
〕为何_个B细胞克隆只产生—种特异性抗体?
/296
〕细胞核移植为何要选择MⅡ期的卵母细胞作受
体细胞?
/z98
〕精子获能是怎样_个过程?
/299
〕卵泡在卵巢内是如何发育的?
/3OO
〕精卵是如何相互识别和相互激活的?
/3o3
〕哺乳动物受精过程精子的尾部会进人卵细胞
吗?
/3o4
〕透明带是什么?有何作用?
/3O5
〕同期发情的原理是什么?常用什么激素?
/3o6
〕母体为什么不会排斥外来移植胚胎?
/3o7
〕原核生物的限制酶为什么不剪切自身的DNA?
/3o9
〕磷酸二酪键是怎样的化学键?
/3n
◎基因工程中单酶切好?还是双酶切好?
/313
◎不同的限制酶有没有相同的识别位点和切点?
/315
◎基因库就是基因文库吗?
/317
◎如何从基因文库中获取目的基因?
/319
◎基因工程中如何诱导形成感受态细胞?
/321
◎感受态法改变的是细胞质膜还是细胞壁的通透
性?
/322
◎启动子=起始密码子?终止子=终止密码子?
/323
◎为什么噬菌体可以作为基因T程中的载体?
/324
◎PCR引物的设计有何原则?
/325
|‖□高中生物疑点通
■
尸
妇
平板倒置示意图
关于平板冷凝后要倒置的原因’除了教师用书中给出的参考答案“平
板冷凝后’皿盖上会凝结水珠,将平板倒置’既可以防止皿盖上的水珠落
人培养基’又可以避免培养基中的水分过快挥发”外,还有以下原因°
|。接种前平板倒置的原因
(
|)避免培养基与培养皿脱离
倒置平板后’
由于培养基尚有余温且刚凝固不久’水分较大’湿度较
高’Ⅲ盖上凝结了—些水珠。如果平板正放则冷凝的水滴会流到培养基
里’不但易造成污染’还会使培养基与培养ⅢI出现分离’很容易滑动’这
也是培养基黍占附不牢的_个原因;此外’若倒平板时培养基中的水分较
大’在接种培养时’培养基中的菌种会四处流动’使长成的菌膜连在_起
导致不能计数。
27J
■
●
撼
第五篇生物技术与工程
(2)平板倒置拿取方便
打开培养箱取放平板时’如果不小心容易将正放的培养〗Ⅱ的Ⅲ
盖碰开。而倒置的平板在拿取时能够保持原状’不易出现Il底和Ⅲ
盖分离的情况’从而避免环境中杂菌的污染。
2.接种后培养时平板倒置的原因
(
↑)利于菌种的生长和繁殖
当培养条件为必须通风时’倒置的平板可以减少培养基表面的
空气流动’减慢培养基中水分蒸发的速度,维持琼脂等固体培养基
中的水分’充分保持琼脂等凝固剂的弹性’延长培养基出现干裂的
时间。所以’倒置培养有利于菌种的生长和繁殖。
(2)防止培养过程中杂菌污染平板
倒置培养时’由于平板内的空气不易流动’能尽可能地减少外
来杂菌的侵染’避免杂菌污染培养基和培养物。
(3)有利于营养物质富集,方便观察计数
平板倒置进行微生物培养时’受重力的影响’_方面培养基中
的营养物质会富集在培养基表面及表面以下的次层有利于微生物
生长;另—方面培养基表面生长的菌落相对不会太快扩散’这样观
察时有利于辨别菌落特征。
●■●●●●●●●●●●●●●●●●●●●●
|主要参考文献
}.……
[1]李洪伟微生物培养中平板倒
物学教学’2016’12:61—62.
[2]李洪伟微生物的培养之平板
生物教学’2016,14:62_63.
置的原因浅析[J].生
倒置的原因[J]、中学
●
●
●
●
●
·
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
=
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
279
吩
●
●
~
~
~
|‖∏高中生物疑点通
■
|
户
■■■■■■■■】■■■■■=====■■=■■
0■0
■■■■■
‖■■==■■=→■■■■=■■■■■■■■■■■■■■
■■■=■■
抗生素刺微生糊有侧作朋?
==■■■■■■■==■■■■■·
■■■=■■■■■■■■l■■=…=■■■■■■■■■===■■■
■■
0■■
■■■■■■■■■=■■
抗生素是指许多微生物在代谢过程中产生’能杀死其他微生
物或抑制其他微生物生长的特殊化学物质。根据抑制微生物的种
类多少可分为广谱抗生素和狭谱抗生素。在医学上’抗生素主要
用于治疗各种细菌感染引起的疾病’对由真菌引起的感染疾病没
有什么效果。
~
~
~
~
~
~
~
~
~
~
|抑制细胞壁合成:青霉素`头抱菌素`杆菌肚`
万古霉素
2抑制蛋臼质合成:氯霉素`红霉素`四环素`链霉素
】
‘
髓雌~
的合成
3抑制核酸复制和转录:哇诺酮类`利福平
抗生素药物的主妥作用机理
抗生素对微生物的作用主要有以下五个方面。
(
|)抑制微生物细胞壁的合成
如青霉素先抑制革兰氏阳性菌肤聚糖的合成’进而阻碍细胞壁
的合成’菌体失去细胞壁的保护作用’又因革兰氏阳性菌细胞内渗
2J0
●
●
■
●
●
●
●
●
●
●
·
■
■
■
●
^′v`醚′∏k硼吻\u′v≤
第五篇生物技术与工程
透压高于环境中渗透压’导致细菌细胞发生渗透性吸水’使细
菌膨胀或裂解死亡。人和动物的细胞没有细胞壁’不含肤聚
糖’所以不受青霉素的损害°
(2)破坏微生物的细胞膜
如多黍占菌素中的游离氨基与革兰氏阴性菌细胞质膜中的磷
酸根(PO』—)结合’损伤其细胞质膜破坏了细胞质膜的正常渗
透屏障功能’使菌体内的核酸等重要成分泄出’导致细菌死亡。
(3)抑制蛋白质合成
如氯霉素`四环素、卡那霉素等都能与核糖核蛋白结合’
抑制微生物蛋白质的合成。同时’上述广谱抗生素能与酶组分
中的金属离子结合’抑制酶的活性°因受上述两方面的影响’
许多微生物的生长受到抑制。
(4)作用于能量代谢系统
如抗霉素A是呼吸链电子传递系统的抑制剂’抑制细胞色
素b与细胞色素c|之间的电子传递。同时’抗霉素A也能抑制
电子传递体系放出的自由能形成的高能中间体向ATP生成的
过程。
(5)干扰核酸的合成
如博来霉素与DNA结合,干扰DNA复制。
综上所述’抗生素并不能治疗所有的疾病’只有对症治疗
才有效果’如果滥用抗生素’反而易使细菌产生抗药性’造成
严重的危害。
|≡…`
●●●●●●■●●●●●●●●●●●●●●●●●●●●●
[1]孙延忠曾洪梅李国庆.抗生素对微生物作用的研
究[J].微生物学杂志’2003’3:44—47.
[2]童建文谈抗生素对微生物的作用[J].生物学教学’
2012’10:64。
●
●
●
●
●
●
●
●
●
●
GGGGGGGGGGGGGGGIGIIIGGIIGIIIGGGGGGGGGGGIIGGGGGGGGG
GGIG
2g′
●
●■
●
●
●
●
●
●
叮
则′″`幽/Ⅵ
|‖■高中生物疑点通
人教版生物选修l第29页旁栏有_道思考题:两种刚果红染
色法各有什么优缺点呢?关于方法二的缺点,教师参考用书中
给出的答案是:
由于土豆汁中含有淀粉类物质’会使能够产生
淀粉酶的微生物出现假阳性反应。对于该答案’很多师生有疑
惑:既然会出现假阳性’为什么要配制这个含有土豆汁的培养
尸
∏
■
√
必
■
∏
『
剧h
夕
尸已-
纤维素分解菌鉴定照片
基呢?
要解答上述疑问’首先要明确两点:o用稀释涂布平板法
对微生物进行鉴定’要求微生物在培养基上能够繁殖成_个菌落;@微生物对碳源的利
用是有选择性并且有_定顺序的’这些是由微生物自身的酶系统决定的。
微生物往往能利用多种碳源’就像人_样’有钱时可以吃“大餐’ ’如果破产了’饿
极了’窝窝头也照样吃。微生物利用的碳源有速效碳源和迟效碳源之分’
“大餐”就是微
生物的速效碳源,利于吸收’容易消化’比如葡萄糖或者淀粉;
“窝窝头’’就是微生物的
迟效碳源’即微生物将速效碳源用完后’为了生存利用的其他碳源’比如纤维素。
综上所述,在鉴别培养时’由于涂布使菌体密度大大下降’为了让单个菌体更好地
存活下来并形成菌落’于是在鉴别培养基中加人—定量的土豆汁。当然’—开始能分解
淀粉的微生物也会繁殖’但由于加人的淀粉量较少’在淀粉分解菌还未能发展到—个菌
落的时候淀粉就用完了’只剩下纤维素°此时,纤维素分解菌则能继续利用纤维素繁殖
成—个菌落’而淀粉分解菌因为不能继续利用纤维素使增殖受阻(这也是教师参考用
书上说明只产生淀粉酶的微生
物产生的透明圈较为模糊的原
因)。所以’本实验中加人土
豆汁的原因是为了利于纤维素
分解菌更好地繁殖’以便形成
菌落。
=文献`…………
.
丫
[1]苑国英关于“分解纤维素的微生物的分离,’两个
:
问题的探讨[J].生物学教学,2014’11:68.
●
8
[2]鲁利星对‘‘分解纤维素的微生物的分离,’_节的
两个解惑[J]教育教学论坛’2013’23:67’75.
●
●
●
●
●
■
●
●
●
●
●
●
■
●
■
●
●
●
●
●
●
●
●
■
■
■
■
●
■
■
●
●
■
■
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
GGGGGGG
282
●
●
●
第五篇生物技术与工程
花药离体焙养与花粉离体焙养是一Ⅲ事鹏?
4单倍体植物
(通常不盲)
二倍体植物
花粉粒置于琼脂固体
养基卜讲行培养
3ˉ用相关植物激素
处理胚状体
2ˉ单倍体胚状体生长
-
—
单倍体植物培养过程示意图
花药培养:花药培养是将花药(花粉发育到—定阶段)接
种到人工培养基上培养,以形成花粉胚或愈伤组织’进而分化
成植株的技术。
花粉培养:花粉培养是将花粉从花药中分离出来’使之成
为分散或游离的状态’通过培养使花粉脱分化,进而发育成完
整植株的技术°
花药培养可以得到单倍体,但也会得到二倍体或多倍体。
例如’在水稻花药离体培养得到的2496株花粉植株中’单倍体
只占353%’二倍体占53.4%,多倍体占5.2%°这些变化中’非
单倍体可能来自花药体细胞如药壁细胞,
由它们先形成二倍体
愈伤组织’再分化为二倍体植株’或者来自单倍体细胞的自主
加倍’也可能来自雄核发育过程中的营养核和生殖核的融合。
故花药离体培养不—定都能获得单倍体。
2J3
●
●●
●q●●
$●●心
●●
$
●
▲
●
$
■
●
●
●
●
●
▲
●
●
~0
、q
|‖0高中生物疑点通
花粉培养比花药培养难度大。在诱导培养过程中’因激素等条件的不同’使花粉植
株的形成有两条途径:_是由小抱子的异常发育形成花粉胚(胚状体)’再由花粉胚循
着与合子胚相似的发育顺序发育’长成植株;另—条是小抱子多次分裂形成愈伤组织’
再由愈伤组织进—步器官分化’形成芽`根’最后形成完整植株°
花药和花粉离体培养的特点见下表。
花粉培养
花药培养
花粉
细胞培养
花药
培养对象
器官培养
操作水平
较花药培养难度更大
难易程度
较困难
能从每个花药中得到更多的单倍体,
无混倍现象
可得到单倍体’但也会得到二倍体或
多倍体等
能否得到单倍体
花粉分离_→花粉预处理→花粉培养—惨
花粉植株
外植体选择_→预处理→消毒→剥取花
药—→接种—卜诱导培养→花粉植株
基本步骤
]
●●●●●●●
■●●●●●●●●●●●●●●●●●●●●
)主要参考文献
~{
乙
h
●
[1]乐赛军花药和花粉的离体培养[J]生物学教学’
●
2012」:66—67
●
[2]刘庆昌吴国良植物细胞组织培养[M]北京:中国
农业大学出版社’2()()3:4_6’11l’136
培养实用技术[M]北京
[3|朱建华’彭士勇.植物组织培寻
巾国计量出版社’2()()2:1(}2.
[4]利容干王明全.植物组织培牙
武汉大学出版社’2()()4:12’12]
养
●
●
●
●
●
简明教程[M|武汉
●
●
●
●
GGGGGGGGGGGGGGIGGGGGGGGIGGGGGIGGGGIG 】■■●●●●●●●●●●●●●●●
叮
●
2J4
O
●
●
●
●
■
●
●
●
●
■
●
■
●
●
●
■
●
啡
■
●
●
●
●
●
`u′`u′
憋
第五篇生物技术与工程
■
尸
■■■■■
‖■■
■■…■=■■■■≡■■■■~■■■■■■■■■■q■■
■■■■■■→■■=■■■■
植物能否服收臆糖?
|
~
|
主动运输
被动运输
质子泵
同向转运
渗透或扩散
d
磷
▲
$
■■
出
◆
恐$
■
■
离子通道
Ⅸ+
∏+
胞间连鲤
喻
啡■
a
■
哦
凸
&
串
Ⅸ+』
细胞内
植物细胞间物质运输示意图
可以肯定地讲’植物是可以从外界吸收蔗糖并作为能源物质进
行利用的°
早在20世纪40年代’有人曾做过这样的实验:将标记的蔗糖溶
液直接喷洒到叶表面’剥去—小片叶表皮或角质层’蔗糖溶液就能
进人细胞’这与外植体从培养基中吸收蔗糖极其相似°
研究人员在叶片的韧皮部发现了—系列蔗糖运输载体’包括菠
菜蔗糖载体`马铃薯蔗糖载体StSUTl`车前草蔗糖-H十共运输载体
PmSUC2和2个拟南芥蔗糖运输载体SUCl和SUC2。
另有学者证明:在03g/mL蔗糖溶液(质量分数为30%)中’—
些植物细胞发生质壁分离后可自动复原。这些实验都充分表明植物
细胞可以吸收蔗糖。
28歹
■
●
■
●
巴
●
●
●
●
●
●
■
●
●
◆
毋
伯
●
小
●
●
●
◇
●
·
◆
●
●
■
◆
●
●
●
|‖□高中生物疑点通
此外,在高教版《植物生理学》关于质壁分离的论述和
《分子细胞生物学》有关物质跨膜运输的叙述中都认为:蔗
糖是可以进人植物或植物细胞中的。
但在高中生物学的植物质壁分离实验中’
由于所使用
的蔗糖溶液质量分数为30%’其浓度明显高于植物细胞液浓
度’又因质壁分离实验所用的时间较短’植物细胞吸收蔗糖
的速率是无法与单位时间水分的流失相比的’微乎其微的吸
收量不足以对细胞液渗透压造成影‖问°因此’认为质壁分离
过程中植物细胞不能吸收蔗糖是有特定前提条件的’即植物
在较高蔗糖浓度条件下且在较短时间内不能吸收蔗糖。
■●●●●●●●●●●■●●●●●●●
主要参考文献
●
[l]李江肃.谈植物对蔗糖的利用[J]生物学教学2()12’5:62—64
[2]李江肃.从高中生物学的两个实验谈植物对蔗糖郁
20l2’7:36—38.
[3]潘瑞炽.植物生理学[M]北京:高等教育出版社’2008:35
验谈植物对蔗糖的利用[J]中学生物教学’
●
4]韩贴仁分子细胞生物学[M].北京:高等教育出版社’2()()7:93
[
:
[5]杨世杰植物生理学[M]北京科学出版社’20()2:174
[6]巩振辉申书兴.植物组织培养[M|北京:化学工业出版社,2()(}7:31
~
~
GGGIGGG
●●●■●●●●●●■●●●●●■●●■●●●■●●●·■●●
·●●●●●●●●●■●●$●◆●●●●●■●●●●●●■●●●■■●◆●●●●●凸●●●●●■
●
2『6
●
●
●
●
‖
●
导
■
●
●
●
●
印
●
●
伯
●
●
●
啪
钮
●
●
■
●
■
哑
簿
磅
●
●
●
●
心
■
O
生物技术与
?
受“质壁分
离和复原实验”
的影响’不少师
生认为,蔗糖不
獭组织○囚
-…甲ˉ≡
|
|
—
懈
能被植物细胞吸
阳
收其实腾棚分罐墨磷霹辨}
子旱可以讲人棺
ˉ刁一…ˉ
Ⅵ以糯篡…人工种¥
|/Ⅷ
|
■
舱
子是可以进人植
物细胞的°在植
植物组织培养过程
物组织培养中’
培养基中的蔗糖浓度较低’而质壁分离实验中的蔗糖浓度很高’质壁分离的时间短’细
胞吸收蔗糖的量很少’在短时间内不足以影响细胞液的渗透压’
由此才出现质壁分离现
象。而在蔗糖浓度较低时’蔗糖以被动扩散的形式进人植物细胞’植物细胞内有蔗糖转
化酶’在高等植物蔗糖代谢中起着关键的作用。
大量实验表明’蔗糖能支持绝大多数植物离体培养物的旺盛生长’因此’作为植物
组织培养的标准碳源而被广泛应用°大多数合成培养基也以蔗糖作为唯_的碳源’原因
可能为以下三点:
(1)同样作为碳源和能源物质’蔗糖较葡萄糖能更好地维持培养基内的低渗环境。
配制相同质量分数的培养基’蔗糖形成的渗透压要明显低于葡萄糖’若采用葡萄糖作为
碳源’易使植物细胞脱水而生长不良。同时’植物细胞吸收蔗糖的速率要明显慢于吸收
葡萄糖的速率’所以蔗糖形成的渗透压可较长时间地保持相对稳定。
(2)在植物组织培养过程中’要特别注意防
仿
止培养基受到微生物的污染’微生物生长所需的最
适合的碳源是葡萄糖’因此’采用蔗糖作为培养基
的碳源’可在—定程度上减少微生物的污染°
(3)从能源供应角度讲’相同物质浓度下,
蔗糖比葡萄糖提供的能量更多。
)主要参考文献
|.………
—
[1]胡继飞.进行植物组织培养时
为什么要用蔗糖?{J].中学生
!
|
物教学20l3Z1;l38—l39
●
●
0
●●●
●●●●●●●●●●●●■●●■■■■■■■●→
-=
●●
2J7
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
心
●
●
■
●
●
●
●
心
●
●
G
G
|‖□高中生物疑点通
~
‖
』
■
I
=■■■■■=■■■■■■
】■■=■■
=
】
0■■
■■
■■■■
■■■■空■■■■■■
】■■
■■=■■
■■■■
□=■-■■
■■■==■=■■■■=■■■■■■■■■=■■■===■■■■■■■■=■■■■■■■■■0■■■■■■■
■
杂聊绷胞?
植糊体绷胞杂交姐侧蹦选出
=≈■=■■乙≡中■■→■=■■■■■■■■=
■■
…■■■■
■■■====■=■■■
■■■■=■=■■=…乙=■■=■■=■■…■■…=■■■■■■■■=■■■…■■■■■■■■===
尸
‖
原生质体间的融合是随机的’两个不同亲本的原生质体混合后经诱导融合’实际
上得到的是各种原生质体的混合物’包括异核体
嚼
…碾q
(AB型)、同核体(AA和BB)以及未发生融合
.≡闰.
"……』……"
凹
孵h
,巴
』川:瞧嚣侧:鹏蹦搁翼γ
那ˉ
■
\
`
…雨嚼睁j..
▲
因此’需要通过筛选获得异核体’即杂种细胞。
筛选杂种细胞的常用方法有:
(
{)互补选择法
植物体细胞杂交显微照片
这种方法的原理是利用现成的或诱发产生的各
种缺陷型或抗性型的突变体细胞作为融合实验的材料。由于突变体均不能在特定的选择性
培养基上生长’而能在该培养基上正常生长的是互补的杂种细胞’因此可将其筛选出来°
(2)机械选择法
利用两种原生质体的某些可见标志(如形态、颜色等差异)’对融合产物进行鉴
q
别,筛选出杂种细胞进行单独培养。对于
在形态、颜色上难以区分的原生质体融合
形成的异核体’可利用不同荧光素分别标
记两亲本的原生质体,然后进行诱导融
合,在荧光显微镜下选择同时带有两种荧
光标记的杂种细胞。
(3)组织培养筛选法
将“植物细胞对培养基成分和培养条
件的要求与反应不同’,作为选择杂种细胞
的依据’利用这种特性或人为地造成杂种
细胞生长和分化能力的差异来进行杂种细
胞的选择。
●●●
)主要参考文献
■
●
·
●
●
●
●
●
●
●
●
[1]苏杜林植物体细胞杂交技术的几点疑问
解析[J|生物学教学,2017(2):78—79.
[2]殷红细胞工程[M]北京:化学工业出版
社’2006:101_114ˉ
{
|卵匡生胸摧…M|毗阳;辽宁大判』
版社20()6:56—57ˉ
[4]柳俊’谢从华植物细胞工程[M].2版北京
高等教育出版社’2011:209—213.
q
:
|
β|伞磷…′糊胞响懒…走|川#
物学教学’2009’34(2):67—68.
●
.……………………………………….F.
●
■
●
■
2『J
■
●
●
■
●
●
●
●
●
●
●
●
‖
●
●
●
●
==■===■≡=■■=■■■■======■≈=■====■===============■=■≡=■≈=■=====■===≈===■=■■】
植物体绷胞杂交获得的杂种植株呵育码?
三三===≈■牢■■=■=■=■==■~=.ˉ==■■====≈==■==≈==■≈=====一ˉ===≡≈≈■==■■===■=====..=】
单从理论上分析’杂种植株是否可
育’取决于其能不能正常进行减数分
裂’产生正常的生殖细胞’如若可以则
是可育的’否则就是不育的。
例如’两种亲本细胞都是二倍体’
杂种细胞就含有双亲细胞的各两个染色
体组’能够进行正常的减数分裂’产生
正常配子且是可育的。如果是两种植物
的花粉细胞杂交的杂种植株’
由于染色
体不能正常联会形成正常配子’就是不
育的’但若用秋水仙素处理’使染色体
数目加倍’就能正常进行减数分裂’产
生正常配子而变得可育。而现实的情况
是’杂种植株的形成过程中往往会发生
细胞核或染色体丢失等现象’大多不能
形成正常配子且是不育的。
钨.:}率丫
′6君bq‘坠原生质体
赠啥√~ˉˉ
●
|糯.撵
质体融合
≤。》]…
◎/|翻瓣允
哮】—
}
r
~
Ⅵ
撼
嚼
"
帖
扔
噬
I
唾墨]镭"″
异源四倍体
植物体细胞杂交技术流程
●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●●
可
|
』
主要参考文献
●
●
[1]苏杜林.植物体细胞杂交技术的几点疑问解析[J]生物学教学,2017(2):78—79
[2]殷红细胞工程[M]北京:化学工业出版社’2006:101—114.
[3]刘莹.生物技术概论[M].沈阳辽宁大学出版社’2006:56_57~
[4]柳俊谢从华ˉ植物细胞工程[M]2版.北京高等教育出版社’20l1:209—21a
:
[5]李能国谈杂种细胞的筛选和鉴定[J].生物学教学’2009,34(2):67—68.
●
●
●
●
●
●
■●■■守■●●◆■●●●■●●●●●●●●■●●●●●●●●●●●●●●●●●●●
■●●●●●●●●■■●■■■■■■=■■■====≡7
■
●●●●■●●●●
2J9
·
■
●
●
●
I
G
IG
●
◆
们
●
●
飞
^
、
飞
~
~
丫
、
|‖□高中生物疑点逾
型?
~~~~~~
l侧删定仇绷‖滁交后杂|j‖酬Ⅷ染色|!『数目{‖基|βR~
~~
■
′|
植物体细胞杂交即两个细
胞融合成—个细胞’如果不发
生细胞核或染色体的丢失’则
不管染色体数、基因型、基因
组数还是染色体组数都是两者
之和’属于染色体变异。
例如’某植物细胞含2″条
染色体’
2个染色体组’基因
型为AαBb;另_植物细胞含有
2″′条染色体’
2个染色体组’
基因型为ccDα。则杂种植株细
胞含染色体2″+2加条’含染色
体组4个’属于四倍体’其基
因型为dαBbcCDα。
◎蜒O
普通小麦细胞
普通小麦原生质
(6∩≡42)
(6∩=42)
正在融
合的原
生质体
o幽O
|=
再生出
◎
■
延
黑麦原生质体
(2∩=|4)
黑麦质体
(2∩≡|4)
q
杂种小黑麦细胞
(8∩=56)
小黑麦幼苗
(8门≡56)
愈伤组织
(8∩=56)
通过植物体细胞杂交技术培育小黑麦过程示意图
●●●
●●●●●●●●●●●●●●●O●●●●●●●●●●●●●●●●●●●●
■
●
●
●
●
●
●
主要参考文献
[l]苏杜林.植物体细胞杂交技术的几点疑问解析[J]生物学教
学’2()17(2):78—79.
[2]殷红细胞工程[M].北京:化学工业出版社’2006:101—1l4.
●
●
●
[3]刘莹.生物技术概论[M].沈阳辽宁大学出版社,2006:56—57.
|4|柳俊谢从华ˉ植物细胞工程[M]2版.北京高等教育出版社’
2011:209—213.
[5]李能国.谈杂种细胞的筛选和鉴定[J|.生物学教学’2009’
34(2):67—68.
■
可
●
■
G
GGG
●●■●●■●●Q●
■●●
●●●●●●●●●●■●■●●●■●●●●●●●●●●●●●●●●■●
●●●●●●●●●
●
290
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
砂
■
■
Ⅷ赋Ⅷ′`√侧√仍蛔′『
霹
第五篇生物技术与工程
▲
=】
■■p
■■■■=■■==■■■
■■■
■■■■==■■‖
■■■===■■■→■■■0■■==■■■■≡■■=■■
■■■■■■■■=■■
■■『■…==|■■≡≡■■■■■二
扼删备所刚的B绷胞是浆绷胞隅?
==≈=■≈■■■■==■■■■■=~■■■0■■乙■■===~===→■■■■■≈≡==■■■■■■■■≈■==■■■■■■■■
要想知道答案’首先要了解哺乳动物B细胞的发育过程:祖B细胞
ˉ→前B细胞ˉ→未成熟B细胞+成熟B细胞→活化B细胞—萨浆细胞。可见’
B细胞应该包括浆细胞。
用于单抗制备的是成熟B细胞还是浆细胞呢?答案是两者都不是。
成熟B细胞未接受抗原刺激’不能产生抗体’但是浆细胞也不适用
于细胞融合。有研究证实’小鼠注射抗原后7~8d抗体达到高峰’也就
是7~8d后浆细胞达到高峰’但是取此时的细胞和骨髓瘤细胞融合效率
很低。若取免疫后3d的细胞’则融合的效率最高°而此时的B细胞正处
于从成熟B细胞向浆细胞分化的时期’也就是活化B细胞时期。所以,
用于细胞融合的是接受过抗原刺激的活化B细胞。
免疫小鼠
`\◆`
●
、
《
|
●●●
·8··
脾B淋巴细胞
小鼠免疫示意图
.r
匹
~
中枢淋巴器官
成熟的
共同淋巴
前体细胞
●
钻
(主…酞`……
[1]郑萍占国忠与‘‘单克隆抗体’’
●
相关问题的解答[J].生物学教
●
学’2014(6):63—64.
●●●●●凸●●●●●●■■■■■■●●●●●●●●●●
●●●●●●●●●●·●
B细胞与T细胞的发育过程
●
●●
29′
仿
■
●
●0
|‖■高中生物疑点通
b
F
■■■■■■==■■■■■■■■■■
二二
■■■
■■==■■■■■
■■■■■■■■■■■■■■■■===■=■■■■■■■■■=0■■■■■■■■=乙=■■=≈■■■■~■■■■■
杂交瘤绷胞是如侧被腻选出来的?
~~
~
-■■■■■■■■■=■■■=0■■■■■■≡===■■■■←=■■=≡=■■
■■■=■■=■■■■■=·■■■■■■■==■■=■■
■■0
■■■■■■=■■■■
细胞培养
α,:霜霍
\
\
′
骨髓瘤细胞
争…
0
『呻0
蹄
尸
[
从脾脏提取
B淋巴细胞
筛选的杂交瘤细胞
行大量克隆化培养,
提取抗体冷冻储存
纵
进
并
2培养杂交瘤细胞并
进行特定抗体检测
3~选择性克隆并再次
进行特定抗体检测
|.用骨髓瘤细胞和B淋巴细胞产生杂交瘤细胞
单克隆抗体制备过程
■
在制备单抗的过程中’融合的细胞会有三大类: BˉB、瘤ˉ瘤和杂交瘤细胞。第_
类细胞在体外培养的条件下’因为无法无限增殖’最终死亡。因此’筛选的关键是限制
第二类细胞的增殖。科学家在设计实验时’已经考虑到这方面问题’所以他们选择的瘤
细胞是有遗传缺陷的,即胸腺喀陡核昔激酶(TK—)缺陷或者次黄膘吟磷酸核昔转移酶
(HGPRTˉ)缺陷。
DNA在复制过程中’所需的核昔酸的来源有两个途径:
∩
酸
禾
基
糖
氨
径
途
成
△
□
全
核昔酸—>0‖∧
补救合
成途径
核昔酸
及其前体
■
■
‖‖p
DNA复制过程中核苍酸的合成途径
2”
●●●
●●●
●●■■
●
●●
●
●
露
第五篇生物技术与工程
全合成途径(也称起始合成途径)和补救合成途径
(也称中间合成途径)。正常细胞内两种途径都具备。
全合成途径由氨基酸和其他小分子化合物合成核昔酸’
氨基谍吟(aminopterin’A)可以抑制其合成。补救合
成途径需两种酶:胸腺嘻陡核昔激酶(TK)和次黄膘
吟磷酸核昔转移酶(HGPRT)’其次还需要次黄漂吟
(hypoxanthine’H)及胸腺喀陡核昔(thymidine’ T)作
为原料。正常细胞有这两种酶’而TK—和HGPRT 缺乏其中
之一不能通过补救合成途径合成核昔酸。
加人次黄漂吟(H)`氨基谍吟(A)及胸腺喀陡核
昔(T)的培养基称HAT培养基。在这种培养基上TK—和
HGPRTˉ骨髓瘤细胞全合成途径被A阻断’而缺乏TK或者
HGPRT又不能进行补救合成途径’因此无法增殖’最终死
亡。而杂交瘤细胞具备B细胞的遗传物质’培养基中又加
人了H和T’可以进行补救合成°同时’又因为具有瘤细
胞的遗传物质’可以无限增殖。因此’最终在HAT培养基
上只有杂交瘤细胞可以增殖’其他细胞全部死亡。所以’
HAT筛选培养基就可以将杂交瘤细胞筛选出来。
/≡=]
●●●●●●●●●●
●●●●●●●●●●●●●●●●●●●Q●●●●●●■
q
[1]郑萍占国忠.与“单克隆抗体”相关问题的解答|J]
教学’2()14(6):63—64
[2]顾文波单克隆抗体制备过程中的筛选问题[J].中
教学2011,10:32—33.
[3]牢东照’冯妙丹.对人教版高中《现代生物科技》
有关问题的解答[J].生物学教学’2()11(1):43_44.
《现代生物科技》
生物学
●
●
学生物
●
●
教材中
■●●●●●●■●●●●●●●●●●●●■●
●
●
■
■
●
~
●
●
●
●
◆
●
●
●
■
●
■
●
●
●
●
●
●
●
■
●
●
●
●
■
■
●
●
●
●
●
◆
●
●
●
咕
●
■
293
●
●
●
●
●
●
●
●
●
●
●
●
◆
●
●
■
●
曲
●
●
●
●
●
●
◆
■
■
●
■
●
、
|‖□高中生物疑点通
■
■
■
■
西■■■
■■=■■■=■■■■■■■■■■■■■■■
■■■■■■■■■=■■■■■■■■■■■■■■■■■■■
■■==■■=■■■■=■■■■■■■h■==■■■≈■■■■■■■■■=■
过程狗侧进行面次专一扼体检测?
{Ⅶ|隐
■
■
■
■
■审→=====■■==■■…≈■≡=====■≈■■■=======亩==■====■=向宇=■=■■=■■≈→===P
√
给小鼠注射抗原
○○○○
○○○
○○○○
变异的小鼠骨髓瘤细
无法在选择培养基上
。
忙
Ⅲ
划
色)
混合,令
●
●
}◎
◎}。
细胞融合
○
}撼…
固
/
『
\
未融合细胞
(○●●
)死亡
融合细胞
(○○)生长
|………
回
≈
≈
≈
巳
≈
≈
◎
≈
≈
≈
≈
≈
检测每个子赠中是否存在对应于抗凰日嗽体
单克隆抗体制备过程
294
p●
巡训`则′『
、
戳
飞
第五篇生物技术与工程
单抗制备过程中’从免疫小鼠的脾中获得的脾细胞包含
多种B细胞它们产生的是不同的抗体。为了得到目标抗体’
必然要进行检测’这就是所谓的“专—抗体检验” 。这是第
_次“专_抗体检验”
。
在筛选过程中用的是多孔细胞培养板’每个孔中的杂交
瘤细胞不止—个’因此’阳性孔中的细胞除了含有分泌需要
的特异性抗体的细胞外’还可能含有分泌其他抗体的细胞’
也可能含有不分泌抗体的细胞’所以不能直接把阳性孔的细
胞用以生产单克隆抗体。必须要进行第二次筛选’这个步骤
称为“杂交瘤细胞的克隆化” 。通常用“有限稀释法’,来选
择。将杂交瘤细胞稀释’用多孔细胞培养板培养’使每孔细
胞不超过_个’通过培养让其增殖。接下来就要进行第二次
“专—抗体检验” 。检测各孔上清液中细胞分泌的抗体(常
用酶联免疫吸附试验法)’那些上清液可与特定抗原结合的
培养孔为阳性孔。阳性孔中的细胞还不能保证是来自单个细
胞’挑选阳性孔的细胞继续进行有限稀释’_般需进行3~4
次’直至确信每个孔中增殖的细胞均为单克隆细胞°
)主要参考文献
[1]郑萍,占国忠.与“单克隆抗体,’相关问题的解答[J|生物学
教学2014(6):63—64.
‖!
[2]顾文波单克隆抗体制备过程中的筛选问题[J].中学生物教
学’2011’1():32_33~
[3]窖东照,冯妙丹.对人教版高中《现代生物科技》教材中有
关问题的解答[J].生物学教学’2()11(1):43—44.
●
●
●
■
●
●
●
●
●●●●●●●●●●●●●●■■●●●●●●●■0
■
■●●●●●●●●●●●●■●●●●
●●●●●●●●●●●●●●●●
295
●
●●
●●●●
●●●●
●●●●
●●山●
‖
‖
‖
』
●
●
●
●
●
●
●
岔
●
●
●
砂
●
●
■
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
◆
●
■
●
●
●
●
●
●
●
●
●
●
●
●
侣
●
●
●
●
●
●
●
●
●
●
●
●
G
G
G
|‖□高中生物疑点通
‖
←■■■■■■=…■=■===■■■■■宇=■=■=■→==~≈====■=■■
帛隆只产生一种特异性抗体?
~
~~
~
问
』
月
闪
』
ˉ
■
Ⅶ
川
卢
●
‖
川
川
‖
刁
』
|
■=====■←=→=========→■■====■■==~===■■=■
(B0R)
浆细胞
●
o
●
记忆B细胞
B细胞的增殖与分化
人教版高中生物选修3 “动物细胞融合与单克隆抗体”—节中
在‘‘动物在免疫反应的过程中’体内产生的特异性抗体种类可多达
百万种以上’但每个B细胞只分泌—种特异性抗体’’—句话中两次
提及特异性抗体’为何反复提及特异性抗体?其中“特异性’’_词
能否省略?
296
●
●
●
●
●
●
●
■
●
\
戳
Ⅵ
第五篇生物技术与工程
↑. B细胞在骨髓中的发育机制确保旦只表达-种抗原特异
性受体
就二倍体而言’细胞基因组中通常存在2个可以重排的抗体相关等
位基因。_般情况下’特定基因的等位基因中只有_个能够表达’称为
等位基因排斥(allelicexclusion)’这确保了_个B细胞只表达—种抗原
特异性受体。
2源自同-个初始B细胞的子细胞所台成的抗体不改变具
结台抗原的特异性
就—个初始B细胞而言’如果它有机会增殖’在其_生中能产生许
多子细胞。源自同—个初始B细胞克隆的子细胞产生的抗体可能存在差
异’但都不改变其抗原结合的特异性°即使经过类别转换形成了不同类
型的抗体’这些抗体结合抗原的特异性仍然相同。因此’—个初始B细
胞及其产生的子细胞中只产生结合同—种抗原决定簇的特异性抗体。
可见’教材“—个B细胞只分泌—种特异性抗体’’的描述中“特异
性”_词有其特定意义’是不能省略的。
)主要参考文献].…..…………………...
[1|汪兴泽’王霞.为何—个B细胞克隆只产生_种特
异性抗体[J].生物学通报2015(7):l2—13.
[2]JanewayCA’TraversP’WalportM,etal.免疫生
物学[M].钱曼’马瑞等译.5版ˉ北京:科学出版
社,2008:273—415ˉ
[3]周光炎免疫学原理[M]上海:上海科学技术文献
出版社,2008:37—189.
$
●
●
●
●
●
●
●
●
●
●
●
●
●
●●●●●■●●●●■●■■■■■=■
●●●●■●●●●●●●●■■●●●●●●
●●●●●●■●●●●●●●●
297
●
●
●
●
●
●
■
●
●
●
■
●
●
●
●
I
|‖□高中生物疑点通
气】
=】
~~
~
~
~
~~~~~~~
~~~~~~~~~~
~~~~~
~~~~~~~
~~~
~~~~~~~~~~~~
胞徘受体绷胞?
啊要选择MⅡ期咖‖母绷
||‖||驯『
宇
刮
●
区
十
厂
‖
■
■
■
尸
』
【
一=≡■■■■■======■===→=■→■■■=
~~~~
~~~~~~
~~~~~~~~~~~~~~~~~~~~~~~~~
罐
}
细胞核移植技术中能用作受体
莆
k
,
细胞的通常有MⅡ期卵母细胞和受
精卵(合子)
。
厂
沁雪
厂
早期核移植技术中常用受精
MII
蹦嚣
瓣
弓筋
dp
GV
MI
Mll
卵’后来基本上用MⅡ期卵母细胞
几个时期的卵母细胞照片
取代了受精卵’主要因为两者的细
胞质环境不同。
有人认为重组需要的因子存在于MI期卵母细胞的胞质中’而在原核形成时这些因
子已被降解或用光’因此,原核扩张后受精卵去核可弓|起胞质中重组因子缺乏。
成熟促进因子(MPF)是卵母细胞细胞质中重要的胞质影‖问因子,MPF的活性在
卵母细胞减数分裂的MI期和MⅡ期达到最高’受精或激活后’MPF迅速灭活’因此’
MⅡ期卵母细胞中MPF活性高’而受精卵中MPF活性低°
MPF水平的高低可影响供体核染色质的状态和复制。MⅡ期卵母细胞细胞核、细胞
质已成熟’而MI卵母细胞细胞核`细胞质尚未成熟’其细胞质不能支持胚胎的全程发
育’因此’尽管MI期卵母细胞MPF活性也高’但不能用作受体卵母细胞。
也有人认为用去核合子作受体’可能由于合子去核时—些早期发育必需的因子随原
核的去除而被去掉了’而使去核受精卵缺乏发育能力。
因此’
目前广泛采用MⅡ期卵母细胞作受体。
‖
「
▲
)主要参考文献h….….…….…………
●●
●
[1]王国红高中生物学教学中几个疑问的探析[J}ˉ生
物学教学’2015(8):7(广71.
[2]朱正威’赵占良现代生物科技专题教师教学用书
[M]2版.北京:人民教育出版社’2007.
■
●
●
●
GG
IGGGGGGIGGGGG
GGGGIGGGGGGGGGGGGGIGGGGGGGGGGGII
GGGGG
29『
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
bβ
`
第五篇生物技术与工程
】
F
■■■■■=■■■■=■■■≈=■■=■■■
■■=■■=■■
■■■■=■■■
■■■■■■■■■■■■=■■■■==■■0
■■■■■■■■■■■
■■
精子获能是怎样一个过程?
=■■■=■■■
■■■■■■■■■■■≡■■■■=■≡==■■■■=
芭←=■■■■■■=■●■
■■■■=
■■■■■■=
刚排出的精子,必须在雌性生殖
道内经历_段成熟过程’才能获得受
精能力。l95l年’张明觉和奥斯汀在
研究体外受精时分别发现了这—现
象。l952年’奥斯汀将这—现象称为
精子获能。_般认为’获能的主要事
件是除去或改变精子质膜的稳定因子
或保护物质’使精子质膜对特殊的受
精环境非常敏感’尤其对卵子更为敏
感。目前’虽然能在体外使各种‖甫乳
动物的精子获能’但在自然情况下’
精子获能发生于雌性生殖道内’并
受自主神经和激素的调控。研究表
明’在雌性生殖道内’精子获能没
有种属特异性’因为_种动物精子
能够在其他种类动物的雌性生殖道
内获能。
l958年’张明觉发现了精子获能
是_个可逆过程’获能精子—且与精
液和附辜液接触’又可去获能°如果
把去获能的精子转移到雌性生殖道
内’并使之停留_段时间’精子又可
重新获能’这表明精液和附翠液中存
在着—种去获能因子。
卵母细胞
当精子穿越生殖道要经历精子获能的过程
{主菱…`……
●
[1」殷宁关于哺乳动物生殖细胞的
!
发生和受精的几个问题[J].生物
|
●
●
●
学教学’2(}l2(1l):58—6O
●
●
●■■■●
●
●●●●●●●●●●●●●●■■■■■■■丁■■
=■
299
●
●
●
●
●
●
●
●
●
●
◇
●
●
●
●
●
■
●
∩
●
●
●
●
GG
●
●
●
●
●
●
●
●
■
■
■
II
|‖□高中生物疑点通
卵泡在卵巢中的发育过程
卵泡由卵母细胞和卵泡细胞组成’卵母细胞随着卵泡的发育而发育。卵泡数量在女
性的_生中变化很大,新生儿两侧卵巢有70万~200万个原始卵泡’在青春期约有4万个’
至40~50岁时仅剩几百个。在胎儿期和儿童期可偶见少量卵泡生长’但都不能发育成熟。
自青春期开始’每个月经周期有若干个卵泡开始生长发育’但通常只有l个卵泡成熟并排
出l个次级卵母细胞。在女子_生中’有30~40年生育期’两侧卵巢仅有400~500个卵泡发
育成熟’其余卵泡均于不同年龄先后退化为闭锁卵泡°退化时’卵泡塌陷’并被结缔组
织和血管分隔成分散的细胞团索’称间质腺°人类间质腺不发达’猫和啮齿动物卵巢中
的间质腺较多’有分泌雌激素的功能。
300
p
、
蹿
第五篇生物技术与工程
卵泡的发盲
卵子的发盲
出牛之前
~ 出
原始卵泡
卵原细胞
增殖
卵母
细滤
)
胞
裂
细
分
母
数
卵
减
级
始
初
开
(
~
溯
v
青春期到更年期
恿
初级卵母细胞
(未改变)
甲
‖
初级卵泡
粒层细胞
鱼
减数第-次分裂
完成
次级卵泡
粒层细
透明带
卵泡膜
■
●
次级卵母细胞
包
(退化)
泡
泡
卵
卵
.●
次嚼掇
卖/\v′
]果没有
(.{; ′
毛
排
卵
~
蔑
‘
Ⅷ
≡
一
_
←
陕
≥
厂
黎
式
′
溶
飞占
骡
厂
↑
飞
ˉ
严
·
`
巴
盯矽
台子
↓
胚胎
卵泡及卵子发育过程
30′
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
仆
●
●
价
●
●
●
●
●
●
●
●
●
●
●
●
●
白
●
●
●
●
●
●
●
●
●
●
●
●
●
|‖□高中生物疑点通
卵泡的发育是_个连续的过程’根据其发育程度的不同’—般可
分为原始卵泡`生长卵泡(初级卵泡和次级卵泡)、成熟卵泡几个阶
段。原始卵泡位于卵巢的皮质浅部’体积小’数量多。卵泡中央有—
个初级卵母细胞’周围为单层扁平的卵泡细胞。初级卵母细胞是在胚
胎时期由卵原细胞分裂分化而成’随即进人减数第—次分裂’并长期
停滞于分裂前期可达l2~50年不等’直至排卵前才完成减数第—次分
裂。卵泡细胞对卵母细胞具有支持和提供营养的作用°在垂体分泌的
促卵泡激素的影响下’初级卵母细胞体积增大,卵泡细胞的结构由单
层扁平变为立方体或柱状’随之细胞增殖成5~6层结构。初级卵泡早
期’在卵母细胞和卵泡细胞之间出现—层嗜酸性膜’称为透明带。电
镜下,可见初级卵母细胞的微绒毛和卵泡细胞的突起伸人透明带’卵
泡细胞的长突起可穿越透明带与卵母细胞质膜接触。这样的结构有利
于卵泡细胞和卵母细胞进行物质交换和信息交流。随着卵泡的发育’
卵泡细胞间出现_些含液体的腔隙’并逐渐合成_个半月形的腔’称
为卵泡腔。卵母细胞及其周围的卵泡细胞突人卵泡腔中’形成卵丘。
紧贴透明带的—层柱状卵泡细胞呈放射状排列’称为放射冠。成熟卵
泡是卵泡发育的最后阶段。在腺垂体分泌的黄体生成素(LH)影响
下’卵泡液激增,卵泡细胞直径可达2cm’并向卵巢表面突出。
=毒寞瞒`……
●
.
[1]李增光庄玉珠与“胚胎工程’,有
!
巴
关的几个问题[J].生物学教学’
|
●
■
●
2()l1(]):77_78.
●●●●●●●●●●●●●●●■■■■■丁=■≡≡■ˉ
●
●●●■e●■●■●∏■■
●
■●
。302
●
●
●
●●
●●●
G●●●
●●●●●●●◆●■
●●●●●●●●●●
●●●●●●●●●
●●●●●●●●●●
●●●●●●●●●●
●
■
●
●
●
●
●
●
GGGGG
GNGG
GG
GG
●
●
●
●
●
●
●
●
●
●
●
第五篇生物技术与工程
≡
======■=■■■■=■==】
激活的?
=====■≡→======■=】
在卵子表面有与精子结合
的表面成分’称为精子受体;
而在精子表面有与卵子结合的
表面成分’称为卵子结合蛋
白°精子与卵子之间的种属特
异性黍占附和结合就是通过卵子
结合蛋白和精子受体相互作用
实现的。在多数情况下’透明
带是阻止种间受精的主要障
精子与卵子受精显微照片
碍。获能精子在穿过透明带前
与透明带表面首先发生初级识别或_级识别’这是由透明带表面的初级精子受体和精子
质膜表面的初级卵子结合蛋白相互作用而完成的。
受精前精子和卵子的代谢处于相对‘‘休眠”的状态’受精后精卵之间相互激活’启
动新个体的发育°其实’受精前‘‘休眠’,的卵子并非真正处于静止状态’其中期纺锤体
始终处于聚合和解聚的动态平衡之中’其他许多代谢过程也十分旺盛。在精子胞质中存
在激活卵子的物质’即精子因子’具有在精卵质膜融合后释放而活化卵子的功能。精子
因子具有组织特异性’是精子特有的°精子进人卵子后’高致密度的精核染色质受卵子
内去致密因子激发而去致密’最终形成雄原核’这也是受精的关键步骤之—°
彰(奎…Ⅷ
|
u]殿宁关丁哺乳动物生撼细胞
物生殖细胞
●●●●
的
}|鳃荆‖鸿|』}生
●
●●●●●●■●■●
●●●●■●●●●●●●■■■■■7■■■■===
物
;
●●●
M3
●
趣
′
、
‖飞
…
\
|‖口高中生物疑点通
;‖尝Ⅺ
=
匡
"榴‖动|啊受精过脚隐
~
~~
~
~
~
~
~
匀
‖
巳
‖
川
‖
‖
川
~
~|
|
|
■
!潍
■
巳c
田
e耗
≥
弓
吧除
●
唾
【
c
硅
7
f
q
精子进入卵细胞过程示意图
《人体及动物生理学》对该过程描述为:当精子与卵黄膜接触时’立即被卵细胞的
微绒毛牢牢抓住’随着精子外膜和卵黄膜的相互融合’
“逐渐将精子的头和尾全部吞进
卵细胞内”
。
姚泰主编的《生理学》
则有“进人卵细胞的精子尾
部退化”的描述。
据此认为哺乳动物在受
精作用进行时’精子的尾部
是进人卵细胞的°
)主要参考文献l….……..……………·
●
●
●
[1]陈国庆有关减数分裂和受精作用的几点释疑[J].
生物学教学’2016(3):7O
[2]王吩,左明雪人体及动物生理学[M]4版北京高
等教育出版社’2015.
[3]姚泰生理学[M].6版北京:人民卫生出版社’2004.
●
●
●
●
●
●
G
GGGGGGGGGGGGGGGGGGGGGGGGGGGGGIIIIIGI
GGGGGGGGGGGGGGG GGI
G
304
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
帕
●
●
●
●
●
●
●
●
●
0
u
第五篇生物技术与工程
h
■
==■■■■■■■■■■■■■■■■■■■=■■■■■■■■■■■■■■■==■■■■■===≈→=■■■■=0■■
■■■■■■■■■■■■■■■=■■■■■■■■=■■
透‖β带是什么?有侧作佣?
■■
■■=■■■■■■■=■■■
■■■■■■■■■■■■=≡■==■■■■■■■…■■■=■●…=■■■
■■■■■■■■■■==■■■==■■
】■■=■■■=q■■==■■≡
次级卵母细
受精作用示意图
透明带在大多数动物中是由卵母细胞分泌形成的’由ZP1`ZP2`ZP3三种糖蛋白组
成。ZP2`ZP3主要负责精子与透明带的结合和诱发顶体反应,其存在于整个透明带。
在小鼠中’ ZPl主要发挥结构支撑功能’以及把ZP2`ZP3细丝横向连接起来’构成
透明带三维构象。
透明带保护脆弱的卵子和胚胎不受外界伤害’在体内’透明带对着床前的胚胎是必
需的。没有透明带’胚胎的分裂球就会彼此分离或黍占附于其他胚胎的分裂球上’使其丧
失个体独立性,甚至黍占附于输卵管上皮而导
|≡…`…
|
[q殷宁美于哺乳动输生殖
b主…文献`…………
致胚胎死亡.
对于进人雌性生殖道中的精子来说,透
投宁关干哺乳动物生殖细胞的!
明带是在卵子受精前必须穿越的最后_道物
发生和受精的几个问题[J]生物;
8
理屏障。
学教学’2012(11):58—60.
=二
■
■
■
■●■●●
学教学’2012(11):58—6()
●
●●●●●●●●●●●●●●●■●■■●●●■■=●■■
305
··
●●●
●●●
●●
●●●
●●●●●●●
●●●Q●●●
●■
●●●●
●
●
■
●
■
●
●
●
●
●
●
●
●
●
●
●
●
仔
●
●
"‰^u′闷′`u′v
|0口高中生物疑点通
在正常情况下’雌性
动物性成熟后’在没有配
种或配种却没有受精的情
况下’发情呈周期性变
化’这种周期性的变化称
胚胎移植前需要对供、受体雌性动物进行同期发情处理
为发情周期。根据卵巢的
机能和形态变化’发情周期可以分为两个时期’即卵泡期和黄体期’发情周期实质上就
是卵泡期和黄体期的交替循环。
在整个发情周期中’卵泡期持续的时间较短’黄体期持续的时间较长。相对含呈较
高的孕激素可以抑制发情’_旦孕激素水平降到低限’卵泡即开始迅速生长发育.所以
同期发情的中心问题是控制黄体期的时间’并在合适的时间同时终」k黄体期°
控制黄体期的时间’
目前主要有两种方法:_种是使用孕激素’另_种是使用前列
腺素。使用孕激素(如孕酮及其类似物)的目的在于使Ⅲ液中的孕激素保持—定水平’
以抑制卵巢中卵泡的生长发育和母畜发情’人为延长黄体期。在这种情况下’即使卵巢
中的黄体已经消失’内源激素(孕酮等)水平下降’但由于外源激素仍在起作用’母畜
不会发情’这就等于延长了发情周期’推迟了发情时间°如果在合适的时间同时停用外
源激素’便会使被处理的母畜实现同期发情。使用前列腺素(如前列腺素F2α及其类似
物)的目的是溶解黄体降低孕酮水平’人
为终止黄体期’促进脑下垂体促性腺激素
的释放’使母畜提前排卵’提前发情。这
种方法通过缩短黄体期’使_群母畜的黄
体期同时结束’同样也可以达到同期发情
的目的。
)主要参考文献‖…………
|
[1|张玉明.同期发情[J]生物学教学’
20()9(12):65—66.
[2]殷先兵同期发情处理的万法[J].
生物学教学’2011(6):67—68.
●
●
●
●
●
●
●
●
GGG
GG
GGGGGGGGGGGGGGGGGGGI
GGGGGI
306
慰
第五篇生物技术与工程
可
=≈
移植陋胎?
□
□
^坠】‖■
坷可■【
』
l
~
~
■
粉
■
潭
伯…
~~
′
Ⅱ
■
■
砂
』
『
厉
翻
→
渔
『
■
■
■
D
(a)
(b)
(c)
(d)
胚胎发育过程
307
■
●
●
°
●
●
●
●
●
|‖□高中生物疑点逾
免疫系统的重要功能之_是识别自己’排除异己。异体胚胎在受
体子宫内就相当于“移植的器官”或“肿瘤”
’因此外来胚胎必须躲
过受体免疫系统的防卫功能才能在受体中存活。母体为什么不会排斥
外来移植胚胎?
是由于母体将妊娠子宫当作免疫豁免区°着床是指囊胚与母体子
宫内膜(蜕膜)组织建立内在联系的过程。该过程中’半同种异源的
胚胎与母体子宫和Ⅲ源性细胞直接相连’但是母体免疫系统对胚胎的
排斥在大多数情况下被目前尚不明确的机制所抑制。
目前提出的解释子宫处于免疫豁免状态的机制主要包括:
(l)滋养层的机械屏障作用。
(2)妊娠期间母体的免疫功能受到了—定的抑制。
(3)滋养层中缺乏MHCI类分子。
(4)细胞因子功能的转换。
(5)由Fas/FasL系统介导的局部免疫抑制。FasL是能够结合到死
亡受体TNFRSF6/FAS的细胞因子’在T细胞发育中介导由细胞毒性引
起的凋亡°
|≡…`……
0
一
[1]罗诗铝’王小芳.母体为什么不会
排斥外来移植胚胎[J]中学生物
●
●
●
教学’2()15’Z1:89—90.
●■●
●
●
●
●
●
●
●
■
●
●
●
●
●
■
●
●
●
●
●
甲
■
■
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
∏
●
30J
抄
●
●
■
·
■
■
■
●
●
●
●
●
●
■
●
●
限制酶的识别序列
~~_\
G∧∧丁丁C
|翻__
d
O
DN∧
〔丁丁∧∧G
|
限制酶
限制酶对DN∧进行
切割
…
婶
●
加入外源ON∧
两个或多个片段
靠碱基配对结合
在_起
@|而
。AA∏c.
斋G|
〔丁丁∧∧=C
—-二_=■≈
∧∧丁丁〔|
~
D‖∧连接酶将配对后的
链进行连接
V
ON∧连接酶
@|
蹦口慎
_
_.
鹰
目{≡ˉ~
…宗≡h
q宙—
网|
■
重组DN∧分子
基因工程的操作步骤
309
●
●
●
●
●
矽
●
●
仆
●
●
●
●
●
●
■
●
●
●
●
●
●
←
■
■
GG
|‖口高中生物疑点通
迄今已从300多种不同的微生物中分离出约4000种限制酶。很
多原核生物在生活中很容易受到外源DNA的人侵’在长期进化的
过程中形成了_套完善的防御机制’以保持自身遗传物质的相对
稳定性。限制性核酸内切酶在这个防御机制中就起着至关重要的
作用’当外源DNA人侵时’限制酶就可以把这些DNA切割成小片
段DNA分子’使其不能在生物体内表达。由于酶具有专_性’即
每种限制酶都有它们特异性识别的脱氧核昔酸序列(如EcoRI限
制酶只能识别GAATTC序列)
。
细菌中的限制酶之所以不切割自身DNA’是因为微生物在长
期进化过程中’使含有某种限制酶的细胞’其DNA分子中要么
不具备这种限制酶的识别切割序列’要么通过甲基化酶将甲基转
移到所识别序列的碱基上’使限制酶不能识别’从而不能将其切
开。所以’尽管细菌中含有某种限制酶也不会将自身的DNA切
断’并且可以防止外源DNA的人侵。
~
~
)主霉…`……
|
川霉东鹏酗州测人擞版问巾《
●●●●●●●●●●
现代牛
穿「J|.牛
教材中有关问题的解答[J]
物科技》
;
|
物学教学’2011(1):43—44
●
●●●●●●●●●●●●●●●●●■●●●●●●●●●●●●■●●●●●●
●
●●●●●●●●●●
3′0
●
叫吻`u′v
、
凝
第五篇生物技术与工程
■
F
磷酸二酷键(phosphodiesterbond)
也称为“3|
’ 5|-磷酸二酷键”或“磷酸
双酪键”
’是核酸分子中的磷酸基团的
磷原子与另外两个五碳糖分子的碳原子
之间形成的共价键(图1)。这种形式的
键在DNA及RNA分子中负责将分别位
于两个五碳糖上的3号碳与5号碳连接
起来。
在化学课上’学生已经知道通过醋化
反应形成酷键(醋基)
(图2)。而磷酸
醋键是指—分子磷酸与_分子醇烃基(如
脱氧核糖)酷化形成的酪键(图3)°磷
酸二酪键则是指_个核昔酸的3′轻基与
另—个核昔酸的5′轻基即两个轻基与同
_分子磷酸酪化所形成的化学键(3|
’
5|—磷酸二酷键)
(图4)。如DNA聚合
酶、DNA连接酶和限制性核酸内切酶’
都是作用于磷酸二酪键’而具体的作
用位点是上—个核昔酸3|轻基与下_个
核昔酸中的磷酸酷化形成的磷酸酷键
(3|-磷酸醋键’如图4箭头所示)
°
0
『
∧
‖
`
\
〃
0‖
图1
两个磷酸二醋键连接了三个核替酸
3′′
●
●
●
●
t
|‖口高中生物疑点通
0
‖
0‖3_0—0-0‖20‖3+‖20
0
|
|
厂一ˉˉˉˉ
c‖3—c+0‖+‖|0ˉc‖2c‖’嚼≥
|ˉˉ一ˉˉˉ」
0
||
—0-0—
酷基(酷键)
-P—0—
‖磷酸酷键
0
图2醋化反应
0‖
{ˉˉ|-ˉ一
—‖0丁『ˉ0十,c‖2
0‖+‖20
山“
|0
|4′
0‖
0‖
|
{ˉˉˉˉˉˉˉˉ’
‖0-P+0‖+‖‖0—5C‖2
0‖
||
{_—ˉˉ」
烘「
0
4′
0‖
图3磷酸醋键形成过程
|
』|
5
4
~~~~
l
0
0
~
~
磷酸二酷键
|
|
主要参考文献b°…….…。
】
~~5
●
■
●
■
·
[l]梁长余关于氢键和磷酸二酷键
[J].生物学教学’2011’6:69.
[2]徐乐’李胜杰.关于磷酸二醋键、
磷酸键和高能磷酸键的辨析[J]
`
生物学教学’2017’1:70—71
●●●●●●●■●●●
■●■●●●●●●■■■■■■====
4
●
■
●
●
●
G
I
图4磷酸二醋键示意图
●
●●■●●●●
3′2
●●
●◆O
●●
●●
●■●
●
●
◆
●
■
●
●
●
●
●
●
●
巾
●
●
●
●
■
●
●
●
●
L
I
℃
第五篇生
与工程
■■■■■■■■=■■■■=■■■■■■■■■■■■■■■■■■■■■■■
■■■■■■■■
■■■■■■■■■■■■=■■==■■■■■■■■======…■==
■■=■■■■■■=■■==■■
=甲~=■==■■==
≡
==■≈■■■■≈==-=====■■■=■■==■■■■■
基困工程中单酶刚好?还是双酶刚好?
■■■
■■■==■■■■==■■■■■■=≈≡≈===■■■■====■■■
■■…学■■■
■■←~=■■■■=■■■■■■■■■■■■■■=■■■■■■===■■
■■■=■■
■■■■==■■=■~■■■≡==→
O‖∧
切割位点
识另|」序列
切割位点
|
///
\|
: :删|:哪|:|棚:洲眺|;I『|
β℃
℃∩□广
∧∩于|
丁|∧∩
■■
■■
●●
■尸℃尸
户■尸℃
C∧0
6丁C
C『6
(〕∧c
『
多位点人工接头
尸st|
″/门d|
||
B曰″)|ˉ‖
S厅)日‖
|
|
|
|
|
|
|
巨CO∩|
融性末端
巨CO∩|
韩性末端
5′
∧6C°
。
·
∧丁C6.
。
·
|
↑
质粒克隆载体
佣EC○只|切害|」)
~/
\
限制酶巨co∩γ
\限制酶尸|′川|
/
\
~
眉
~
-」司
口)6〕
/J
」仁|
c°●\
DN∧
连接酶
轴性末端
(a)
平末端
(b)
≥~/
用巨CO∩|和尸γ〃‖
|
切害|」质粒克隆
载体
—~
ON∧
连接酶
基因工程酶切及重组示意图
3′3
o
●
●
●
●
凸
■
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
■
●
0
盯‰^′『
|‖□高中生物疑点通
高中生物学教材只介绍相对简单的单酶切’有利于学生的理
解和接受。但单酶切在实验室操作的时候’容易出现反连甚至载
体之间的自连现象’因此单酶切的方法并不适用于基因工程的所
有项目。
在进行单酶切时’所得到的目的基因与质粒两头的黍占性末端
是相同的°由于在进行连接反应时’
目的基因和载体是随机碰撞
的’且两者的黍占性末端都相同。所以’
目的基因既可以与质粒正
向连接(正连)’即目的基因||顶时针地按其上游到下游的方向与
载体相连(与启动子的顺时针方向—致’这样’
目的基因就能从
上游到下游正常转录’表达产生所需的蛋白质)’也可以与质粒
反向连接(反连)’即目的基因的上下游方向颠倒地与载体相连
(结果目的基因的转录从下游到上游’导致密码子全部改变’
目
的基因不能正常表达)
。
为了防止出现反连现象’实验中常采用双酶切的方法°
双酶切’即采用两种不同的限制酶同时处理目的基因和质
粒°因为限制酶具有特异性’不同的酶作用于不同的碱基序列’
所以得到的黍占性末端也是不同的°当应用DNA连接酶进行连接
时’就只能存在_种正连情况’而不会出现反连的现象。正因为
可以有效地防止错误连接的现象出现’双酶切的做法被广泛应用
于基因工程中表达载体的构建。
庄襄…`……^
=一
,
[]]舒端阳基因工程中的单酶
切与双酶切[J]生物学教学’
2()16(6):75.
●
●●●■●●●●●●●●●●■■■■●●●Ⅷ●■■■■
●●
●■●
●●
●p
●
●●
3′4
娟
●
℃
\
第五篇生物技术与工程
==■■■■■■■■■■■■←■■■■■■罕■■■■■■■=■■■■■=■■■■■■■=→■■■■■■■■■■=审■■■■■■■■■■■■==■■■■■■■■■■■■=■■=■■■■■■==■■■■■■■≈
限删
识别位点『‖刨点?
==■■■■■■■■→=→=β■■===亨=■==■=■■~≡■■■■■■■≈=≈==■■■■■■==■=■=■■■■■甲■■==■■■■■■■■==≡→==■■■■■■■■■■
切割付点
5′ˉ00
3′
5′00‖ˉ3′
|■
+
■
3′ˉ00■5′
3′GG■
′
″曰e|
|
|
5′
′
→
6′
3
』
0『
∧/α|
→
儿
○
■
『
=
『
=
∧
■
■
小
…
~
巨COR
|
∧∧『『0
ˉ
+
→
…
『∧A
|
『∧∧|0
‖‖
‖‖
-∧
月/门d|
|
|
『
鄂
「
β
■
β
β
■
◎
∧
胜
丁
∧
|
『
∧00『「
|-
~
+
—
c6A
|
~
』
·
β
·
β
·
‖
·
=
邵
ˉ
川Ot
|
■
日
+
尸
~-0
~
』
几种常见限制酶的切割位点及切割结果
3′5
0
u□
000000
|‖·高中生物疑点通
酶具有专_性,_般来讲每种限制酶都有它们所特异性识
别的脱氧核昔酸序列。不过在研究中也发现有些不同的限制酶
所识别位点和切点是—样的’这些酶称为同座酶。同座酶切割
DNA时形成相同的末端’可以用DNA连接酶连接。如Ⅺ″αI酶
和S加αI酶都能识别CCCGGG序列’并在C和G之间切割DNA。
同时’科学家还发现有这样的—类酶:它们虽然来源不
同’识别的靶序列也各不相同’但都能产生相同的黍占性末端’
称为同尾酶。常用的Bα′′′HI `Bc/I 、Bg/ⅡX/joI就是—
组同尾酶。它们切割DNA之后都形成由ˉGATC-4个核昔酸组
成的黍占性末端。这样’
由于韩性末端相同’同尾酶切割后所
产生的DNA片段’能够通过其黍占性末端之间的碱基互补作用
而彼此连接起来。由_对同尾酶分别产生的黍占性末端共价结
合形成的位点’特称为杂种位点。由于杂种位点的存在使原
来的酶切割位点不存在’—般不能再被原来的任何_种同尾
酶所识别和切割。例如’
Sα/I
(5|—GTCGAC-3|)和X/joI
(5|—CTCGAGˉ3|)的切割片段能相连’但所形成的重组片段
(5|—GTCGAG-3|)则不能被上述两种酶的任_种酶识别和
切割。
‖—
●
[1]岁东照冯妙丹.对人教版高中《现
代生物科技》教材中有关问题的解
●
◆
●
答[J].生物学教学2()11(l):43一44.
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
■
■
≡
■
●
●
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
3′6
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
∩
■
●
●
●
●
●
第五篇生物技术与工程
国家图书馆
(基因组文库)
|。墓因库
基因库’就是基因的
‘‘仓库”
’它是指—个种
群中全部个体所带有的全
部基因(包括全部等位基
因)的总和。对基因库这
个概念应注意以下三点:
(l)基因库是_个完
整独立的种群°
(2)基因库是种群中
所有存活的个体。
(3)基因库是全部基
因’包括中性的基因`有
利的基因与有害的基因。
f
利的基因与有害的基因。所
基因组丈库与部分基因丈库
以’若携带某种基因的个体全部死亡,那么这种基因将在该
种群基因库中消失。
基因库这—概念属于种群遗传学范畴’它研究的对象不是细胞和个体’而是由—群
可交配繁殖的个体组成的群体’该群体中的个体具有共同的基因库。—个种群基因库中
的基因不会因为个体死亡而丢失’可以通过种群中雌雄个体的有性生殖进行基因交流’
从而将基因保留°种群基因库常用基因频率和基因型频率来描述。在—个自然环境中’
种群中某个基因的频率和基因型的频率总是在发生变化的’进而造成种群基因库的变
化’实质上就是这_种群的进化。因此,研究种群基因库的变化有助于了解生物进化
机制。
3′7
吐
●
|‖□高中生物疑点通
2基因文库
将某种生物的全部基因组的遗传信息贮存在可以长期保存的稳定重组体中’以备能
够随时从中分离出所需要的目的基因’这种保存基因遗传信息的材料’就称为基因文
库’又称DNA文库°基因文库由外源DNA片段、载体和宿主细胞组成°通常是将某生
物不同基因用适当的工具酶剪切后拼接到低等微生物(如细菌的质粒、噬菌体)等载体
上’将这些载体导人到受体细菌或细胞中’使得各受体细胞中分别含有这种生物的不同
基因°经过繁殖扩增’许多细胞_起包含了该生物全部的基因组序列,建构成该生物的
基因文库。例如’带有人类所有基因克隆的大肠杆菌细胞构成了人类基因文库’可从这
个文库中筛选、鉴定和研究人类的各种基因。
基因文库可分为基因组文库和cDNA文库。基因组文库就是把某生物的整个基因组
DNA切成适当大小的片段(包括目的基因在内)’分别与载体DNA组合’导人微生物细
胞,进行克隆繁殖后收集在—起作为长期保存的遗传信息库。cDNA文库就是以生物细
胞的mRNA为模板经反转录形成稳定的双螺旋DNA(即cDNA)’再将这些cDNA插人到
载体DNA中’导人微生物细胞所建立起来的克隆群。_个高质量的cDNA文库只代表了
生物体某—器官或组织mRNA所含有的全部或绝大部分遗传信息° cDNA文库与基因组文
库相比’其突出特点在于cDNA来自反转录的mRNA’不含冗余序列。通过特异性探针筛
选cDNA文库’可以较快地分离得到相关基因。而基因组文库特别是真核生物的基因组
文库非常庞大’而且含有大
|主襄…`…………………`
量重复序列’无论采用何种
量重复序列’无论采用何种
分离方法都难以直接分离到
靶基因片段。
基因文库属于基因工程
范畴’
目的基因的分离都离
不开基因文库’主要用于获
得未知序列的目的基因。
●
一
[1|全刚基因库`基因组、基因文库的概念辨析[J].
生物学教学’2()17(1):71—72.
[2]陈阅增普通生物学:生命科学通论[M].北京:高等
教育出版社’1999:448.
●
;
l3]吴相钮陈守良葛明德等普通生物学[M]北京
高等教育出版社,2()()9:306
!
|
"|干隐枝基囚文库的构罐与健川[J|生物学敦学
2010,35(12):65—66
●
==■■●■●●●●●●●●●●●●●●●●●●
●●●●●◆●■●■■■●■■
●●●●●●●●●■●●●●●●●●●
3′J
↓
●●
、〈
℃
第五篇生物技术与工程
可
■
=
■
■
=
=
■
=
■
=
…
■
=
=
=
=
=
=
=
=
=
~
■
~
=
■
=
三
】
姐侧从基困文库巾获取目的基圃?
=■■■■■=0■■=■■~=■■■=■■■■
■■■■
■■=■=←==~q■■■≡===■■■■■■■==■≈===≡=≡=■====<→==■==■■■=0■0←■
人教版生物选修3第9页中有这样的
描述:
‘根据目的基因的有关信息’如
根据基因的核昔酸序列`基因的功能`
基因在染色体上的位置、基因的转录产
物mRNA以及基因的表达产物蛋白质等
特性来获取目的基因。”到底怎样根据
这些信息获取目的基因呢?
|。用化学品使细胞破裂
将双链变成单链
↓
2用镭椽记购o…Ⅷ
被标记的探针
市雨梳
滤膜,该D‖∧能与目的
斑二豆零≥
“鹏配”
被标记的菌落
↓
≤二云
_二≥
3员蕊鹰蕊肆
△
□
结
列
序
补
互
的
↓
↑.根据墓因的核营酸序列
方法之_是核酸杂交筛选法’具体步
骤为:o将基因文库菌落转移至硝酸纤
维膜上’其位置和培养Ⅲ上完全对应’经
处理’使蛋白质消解、双链DNA变性成单
链DNA并固定于膜上;◎根据已知目的
基因的核昔酸序列制备杂交用的探针’常
待获取的目的基因互补的单链DNA;◎|
杂交;@将X光片放在膜上’进行放射自
处理’使蛋白质消解、双链DNA变性成单
留
含有目的c0‖∧的大肠杆菌
◎
4识别菌落°在原来
的平板上找至|」含有
目的cD‖∧的大肠杆
菌菌落,对细胞进
行取样`培养`分析
在cDNA丈库中寻找目的基因片段
链DNA并固定于膜上;◎根据已知目的
基因的核昔酸序列制备杂交用的探针’常采用的探针是经放射性同位素标记的已知序列或
待获取的目的基因互补的单链DNA;◎将膜和探针混合’使放射性探针与膜上互补DNA
杂交;@将X光片放在膜上’进行放射自显影’经冲洗’有放射性的部位X光片上会出现
黑斑;◎在培养基中找出和X光片上的黑斑相对应的菌落’从该菌落中提取目的基因。
筛选法是目前应用最为广泛的方法’根据已知目的基因两端的序列’设计引物,以
菌落或菌落中提取出的质粒DNA为模板进行PCR扩增’通过对PCR产物进行电泳分析后
测序’若能得到预期长度的产物’则该菌落中就可能含有目的基因。
2.根据基因的功能
根据基因的功能’设定相应的筛选条件’筛选文库’分离得到相应性状的克隆。另
3′9
Q
◆
●
●
●
●
0●
◆●●●●
●O●凸
●●■●●
飞赵
|‖□高中生物疑点通
外到数据库中搜索其他序列已知的生物中具有同种功能的基因的序列’分析出这些基因
的保守区域后根据该保守区域’设计引物并进行PCR扩增’产物测序后’根据测序结果
再设计RACE引物’继续PCR扩增和产物测序;拼接测序结果’直至得到完整的目的基因
序列;最后通过遗传转化实验验证目的基因的功能’排除假阳性°
3。根据墓因在染色体上的位置
根据基因在染色体上的位置这_信息从文库中分离目的基因较为复杂’可用图位克
隆(又称定位克隆)的方法。具体方法是:在日的基因两侧确定_对紧密连锁的RFLP或
RAPD分子标记。接着’利用最紧密连锁的—对两侧分子标记作为探针’通过染色体步
移技术将位于这两个分子标记之间的含目的基因的特定的基因组片段克隆并分离出来’
再通过遗传转化实验验证目的基因的功能。
4。根据基因的转录产物mRNA
利用分离到的基因的转录产物mRNA’反转录得到cDNA用放射性同位素标记成探针
后’进行杂交’方法同核酸杂交筛选法,或以该cDNA信息设计引物’进行PCR扩增。
5.根据基因的表达产物蛋白质
应用蛋白质测序技术测定其氨基酸序列’并根据特定物种中已知蛋白质的密码子使
用频率及最可能在目的基因中出现的密码子资料’选择含有密码子简并程度最低的蛋
白质区段来推测编码该蛋白质的核昔酸序列’以此合成一段核背酸片段作为探针’从
cDNA文库或基因组文库中筛选目的基因;也可根据此核昔酸片段设计引物’进行PCR扩
增;还可将分离纯化的蛋白质作为抗原’免疫动物制备相应的抗体’若用放射性同位素
标记该抗体’则可根据抗体ˉ抗原特异性结合的原理’通过观察放射性标记找到产生该抗
原的基因’即目的基因。
)主要参考文献‖….…………….
●●●●
●
[]|张莹对基因工程教学中相关问题的探讨[J]
生物学教学’2(〕15(1()):62—63
良现代生物科技专题教师教学
|2|朱正咸赵占良现代生物科技专题教师
用书[M].2版.北京:人民教育出版社’2()()7
●
●
GG
I
GGGGGGGGGGGGGGIIGGGGGGGGGIG
G
G
G GGGGGG
320
■
●
0
邀侧刨′碾趣八′沁′∏\h邀′`硼′v
`
酗
第五篇生物技术与工程
■=】
=≈】
加口[‖|‖□|诵导「|目耐
k
~
~~
~
~~~
=■^
用
ˉxy
=
∩
巳
p
在自然条件下’很多质粒都可通过细菌接合作用转移到新的宿主内’但在人工构建
的质粒载体中’
由于缺乏此种转移所必需的基因而不能自行完成细胞的接合转移°如要
将质粒载体转移进受体细菌’需诱导受体细菌产生—种短暂的感受态以摄取外源DNA。
在基因工程中’常用CaCl2溶液处理受体菌’ Ca2+与细菌质膜外侧磷脂在低温下形成
液晶结构’后者经热脉冲发生收缩作用’使细胞质膜出现空隙’细菌此时的状态叫作感
受态’能使目的基因‖顶利进人受体菌内°
细胞壁双链D‖∧
细胞质膜
〈
)警(
缺ˉ
ˉ翰…
(
供体D‖∧片段
受体细胞
完成转化的细胞
电穿孔转染法
除了CaCl2溶液处理受体菌外’电击法`RbCl (KCl)法也可制备感受态细胞,且转
化效率较高但CaCl2方法简便易行’其转化效率完全可以满足_般实验的要求’因此
CaCl2法使用更广泛。制备出的感受态细胞暂时不用时’可加人占总体积l5%的无菌甘油
于ˉ70℃保存’保存时间可长达半年。
转化过程所用的受体细胞—般是限制修饰系统缺陷的变异株’即不含限制性内切酶
和甲基化酶的突变体(R’M)’它可以容忍外源DNA分子进人体内并稳定地遗传给后
代。进人感受态受体细胞的DNA分子通过复制,
彰庄霉…卧…`
[1]张敏关于细菌细胞通透性|
●
●
●
●
改变的机理[J].生物学教学,
●
●
2()11(12)55.
实现遗传信息的转移’使受体细胞出现新的遗传
性状。将经过转化后的细胞在筛选培养基中培
养’即可筛选出转化子(即带有异源DNA分子的
受体细胞)
。
●●●●●●●●●●●●●■■●●●■●●■●■‖ P
■●●·●●●●●■●●●
●
●●●
32′
●
●
●
●
◆
●
●
●
●
●
宙
◆
●
伯
●
●
●
●
●
●
●
●
●
●
●
■
●
●
$
●
筋
●
●
~
●
●
■
●
■
●
●
●
″硼∩
、逊
|‖□高中生物疑点通
=
■
=
■
‖|||刨壁[
;|||||刨β
|阐Z
圃髓
=‖
甩
呈
】
‖
曰
‖
‖
‖
‖
←
一
少
浙科版高中生物选修教材认
为改变的是细胞壁的通透性’北
师大版、苏教版高中生物选修教
材均认为改变的是细胞质膜的通
透性’人教版高中生物教材未有
明确表述°那么’感受态法改变
的到底是细胞质膜还是细胞壁的
通透性呢?其原理是什么呢?
质粒附着在细胞外侧
′≡占且"
′
‖
\ˉ
感受态细胞
≈
0a0|2夕鲤
`
‖
‖
正常细菌
胞
细
入
进
移
转
粒
质
\
|
|
休克
,两分钟
\座/一一→、
d}
‖
\
一J
转化细胞
《基因工程概论》—书指
原核细胞转化过程示意图
出:
“将处于对数生长期的细菌
置人0℃的CaCl2低渗溶液中,使细胞膨胀’同时Ca2+使细胞质膜磷脂层形成液晶结构’使
得位于外膜与内膜间隙中的部分核酸酶离开所在区域’这就构成了大肠杆菌人工诱导的感
受态。此时加人DNA’
Ca2+又与DNA结合形成抗脱氧核糖核酸酶(DNase)烃基ˉ磷酸钙
复合物’并黍占附在细菌细胞质膜的外表面上。经短暂的42℃热脉冲处理后’细菌细胞质
膜的液晶结构被剧烈扰动’随之出现许多间隙’致使通透性增加’DNA分子便趁机进人
细胞内。
”
《Prescott’ sMicrobiology》—书提到:
‘包括大肠杆菌在内的多种微生物’
自然情况下
都不处于转化的感受态’这些细菌必须经过_定的处理’人为地令其处于感受态。电击和氯
化钙处理是常用的两种方法。两
种方法都使细胞质膜对DNA的通
透性暂时增加’都能令大肠杆菌
处于人为的感受态中。
’,
可见’多数教材倾向于感受态
法改变的是细胞质膜的通透性。
|主…Ⅷ
ˉ…≡
[1]张惠展ˉ基因工程概论[M]上海
1999.
■●●●●●●●●●●■●●●■●●●
华东理工大学
[2]Wjlley’Sherwood,WOolvertonPrescott’sMicrobiology
;
|
|M|9thed.McGrawHll|Education2()14
●
■
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
~~
●
●
●
●
●
●
●
●
·
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
322
撬
第五篇生物技术与工程
,■=≡==≡==■=■■=亨==■…=========■■■=======】
终1k子=终吐密码子?
司■
=
=
=
=
=
=
■
■
=
=
=
=
=
=
=
≡
■
=
=
=
=
■
■
=
■
=
=
≡
=
=
≡
=
■
=
■
■
■
■
=
■
=
■
=
=
■
…
■
=
凸
=
=
≈
→
■
■
=
■
■
■
≡
=
子≡起始密码子?
■
』
=
=
=
■
=
=
■
=
■
■
■
=
=
~
~
■
=
=
=
=
■
=
≈
=
=
■
=
■
=
=
=
=
=
=
=
=
=
乙
■
□
=
■
=
=
■
=
|.启动子≠起始密码子
启动子:是基因的—个组成
部分’其化学本质是DNA的部分
序列’控制基因转录的起始时间和
基因表达的程度。启动子就像‘开
关’’
’决定基因的活动。启动子存
在于基因编码区上游的非编码区’
是位于结构基因5端上游的DNA序
列’能活化RNA聚合酶’使之与模
板DNA准确结合并具有转录起始的
特异性°在启动子上有与RNA聚合
调
D‖
转录
↓
∏R‖∧
5′
3′
核糖体
特异性°在启动子上有与RNA聚合
结台位点
转录过程示意图
酶结合的位点°
起始密码子:碱基顺序作为遗传信息而被正确翻译通常需要从某个特定的位置开
始翻译’这个起始点的密码就叫作起始密码子。起始密码子由mRNA上相邻的3个碱基组
成’从这3个碱基开始决定蛋白质合成°蛋白质是由许多氨基酸组成的’而组成蛋白质的
第_个氨基酸就是由起始密码子决定的°真核生物的起始密码子AUG翻译对应的是甲硫
氨酸。少数细菌(属于原核生物)以GUG(颧氨酸)为起始密码子。
2终止子≠终止密码子
终止子:是给予RNA聚合酶转录终止信号的DNA序列’存在于基因编码区下游的
非编码区。终止子可分为两类:—类不依赖于蛋白辅助因子就能实现终止作用;另—类
则需依赖蛋白辅助因子才能实现终止作用。
终止密码子:是指蛋白质翻译过程中终
止肤链合成的mRNA的三联体碱基序列°在已
知的64组密码子中’有3组不编码任何氨基酸’
而是专司终止多肤合成’它们是UAG`UAA和
|主要参考文献‖.………
●●
|
●
[1]陈卫东.与基因工程有关的_
些概念之辨析[J]生物学教学’
2016(2):62—64.
●
●
■
●
●
●
UGA∩
●
●
●
●
●
●
●
●
●
●
●
●
■
●
■
●
●
■
■
=
叮
●
■
■
■
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
323
~
|‖·高中生物疑点通
■
P
■■=■■■■=■■■■■■■■~~=========■■■■■■■■■■■=■■=■■■≈=■■■■■■■■■
■■=■■=凸==■■睁~■■■■■■■■■■■■■■■→==■=■■■■■■=■=■■=■■■■==■P==q■■
狗什么峨菌体可以作狗基困工程中的载仰?
=■■==■南■============■■=≈■■■■
■■■■■■■■■■■■=■=■=====■□==■=早≡====■==■■■■■■====…==■===■==■■■■====■■■宇
理想的载体_般有以下几点要
求:能在宿主细胞中复制’容易进
人宿主细胞’要有合适的限制性核
酸内切酶切割位点’容易从宿主细
胞中分离纯化出来’有容易被识别
筛选的标志°
由于噬菌体具有侵染宿主细胞
并能将自身DNA插人宿主细胞DNA
中’进而改变宿主细胞性状的特
性’因此’
目前感染大肠杆菌的入
噬菌体改造成的载体在基因工程中
的应用最为广泛°
∧噬菌体基因组中’有_半是自
身生命活动必需的基因,另—半则
是对自身生命活动无重大影响的非
必要基因.可用外源基因取代非必
要基因’用导人外源基因的入噬菌
体感染大肠杆菌’导人的外源基因
随噬菌体的溶菌过程而增殖°利用
改造的入噬菌体感染大肠杆菌要比质
粒转化细菌的效率高得多°
一种噬菌体结构示意图
「主…献|
~
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
G
[1]刘学廷噬菌体简介[J].生物学教学,
2016(4):76—78.
[2]刘明河.细菌病毒:噬菌体的应用情况[J].
微生物学杂志2()()2’22(4):56ˉ
[3]周德庆微生物学教程[M].2版北京:高
等教育出版社,20()2:68~
●
~
~
●
●
●
●
●●●●●●●●■●●●●■●●■●●●●●●●●■·●●●●●●●
=
●
●●●●●●●●●●●●●●●
324
●
●
●
◆
$
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
G
第五篇生物技术与工程
■
ˉ
■
=
~~~~
第—次循环
产生2个分子
第二次循环
产生4个分子
第三次循环
产生8个分子
;′≡袭]′
宁<=
5′
/』
宁\监/报■』—|
|y~兰』′写{!
|
这2个分
靶序列
—
5′龋
隘3′一
模板链
5′
]…V曾』一》刁
引物|
/
含有待扩增靶序
列的D‖∧分子
5′翻
鳞3′
|
3′鲤
瞳5′
}
|
子与靶序
匣3′歹|」相匹配
\--~
靶序列
_→斟//≈<
|
{
|
|
『
0
〗
‖
|
‖
|
|
‖
0
0
‖
‖
|
敲链
|
|
\」g巨二<;当!}
~|
‖
〗
5′
\}
0
‖
3′ .赢_厦5′一
-
靶序列
PCR扩增目的基因过程示意图
尽管有很多因素可影响PCR扩增反应的效率与特异性’
但最关键的因素是引物的设计。引物设计的首要目标是其特
异性’只有当每条引物都能特异性地与模板DNA中的靶序列
退火形成稳定结构时才能达到这个目标。
弓|物设计主要遵循如下原则:
(1)引物的长度_般在l8~25b’太短则特异性不够
强’太长则退火温度会比较高。
(2)引物G+C含量以40%~60%为宜’太少扩增效果不
佳’过多则易出现非特异条带°4种碱基最好随机分布。
(3)两条引物之间不能有连续4个碱基的互补配对’否
则加人的引物自身形成双链以至于得不到目的基因片段。
325
●
■
·
●
●
●
●
似
■
■
●
●
●
●
●
●
●
●
●
印
●
●
■
←
△
|‖□高中生物疑点通
(4)_条引物自身不能有大于4b的反问重复序列或自身互补序
列的存在’这种序列可形成发夹结构°如果这种结构在PCR条件下稳
定’它会非常有效地阻止引物和模板之间的退火。
(5)两条引物的退火温度相差不能大于5℃。如果相差太大’
操作时—般选择较低的那个退火温度’那么另—条引物的非特异性结
合就会增加。
(6)
弓|物3′端的性质非常关键’如果可能的话’最末及倒数第
二个碱基的最佳选择是G或者C°
(7)实际应用中最重要的_点’设计的引物在合成之前’有必
要在DNA数据库中进行BLAST检测’以确保引物中的序列只在所扩
增的基因中出现’而与其他基因不具有互补性。
主襄参考文献}……….…….……
●●●●●
[1]沈静丹浅谈PCR技术[J]生物学教学2014’2:58—
59
●
[2]萨姆布鲁克’拉塞尔.分子克隆实验指南[M]黄培
●
堂等译3版.北京:科学出版社’2008:607—609
●
●
●
●
●
●
[3]李守宇.重叠延伸PCR技术及其在生物学中的应
用[J].生物学教学’2()13’38(4):65_66
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
·
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
◆
●
●
■
●
●
■
■
326
G
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
■
●
GGGGGGGGGGGGG
G
G
G
戳蹦撼蹦《
~ ,
》
削
鹏
鹏
蹦
爵蹦"嚼蹦}
辙
:
椭憋嗡藤
瞩
撼|
』翻
`蹦』
阻补
"
嚼
搬「‘
蹦
獭
嚣襟
"`
』1
》
!|
§
●
●
●
●
●
●
◆醚
·哪徽
●
●
鹏
●
■
●
挪; !
删
撼
蹦
』曾
獭
蹦
·
腆
蹦
●
●
●
●
●
■
●
胖
●
嘲
撇
·
‖
Q
●
●
蹦辙
附
录
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
可
』
燃蹦
●
●
◆
●
●
●
●
●
●
●
$
●
●
◎高中生物有哪些颜色(显色)反应?
/328
●
◆
●
·
◎高中生物鉴定实验中的试剂是如何配制的?
8
/33O
·
◎高中生物颜色鉴定实验分别利用了什么原理?
·
/334
:
◎哪些高中实验用到了原子示踪法?
/338
: 》◎哪些高中生物实验用到了酒精?
/339
●
·
◎哪些高中生物实验用到了NaCl?
/34o
●
◎体现生物膜流动性的常见实例有哪些?
·
/341
◎常见的育种方法有哪些?原理是什么?
·
●
′
·
/343
}:}(:舞孟鹏h蹦篇雕嫩些’
◎/348
‖
j|《|
蹦
◎
、
、
卜
硼
′
厂
∏
■
·
』
毗
\
\
』‖
′
…
\
…
、
`
硼
‖
■′
=
↑
~
Ⅷ
′
气
旧
‘
』
灿
、
…
`
γ
′
一
γ
′
Ⅷ
′
|‖□高中生物疑点通…
「
■
尸
~
~
■■■■■■■■■=■←■■■■
■■■■■■■l■■■
■■
(显色)反碰?
■■=■■■■■■==■■==■■■■■
】■p
(l )裴林(班氏)试剂:鉴别可溶性还原糖(葡萄糖`果糖、麦芽
糖)’水浴加热产生砖红色沉淀。
(2)双缩脉试剂:用于检测蛋白质呈紫色颜色反应。
(3)苏丹Ⅲ/Ⅳ染液:用于鉴定脂肪’其被苏丹Ⅲ染为擂黄色’被苏丹
Ⅳ染为红色°
(4)二苯胺:DNA遇二苯胺(沸水浴)会被染成蓝色。
(5)
甲基绿—毗罗红染色剂:DNA遇到甲基绿被染为绿色’RNA遇到
毗罗红被染为红色°
(6)碘液:用于鉴定淀粉的存在’遇到淀粉变为蓝色。
(7)龙胆紫溶液:用于染色体着色’可将染色体染成紫色。
(8)醋酸洋红溶液(碱性染料):与龙胆紫溶液_样’用于染色体着
色’能将染色体染成红色。
(9)健那绿染色剂:具有专—性’用于线粒体染色的活细胞染料。将
线粒体染成蓝绿色。
(l0)层析液:用于色素的层析’即将色素在滤纸上分离开’从上到
下为胡萝卜素(橙黄色)`叶黄素(黄色)`叶绿素a(蓝绿色)`叶绿素b
(黄绿色)
。
(ll)重铬酸钾的浓硫酸溶液:用于检测酒精’酒精使橙色的重铬酸钾
的浓硫酸溶液变为灰绿色。
(12)嗅露香草酚蓝水溶液:用于检测二氧化碳’澳庸香草酚蓝水溶液
遇二氧化碳由蓝色变绿再变黄°
(l3)酚红指示剂:检测到以尿素为唯_氮源的培养基中的细菌后
变红。
32g
●
●
■
●
●
●
′
||‖
′′
.斤
《飞
′`幽′"川』M刃`u′
工
k、M』′0
蜘
陀
录
‖
∏
牛
附
业
‖
′
一
》
甲
■
坠
~
、
巴
`
【
`
`
尸
「
〗
∏
』
』
■
■
■
‖
■
■
「
`
厂
▲
∏
『
咖
■
℃
"′′M「||》
』
(l4)刚果红染色法:筛选纤维素分解菌后出现透明圈。
(l5)醋酸洋红溶液:染花粉粒呈红色。
(l6)焙花青-铬矾染色法:染花粉粒呈蓝黑色。
(l7)伊红ˉ美蓝染色剂:可以鉴定大肠杆菌群’会使菌落呈现黑色。
(18)在盐酸的酸化条件下’亚硝酸盐与对氨基苯磺酸发生重氮化反
应’与/V≡l—茶基乙二胺盐酸盐结合形成玫瑰红色。
(l9)玫瑰油呈微黄透明状。
(20)擂皮油为无色透明状°
(2l)胡萝卜素为懦黄色结晶(
●
吐<二ˉ出
)主要参考文献
|
[1]壬秀玲人教版高中生物学教材
中部分知识的归纳[J]ˉ生物学教
学’201l(3):64
329
●
●
●
#●●●
●●●
●
●●
●■●
●●●●
■
巴
《
‖
『
■
『
‖
山
`
「
~
′
厂
「
~
、
■
■
■
■
ˉ
‖
尸
″
/
…
\
『
…
它
〃,
ˉ
≡ˉ
。ˉ`
〃|{|、逃M/′buⅪ
″`
\r$型
″′\u当′|『
二
』
二
=
≡
|‖□高中生物疑点通
=二二=二≡==ˉˉˉˉ-ˉˉˉ-ˉˉˉˉ-ˉˉ】
是Ⅱ‖侧配删的?
===■=→====~=■■■===■=========】
↑.裴林试剂常用于鉴定还原糖
试剂甲液(0.lg/mL的NaOH溶液):将l25g氢氧化钠和l37g酒石酸钾钠溶于
500mL蒸馏水中。试剂乙液(005g/mL的CuSO4溶液):将345g结晶硫酸铜溶于
500mL水中’加05mL硫酸’混合均匀°
2班氏试剂常用于鉴定尿糖
先在400mL水中加85g柠檬酸钠和50g无水碳酸钠;同时在50mL加热的水中
加人8.5g无水硫酸铜’制成CuSO4溶液°然后把CuSO4溶液倒人柠檬酸钠-碳酸钠
溶液中’边加边搅’如产生沉淀可滤去。
【
3.碘液常用于检测淀粉
称取l3g碘及35g碘化钾’溶于l0()mL水中’稀释定容至l000mL’摇匀’贮
存于棕色瓶中。
4双缩腮试剂用于鉴定蛋白质
试剂A(0.lg/mL的NaOH溶液):配置方法同裴林试剂的甲液’配好后贮于带
橡皮塞的瓶中°试剂B(0.0lg/mL的CuSO4溶液):可取裴林试剂乙液(005g/mL
的CuSO4溶液)lmL加4mL水稀释’即成为试剂B(0.()lg/mL的CuSO4溶液)
°
5.二苯胺试剂用于鉴定DNA
称取l.5g二苯胺(C|2HnN)溶于l00mL冰醋酸(C2H4O2)中’再加l.5mL浓
硫酸。保存和使用均用棕色瓶’因为其在光下可以被分解’也可以放冰箱中保存6
个月°如冰醋酸呈结晶状态’则需加温后待其熔化后再使用。临用前’在l0mL的
上述溶液中再加人0.]mL体积分数为02%的乙醛溶液(C2H4O)
。
卜
户
庭
■
天
巴
330
\
‖
■
□
■
■
■
』
幽
\
′
』
■
耻
~
、
吓
』
泅
凹
`
■
』
岭
贱
帆
`
可
}
』
■
■
′
—
~
■
Ⅳ
叮
|
■
‖
「
』
~
』
ˉ.
『
rW
‘
△
/′
」
`l
\渺
■
`
D
~
6。苔黑酚-三氢化铁试剂(现用现配)
常用于鉴定RNA
溶解6g苔黑酚于l00mL体积分数为95%的乙醇中(可在冰箱中保存1个月)
°
三氯化铁浓盐溶液:将2mLl0%的三氯化铁(FeCl3 ·6H2O)溶液加人400mL浓盐
酸中。
~~
7.苏丹‖|或|γ试剂用于鉴定脂肪
苏丹Ⅲ染液的配制:称取0.lg苏丹Ⅲ干粉溶于l0mL体积分数为95%的酒精
中’过滤后再加人l0mL甘油。
苏丹Ⅳ染液的配制:称取0.lg苏丹Ⅳ干粉溶于50mL丙酮中’再加人体积分数
为70%的酒精溶液50mL,充分混匀。
8。澳镭雷草酚蓝水溶液用于鉴定C○2
澳庸香草酚蓝水溶液简称为BTB’配制方法是将lg涅庸香草酚蓝加人l000mL
体积分数为20%的酒精溶液中。
9.重铬酸钾配制方法用于乙醇的鉴定
将60g重铬酸钾研细,研磨过程中扬起的重铬酸钾粉末有害健康’要注
意。然后将其溶解在300mL60℃的温水中。搅拌下直接少量多次加人工业硫酸
(98%)’每次加人量小于l0mL’共加人浓硫酸460mL°反应温度控制在小于
90℃’温度太高’水会蒸发而损失。配制好的溶液呈红色’并可能有均匀的红色
CrO3小结晶。
{O甲墓绿-派洛宁(‖tt罗红)染液用于观察DNA和RNA分布
取A液20mL’B液80mL配成染色剂’使用时现配。
A液:取毗罗红甲基绿粉lg,加人l00mL蒸馏水中溶解’放人棕色瓶中备用。
B液:取乙酸钠164g’用蒸馏水溶解至1000mL°取乙酸l2mL,用蒸馏水稀
33′
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
G
●
■
●
■
▲
●
●
●
●
▲
●
■
●
■
■
、
=
|‖□高中生物疑点通
释至l000mL。取稀释的乙酸钠溶液30mL和乙酸20mL’加蒸馏水50mL’配成pH
为4.8的溶液。经染色’细胞核被染成绿色’而细胞质被染成红色。因此证明DNA
主要分布在细胞核内’而RNA则主要分布在细胞质中。
‖↑。龙胆紫溶液用于观察染色体(质)
将lg龙胆紫溶解在质量分数为2%的醋酸溶液中。
细胞核内的染色体(质)进行染色处理后被染成紫色°
』
↑2醋酸洋红液用于观察染色体(质)
将lg洋红粉末倒人l00mL体积分数为45%醋酸溶液中’边煮边搅拌,煮沸
(沸腾时间不超过30s)’冷却后过滤’即可使用。也可再加人l%~2%的铁明矾
水溶液5~l0滴’至此液变为暗红色而不发生沉淀为止°
细胞核内的染色体(质)进行染色处理后被染成红色。
↑3.改良的苯酚品红溶液用于观察染色体(质)
(
{
)
苯酚品红染色液
o母液A:取03g碱性品红’溶解在10mL体积分数为70%的乙醇中(可长期
保存)
。
@母液B:将母液A加人90mL的5%苯酚水溶液中(2周内使用)
。
o染色液:取90mL母液B’加人l2mL冰醋酸和l2mL的质量分数为37%的甲
醛’即为苯酚品红溶液。
(2)改良的苯酚品红染色液
取50mL苯酚品红染液’加人950mL质量分数为45%的冰醋酸和l8g山梨醇’
即改良的苯酚品红染液。
(刚配置染色效果差’但是放置2周后,效果更佳。
)
↑4卡诺氏液用于固定细胞
配方l:无水乙醇3份’冰醋酸1份,混匀即可。
配方2:无水乙醇6份’冰醋酸l份’氯仿3份’混匀即可。
332
●
●
●
●
●
●
●
●
●
●
●
●
●
●
秒
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
G
0
|;叮′
`^避/"``Ⅷ叼`d′`
夕
Ⅶ
障△′』』}‖
′7‖
"
‖`
汕例越′
∏
划』
Ⅶ
严
△■
~
=
↑5.健那绿染液用于线粒体染色
将05g健那绿溶解于50mL生理盐水中’加温到30~40℃’使其充分溶解。
健那绿是细胞线粒体的活性染色剂’因线粒体中细胞色素氧化酶能使染料保
持氧化状态(即有色状态)’所以呈蓝绿色’而在周围的细胞质中染料则被还原
成无色。
|6.亚甲基蓝染液用于检测好氧性细菌的存在
取05g亚甲基蓝溶解在3()mL体积分数为95%的乙醇里’再加l00mL质量分
数为001%氢氧化钾溶液。可用于检测好氧细菌’因为好氧细菌能进行有氧呼吸产
生CO2’使环境变为弱酸性’进而使亚甲基蓝由氧化态的蓝色变成还原态的无色°
|7。台盼蓝染液用于判断细胞死活
称取4g台盼蓝’加少量蒸馏水研磨’加双蒸水至l00mL’用滤纸过滤’在
4{〕保存。使用时’用PBS稀释至体积分数为O4%。
‖8.酚红指示剂用于初步鉴定细菌能够分解尿素
取01g苯酚红与5.7mL005mol/L的NaOH溶液在研钵中研匀后’用纯水溶解
制成250mL试液°
{9.焙花青-铬矾溶液用于观察花粉细胞核
将5g铬钾矾[K2SO4Cr2(SO4)3 .24H2O]加人90mL蒸馏水中’溶解后加人0.lg
焙花青’混匀并加热至沸腾’煮沸5min后冷却至室温’过滤’加蒸馏水定容至
l()()mL∩
)主要参考文献]…………..
●■●●●●●●●●●●●●●
[1]樊晓鸣高中生物学实验中的物质鉴定方法归纳
[J].生物学教学,2()11’36(11):62—64
●
●
●
●
●
]周贺家.高中生物实验方法和试剂总结[J]考试’
‖2
●
2012(1):85
●
●
●
●
●
●
■
●
●
●
●
●
■
●
●
●
●
●
●
●
■
■
■
■
■
■
审
■
■
■
◆
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
■
●
333
GG
GI
Q
GG
●
●
●
●
●
●
●
●
●
●
●
■
●
●
■
◆
协
巴
怂
伯
们
●
●
●
●
=
●
●
●
份
●
=
●
●
■
■
●
凹
■
●
●
●
●
●
●
●
●
◇
公
●
卧
们
傍
●
|
「′)`
√
``
.
`
`′叮`必′"Ⅷ刃`u′`
`′7′
、·
玲u”勿`‖′v
`MⅥ
`
\
‖
『
归
山
ˉ
夕
『
迅
\
怀
′
也
、
‖
Ⅷ
‖
『
∏
"
\型
|‖·高中生物疑点通
可
=■■
■■■■■===■■■=…==■■■■■■■■
■■■■■=■■■==≈■=~■≈■■=q■■■■■=■■■■■■■■=■■■■■■■→=→=■=乙■■→■■■■■■→=<=≈=■■■■■■■■■■=■■
一
|
|
■
」
ˉ
二
高中生物颜色鉴定实验分别利朋了什么愿理?
===■===================■→■=二===≡=■■■=■=======~=■■=■■■=■■~=■■■=~■■■■■■■■=■■====■■===←邑
↑.鉴定类的颜色反应
(
{)淀粉的鉴定
淀粉中的淀粉链呈螺旋状’其中的葡萄糖基有轻基暴露在螺旋外
部’碘与这些轻基作用’与6个葡萄糖基配合’然后嵌人淀粉螺旋体的
轴心,形成包合物。包合物的吸光性能发生改变’当葡萄糖基小于6个
时不呈色’当葡萄糖基平均为20个左右时呈红色’当葡萄糖基大于60
个时呈蓝色。直链淀粉的淀粉链长’故而遇碘旱荫色’支链淀粉的分
支短’_般只有20~30个葡萄糖基’遇碘呈蓝、红混合的紫红色。
(2)还原性糖的鉴定
裴林试剂由甲液(0.lg/mL的NaOH溶液)和乙液(0.05g/mL的
CuSO4溶液)构成’两者混合后生成蓝色的Cu(OH)2沉淀。还原性
糖中含还原性的醛基(—CHO)’在水浴加热的条件下’可将蓝色
的Cu(OH)2沉淀还原成砖红色的Cu2O沉淀.
(3)蛋白质的鉴定
检验生物组织中是否含有蛋白质’常采用双缩腮法’使用的试
剂为双缩脉试剂。双缩腮试剂由A液(0.1g/mL的NaOH溶液)和B液
(00lg/mL的CuSO4溶液)构成。在A液形成的碱性条件下’ CuSO4溶
液电离出的Cu2+与双缩脉作用而呈紫色°蛋白质中含有许多肤键’结构
与双缩腮相似’故也能发生双缩腮反应’生成紫色络合物。所以’双
缩腮试剂可用来鉴定蛋白质’现象为有紫色物质生成。
CuSO4+NaOH—→Cu(OH)2+蛋白质—→紫色溶液
~
‖
334
●
●
●
●
●
◆
●
●
=
●
●
●
●
●
●
●
=
●
●
●
■
●
●
=
●
●
●
●
●
●
●
二
●
●
●
●
●
●
●
◆
●
■
●
●
●
●
=
●
●
●
●
=
●
●
■
●
厂
』|
u』dP′|‖``‖M′』、||’}
″′′|
川`\".
帅≤
购|′
hl′
\
\
抑
‖
‖
=
V
~~
(4)脂肪的鉴定
苏丹染料在脂质中的溶解度大于在酒精中的溶解度’因此苏丹溶
液中的染料分子与脂质的亲和力更强。依据溶解度的差异’可用苏丹
溶液对脂肪进行染色’其原理主要是物理性脂溶和吸附作用。常用的
苏丹试剂有苏丹‖和苏丹Ⅳ。因苏丹Ⅳ溶液与脂肪的亲和力比较强’
所以染色时间略短。脂肪染色后颜色呈现擂黄色(苏丹Ⅲ)或红色
(苏丹Ⅳ)
°
(5)二氧化碳的鉴定
澳踌香草酚蓝是_种酸碱指示剂’颜色可随PH值的变化而变化’
变色范围为60~76(黄→绿→蓝)。CO2溶于水生成H2CO3’H2CO3水
溶液呈弱酸性’所以用嗅庸香草酚蓝鉴定呼吸作用释放的CO2时’会出
现颜色由蓝变绿再变黄的现象。
(6)酒精的鉴定
重铬酸钾在强酸(浓硫酸)环境下’可将乙醇(C2H5OH)氧化为
乙醛(CH]CHO)’再进—步将其氧化为乙酸(CH3COOH)’并生成硫
酸铬(CrSO4)。CrSO4水溶液电离出Cf+’Cr2+呈绿色。所以’酸性的重
铬酸钾遇酒精会由橙红色变为灰绿色。
(7)亚硝酸盐的鉴定
亚硝酸盐在特定条件下可转化为亚硝胺’后者具有致癌和致畸作
用。在泡菜的脆制初期,亚硝酸盐的含量会升高’因此要进行亚硝酸
盐含量的测定。在盐酸的酸化条件下’亚硝酸盐与对氨基苯磺酸发生
重氮反应生成重氮盐’后者进—步与/V≡1ˉ茶基乙二胺盐酸盐偶合形成
玫瑰红复合物。将显色反应后的样品与标准溶液进行比较’可估算出
亚硝酸盐的含量。
(8)
DNA的鉴定
在酸性条件下加热,DNA中的膘吟碱基与脱氧核糖之间的糖昔键
335
‖0
引0凸
●
●
臼
●●
●
≡
例`u广」
灿
△
`
`
川
飞
八
′
∏
』
■】
『
■
山
…
′
√
Ⅵ
‖
巳
‖
—
』
■
』
~
吵
亏
‖′[
√{灿/Ⅵ`d′V〉\u′v
|‖□高中生物疑点通
会发生断裂’生成漂吟碱基`脱氧核糖和喀陡碱基脱氧核昔酸’脱氧
核糖进—步脱水生成o—轻基-γ-酮基戊醛’该物质与二苯胺试剂反应可
生成蓝色物质°
(9)分解尿素的细菌的鉴定
酚红是—种酸碱指示剂,当pH小于66时呈黄色’ pH在66=8.0之
间时呈橙色’ pH高于84时呈红色。分解尿素的细菌可利用腮酶将尿素
[CO(NH)2]水解成CO2和NH3’NH3溶于水呈碱性’可使酚红指示剂
变成红色。
(}0)分解纤维素的细菌的鉴定
分解纤维素的细菌’利用纤维素酶可将培养基平板上的纤维素
降解成小分子糖,刚果红染色剂可以与大分子的纤维素牢固结合形
成红色复合物’而不与小分子糖结合。用NaCl溶液冲洗平板后’小
分子糖被洗脱下来。因此’在生长过分解纤维素的细菌的周围会形
成透明圈。
2染色类的颜色反应
({)甲基绿`毗罗红对DNA和RNA的染色
DNA和RNA都是多聚体’但二者聚合程度不同。甲基绿更易与聚
合程度高的DNA结合呈现绿色’而毗罗红更易与聚合程度低的RNA结
合呈现红色。当然’解聚的DNA也能像RNA那样被毗罗红染色呈现
红色°所以’—般情况下’由于DNA与甲基绿亲和力强’故被染成绿
色’而RNA与毗罗红亲和力更强’故被染成红色。
(2)健那绿对线粒体的染色
健那绿是—种线粒体专—性活体染色剂’
自然状态下呈绿色’具
有脂溶性’能穿过细胞膜°健那绿中有染色能力的基团带正电’可与
线粒体带负电的内膜结合’内膜上的细胞色素c氧化酶使健那绿保持
氧化状态而呈蓝绿色。但在周围的细胞质中’健那绿被还原成无色状
态。通过健那绿对细胞的染色’可以在高倍显微镜下观察活细胞中线
粒体的形态和分布°
336
b●α●●
0●●●●●
b●·●●
卜●●
●●●
●■●●●
◆
●
●
●
●
●
●
●
●
灿
γ
叮
』
『
√
司
囚
|
『
尸
~~
仙
_
`
毕
~
Ⅳ
`
~
~
~
~
~
′
|
州
\
↑
硼
‖
■
■
∏
「
Ⅻ
盯
凌
哑
`
『
′
`
仙
「
■
■
厂
』
』
框
汹
四
夕
划
`
″
飞
、
仆
∏
~
′\
(lp′
.
「}卜、
u′
‖
娜
附录
饥
0
团
(3)碱性染色剂对染色体的染色
染色体在解螺旋状态下又称染色质’因易被碱性染料染成深色而
得名°染色体自然状态下是无色的’对其观察和计数需要用染色剂
将其染色’常用的碱性染色剂有醋酸洋红和龙胆紫溶液°碱性(或酸
性)染色剂的界定并非由染料溶液的PH值决定’而是由染料物质中助
色基团电离后所带的电荷来决定的°一般来说’助色基团带正电荷的
染色剂为碱性染色剂;反之’则为酸性染色剂°虽然龙胆紫染液的PH
值为30’醋酸洋红染液的pH值为l.9’两者均为酸性溶液’但两者的助
色基团带正电荷’所以是碱性染色剂’可对染色体进行染色。
(4)大肠杆菌的鉴别
大肠杆菌在伊红ˉ美蓝培养基上进行培养’能够在分解乳糖产酸时
带正电荷被伊红染成红色,再与美蓝结合形成紫黑色菌落,并带有绿
色金属光泽。
(5)活细胞的检测
台盼蓝染液—般用于鉴定细胞的存活与否。正常活细胞的细胞
质膜结构完整’具有选择透过性’能够排斥台盼蓝’使细胞不被染
色;而死细胞由于细胞质膜的通透性增加’台盼蓝可通过细胞质膜
进人死细胞内让其被染成蓝色。
)主要参考文献1…………………
●●●●●●●
[1]枣东照’李文辉.高中生物学实验中显
原理[J]中学生物教学’2()11(9):32—33
验中显色反应及其
栈析生物学实验中颜色反应的原理[J]生
[2]王子武
物学教学2016’41(12):66—67
●
[3]周有祥高中生物学实验中的显色原理[J]生物学
●
■
●
通报’201(),45(6):51—53
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
←
■
■
■
■
●
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
◇
●
●
●
●
●
●
‖
●
●
337
I
■
●
●
●
●
印
●
●
■
巾
●
厂
`
′
.|『》
延怂`p
∩
\心
刨′W
划
`巡D
』
|‖□高中生物疑点通
==空===■■■■■■■■=乙■=≈=■■■■乙■==0■■
■■≡=■■■■
■■=■■■==乙■■■■=■■=■■■■=
子示踪法?
"‖些高中实验用到了
■■≡=■■≈■■■■■■■■■■■■■≈■■■≡■■■■三■■=→≈=■■■■=→■■■■■■
■■■=
(l)用3H标记亮氨酸追踪分泌蛋白的合成过程。
(2)用32p标记胸腺啼陡脱氧核昔酸“T”追踪DNA的复制过程
或细胞周期中间期的时长。
(3)用3H、|5N或32p标记尿喀陡核糖核昔酸“U”追踪RNA的
合成过程°
(4)用l4CO2追踪光合作用中碳原子的转移途径°
(5)用H2|8O和Cl8O2相互对照探究光合作用中O2的来源。
(6)用32p、35S标记噬菌体DNA和蛋白质探究噬菌体遗传物质
的化学本质。
、
∏
』
GGGIGGGGGGGG
|主要参考文献
●
[l]王秀玲.人教版高中生物学教材:
中部分知识的归纳[J]生物学教;
学’2011(3):64.
●■●●●●■●●●●●●●●●●●●●●●●●■●●●●●●@●●=■
□
"
/
/
●
●
●
●
●
●
●
●
●
\<
■●●●●●●
≡ˉ=≡
33『
=
灿
巴
‖
■
‖
△
汕
‖
‖
■
—
≈
龟
`
`
二
■
■
■
』
■
■
』
旧
』
』
咆
\
≈
小
二
日
■
汕
\
、
、
‖
例
Ⅷ
`
匹
{
‖
|
』
_
小
=
h
0
U兰
-
|‖↑`
`
汕
鞠
附录
临
`
■
■
=
`
划
\
一
出
二
■
‘
』
…
、
严
罗
(1)在检测生物组织中的脂肪时’用体积分数为50%的酒精洗
去浮色°
(2)在叶绿体色素的提取和分离中’用无水酒精提取色素。
(3)在观察细胞的有丝分裂实验中,酒精作为解离液—15%
盐酸和95%酒精混合液(l
: 1)的成分。
(4)在低温诱导染色体加倍时’用卡诺氏液固定染色体后,再
用95%酒精冲洗2次°解离液与(3)相同。
(5)在土壤中动物类群丰富度的研究中’诱虫器下部及采集的
小动物可以放人体积分数为70%的酒精中。
(6)在组织培养实验(胡萝卜的组织培养、菊花的组织培养、
月季的花药培养)中用70%的酒精对外植体和操作台消毒。
(7)在腐乳的制作过程中’卤汤中有l2%左右的酒精。
(8)在DNA的粗提取与鉴定中’粗提取DNA的过程要用95%的
冷酒精。
●●●●●●●●●●●
)主要参考文献
[1]王秀玲.人教版高中生
中部分知识的归纳[J]
学,2011(3):64.
物学教材
生物学教
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
‖
●
339
0●●
川′\
′‖』
\‖
■
′′
、
、M|‖
′
`Ⅲ;‖M`、d√吻
|
|
\
`u′v`跳‖
『l
`』′vdMV〉`
严
副
岭〃^u〗
h′`
|‖□高中生物疑点通
≈
■
尸
h■■■■■■■■■
■■■■■■=■■■■=■■■■■■■■■■=■■■■■■■■■■■■■■≈≈0■■■■■■■■■■■■■■■■■■
●■■
■■===■■■■■■■■■乙=乙==■■■■■■■■=■■■■
删‖些高巾生糊实验佣到了NaCl?
■■■=■==字=≡=■■■■=■■■■■■■
■■■=■■■■■■己■=…=乙0■■
■■≡■=■■■■=三===■■■==■■=■■■■■■…=≡==≡■■=====■■
勺=
(l )在观察DNA`RNA在细胞中的分布和口腔上皮细胞制片
实验中’滴09%的NaCl溶液以维持细胞形态。
(2)高浓度的NaCl溶液可以防腐’也可以使植物细胞发生质壁
分离。
(3)在DNA的粗提取与鉴定实验中’利用DNA在不同浓度
NaCl溶液中的溶解度不同而分离出DNA。
(4)腐乳制作过程中要加盐脆制°
(5)做泡菜时盐水质量比为l :4。
(6)在玫瑰精油提取过程中’增加盐度使油水分层。
(7)在Ⅲ红蛋白提取和分离实验中’用09%的NaCl溶液洗涤红
细胞去杂蛋白。
(8)在刚果红染色法中用NaCl溶液洗涤`褪色。
(9)在制备牛肉膏蛋白陈培养基时’要加人NaCl°
/=寞献`………
[1|壬秀玲.人教版高中生物学教材
●
●
中部分知识的归纳[J].生物学教
学’2()1l(3):64.
●●
●
●
●■●
■
●
●
●
●
●
■
■
●
●
■
■
■
■
■
■
■
●
■
●
●
■
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
■
●
340
I
G
G
吵]『`|MF心、M切`u/!`赎ˉ
k
″′ )Ⅷ司沁
~
」
=
』′
蜘
附录
″′|)
``\
′‖d
;``葱
,
蛔7 、M√
乙
】
|
】
=
■
===■■■■=…==■■==■■
■■■=■■■■■■=========■■■■■==≈==q■■
■■==■■■■■■■■■■■■■■=■■■■■■■■==■■■■■■■===■■■■■=■■■■■■■■
体现生糊膜流动性的常见实例有"‖些?
■■
■■=■■=■■■■■■■■■■■■■■==■■■■■■■■■
■■■■=■■■■■■■■■■■=■■■■■■■
===■■■■■■===0■b≈■=■■■己→=■…=■==≈=■■■■
■■=■■==
~
↑.从细胞的功能看生物膜的流动性
(
|)细胞内生物膜的更新与膜的流动性
内质网加工合成的有机物(功能蛋白)’依赖膜
的流动性出芽产生小泡离开内质网而与高尔基体膜融
合’再经高尔基体加工后分泌小泡转移给细胞质膜’
经过细胞质膜分泌到细胞外。这种生物膜之间的转移
与融合不仅完成了细胞内膜结构的自我更新’也实现
泌’体现了细胞结构与功能上的连续性和协调性。
了活细胞内大分子物质的加工运输与分泌’体现了细胞结构与功能上的连续性和协调性。
(2)细胞免疫与细胞膜的流动性
在细胞免疫的感应阶段,吞噬细胞通过细胞膜的识别吞噬抗原’以及处理抗原后递
呈抗原的过程’都依赖膜的流动性。在细胞免疫的效应阶段’效应T细胞识别靶细胞并
与其结合’使靶细胞裂解的过程也与膜的流动性有关。
(3)细胞的胞吞\胞吐与膜的流动性
细胞要选择吸收的大分子物质(如蛋白质和颗粒型物质)在运输过程中,需要先吸
附在细胞膜上’
由细胞质膜的内陷形成小囊将其包围然后小襄从细胞质膜上分离下来
形成小泡并进人细胞内’这个过程叫作胞吞。与此相反’细胞内的分泌蛋白是被膜包围
形成小泡’移向细胞质膜并与膜融合’将内容物排出细胞的’这个过程叫作胞吐。因此
细胞的胞吞、胞吐也依赖膜的流动性。
2.从细胞的运动看生物膜的流动性
(
|)单细胞原生动物的变形运动和捕食与膜的流动性
变形虫是单细胞原生动物’它在摄取食物和避开有害刺激时’要通过细胞质的环流
和细胞质膜的流动性向前伸出伪足进行变形运动。草履虫取食过程中食物泡的形成以及
胞肛废渣的排出’也依赖于膜的流动性。
(2)血浆中血细胞的运动与膜的流动性
白细胞通过变形运动穿过毛细Ⅲ管壁到组织液中游走,吞噬人侵的病菌`细胞碎片
34′
·
●●
●
●
●●
o
●份●
●●●●■
●●●●●
●●●●●
●●●●●
●0
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
巴
●
●
●
■
●
◆
●
∏
‖∧Ⅷ′」
|
~
旦
`、
训\0′
′
、血吵』|`Ⅷ7|{
′
』
M『``巡
|\y
、
冈TM仰、哩
″`√下
`幽/∩|`砌
抑ll/
Ⅵ
U
」
~≡
|‖□高中生物疑点通
和衰老红细胞’红细胞变形通过狭窄毛细Ⅲ管向前运动’这些都与膜的流动性有密切
关系°
3。从细胞的增殖看生物膜的流动性
细胞分裂与膜的流动性密切相关’比如在青蛙红细胞的无丝分裂过程中’具有双层
膜的细胞核先延长绩裂成两个核。同时’细胞质随细胞质膜的流动性向内凹陷’将细胞
绩裂成两个子细胞。
4。从细胞的分化看生物膜的流动性
细胞分化过程中细胞形态的变化与膜的流动性有关。如神经细胞在高度分化中形成
长的轴突和分支多而短的树突的过程’消化道上皮细胞朝向肠腔的—面’细胞突起形成
微绒毛来增大吸收面积的分化的过程’都与膜的流动性有关。
5。从生物的生殖看生物膜的流动性
有性生殖中’在精细胞变形形成精子的过程中’细胞质向外延伸’形成主要含细胞
核的头部和由细胞质组成的尾’要借助细胞质膜的流动性。在受精作用的过程中’精子
和卵细胞通过膜的相互识别亲和’精子头部进人卵细胞并与其相互融合’因此完成受精
过程与膜的流动性有关。无性生殖中的出芽生殖(如酵母菌)’母体从细胞的某_部位
向外突起形成芽体’芽体逐渐长大’最终与母体脱离’这也与膜的流动性有关°
6.细胞工程技术与生物膜的流动性
植物体细胞的杂交过程中’用酶解法去掉细胞壁获得原生质体后’用物理或化学的
方法促使原生质体融合’形成杂种细胞的过程’要借助于膜的流动性。
在动物细胞的融合过程中’如单克隆抗体的制备’杂交瘤细胞的形成或人鼠细胞的
融合过程等也依赖膜的流动性。
|=文献、
|
‖|靳凰帧生物膜的流功
●■●●●●●●●●●
性面面观
巴
[J].生物学教学2010’6(35)59
●
●
●
●
IGGGGGGGIGGG
●●●●●●■●●●●●●●●●●■■●●●●■◆●●■●●0
●
342
p
●
●
|
\
|」i
Ⅷ〕川`
』
…
厂
`
■
\
■
』
`
刚
●
′
=
「
』
々
‖
ˉ
贱
盯
』
』
也
`
《
[
』
伊
/
产
【
』
~
‖
『
『
Ⅷ
‖
』
Ⅱ
_
\
}
‖
(
厂
」
』
■
■
∏
巳
划
ˉ
从
~~
β
』
也
、
~~
〃′′\b′Ⅱ′
|卜、
``〃
二
(l)杂交育种’原理为基因重组’是操作最简捷的育
种方法。
(2)诱变育种’原理为基因突变’是目标最盲目的育
种方法°
(3)单倍体育种’原理为染色体(数目)变异。
(4)多倍体育种’原理为染色体(数目)变异。
(5)基因工程育种’原理为基因重组’是最有预见性
的育种方法。
(6)细胞工程育种’原理为细胞质膜的流动性和植物
细胞的全能性。
@
●●●●●●●●●●●
g】
主要参考文献
|
|
[1]王秀玲人教版高中生
中部分知识的归纳[J].
学,2011(3)64.
物学教材:
●
生物学教;
●
●
●
●
●
GGGGGGGGGGGG
●●●●●●●●●●●●●●●■■●●●●●●●●●Q●●
●
●
砂
●
●
●
●
●
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
β
●
■
●
$
●
●
●
●
●
●
●
●
●
■
●
●
、
<
√
●
●
■
●
●
α
〃
哮
口
●
■
●
●
●
、
<
√
●
●
●
铝
◆
I
哑′||`′`u′∩``趣例`
∩`送`
√
|‖□高中生物疑点通
■
ˉ
尸
■□■■==■■■■=■■■■■■■■■■■■==■■
■■■…·■■===■■■■■■■=乙■■■l■■==■■
‘‘反馈调节,,有"‖些?
币
】口||
==■■■
■■=■■■■=■■=■■■■=■宇≈■■■■■
■■■■■■=■■■■■■■====→→≡■■■■■
■■==
生命系统的层次性表现在多个方面’从细胞到生物圈每一层次都可以成为独立的生
命系统’都发生着与环境的交流’都存在着稳态’都存在着反馈调节。在_个系统中’
系统本身的工作效果’反过来又作为信息调节该系统的工作,这种调节方式叫作反馈调
节。反馈调节可分为负反馈调节和正反馈调节。负反馈能使最初发生的那种变化向相反
的方向发展’使系统达到和保持相对稳定(图l)’正反馈加速系统最初所发生的变化’
使系统向着偏离最初状态的方向发展’即人们常说的良性循环和恶性循环°
图1
反馈工作的原理图
|。细胞内的反馈调节
生物体内的各种代谢变化都由酶驱动’细胞代谢主要受到酶活性和酶含量的调节。
由于许多催化生物代谢的酶或酶系都具有变构酶的特性’在反馈调节中’很多产物
都可以起变构剂的作用’从而改变酶活性。例如’在呼吸作用过程中,当细胞有了足够
量的ATP后’磷酸果糖激酶的活性会被抑制’导致关键反应停止’从而减缓AIP的产生’
维持AIP含量的稳定并避免能量的浪费。反之’当AIP含量降到一定程度’ADP浓度上升
时’ADP就激活磷酸果糖激酶的活性’刺激更多的ATP合成(图2)
。
●
●
●
●
●
3“
●
●
●
●
●
●
●
●
●
●
●
●
●
●
◆
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
伯
●
●
●
伯
●
●
●
●
●
●
●
●
●
●
●
●
●
●
{
/
~
`
\
『
『
』
∏
■
一
贱
γ
山
|
■
\
出
、
、
`
删
≡
□
』
□
·
』
』
』
…
‖
′
」
『
‖
`
_
=
弓
`
′
州
\
‖
硼
‖
ˉ
′
「』
‖
』
吵
△
\
‖
Ⅱ
『
一
′``
叮「N
…
?A
啊》
‖付录
葡萄糖
↓
6ˉ磷酸果糖
酶含量调节代谢反应的终产物不但
可通过变构调节直接抑制酶体系中的关
键酶’有时还可阻遏这些酶的合成。
动作电位形成时的正反馈(图
3):按照离子学说’局部反应和动作
电位都是钠离子内流的结果。但在局部
反应期间’膜的通透性还没有剧烈变
化’钠离子内流还很有限’不足以引起
动作电位。随着携带正电荷的钠离子的
流动’使膜进_步去极化’越来越多的
钠离子通道开放’从而导致越来越多的
钠离子内流(正反馈)。当刺激强度增
强到阂电位水平时’膜对钠离子的通透
性突然显著增大(约为钾离子通透性的
600倍)’钠离子迅速大量内流’进—
步促使膜去极化,而膜去极化又使剩余
的大量钠离子通道相继开放’钠离子内
流进_步增高(正反馈)。当达到钠离
子平衡电位(膜内为正’膜外为负)
时’形成动作电位的上升支。
|臆激"
~—磷酸果
抑制
|′6ˉ二磷酸果糖
↓
}
酮酸
↓
三梭酸
(Ⅸ「ebs)
循环
引电子传递链和化学渗透
图2
↑
动作电位
→
+50
下降支
=
二
坦
召
挫
0
上升支
阑值
ˉ」ˉˉ
-50
息
位
静
电
~~~~~~~~~~~~
==■[→■=→■■凸
=
电位
二70去极化
正后
-|00
2.个体水平的反馈调节
个体水平的稳态与神经调节、体液
调节等息息相关’该水平的反馈调节
在教材中实例较多。例如’通过反馈调
节作用’使血糖浓度维持在正常的相对
稳定的水平(图4)°当Ⅲ糖浓度升高
0
|2345
6
时间(ⅦS)
图3
34J
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
■
●
■
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
$
●
●
■
●
●
●
●
●
●
●
●
●
●
●
■
●
■
■
份
●
●
■
●
●
●
●
●
厂-
二
Ⅶ}′`″∩`Ⅶ/叼`u′
■
耻
—
彰
γ
■
灿
眼
彬
』
′
灿
)
『
′
汹
、
狮
〗
划
刚
灿
\
硼
』
叼
」
吵
〗
‖
‖
|‖·高中生物疑点通
时’通过对胰岛B细胞的刺激使其产
生胰岛素’胰岛素通过血流作用于肝
脏和其他各种组织’_方面促进糖原
的合成和贮藏’以及各种组织对Ⅲ糖
的利用’另一方面抑制肝糖原的分
解’使Ⅲ糖浓度下降。但是’胰岛素
并不是无限度分泌的’Ⅲ糖浓度也不
是无限度下降的。当Ⅲ糖降到_定水
平时’将通过负反馈作用抑制胰岛素
的分泌’从而使Ⅲ糖浓度相对恒定。
除此以外’水盐平衡的调节、体温调
节、甲状腺激素分泌的调节以及排尿
反射、分娩等都与反馈调节密不可
分。个体水平的反馈调节与细胞内分
子水平的反馈调节紧密相连’如激素
的调节最终依赖于改变细胞内酶的种
类`数量和活性而完成。
排尿反射’当膀胀排尿时’尿液刺激
卜{』
|
胰岛素
|
↓ˉ
+
|胰岛B细胞|←堂盒
|胰岛∧细胞|←茎盒
,|↑_
冈
|胰高血糖素|—>
抑
加
抑
—
正常血
糖水平
制肝糖原生成
加速肝糖原水解
血糖升高
图4血糖稳态的负反馈调节
神
经
中
枢
…
→
←
…
器
受
感
→
剩
刺激
反射效应
图5
正反馈在反射活动中也有表现(图5).例如’排尿反射’当膀胀排尿时’尿液刺激
膀恍壁和尿道内的感受装置冲动信息经传人神经传向中枢’通过中枢和传出神经的活
动’膀胀通过尿肌收缩加强使尿液排出加强’传人刺激也随之加强(正反馈联系)’最
终导致排尿过程越来越强烈’直到尿液排完为止。在这个过程中每—个反射活动都是连
锁反射’当—个刺激发动_个反射后’反射的效应又成为新的刺激’引起继发性反射活
动,这个继发性反射对维持和纠正反射活动的进行有着重要的作用。
3°生态系统中的反馈调节
生态系统普遍存在着反馈调节现象。在种群数量的变化—“S’’型增长’种群增长
率与种群自身密度之间存在着反馈机制’种群密度越高’反馈对种群增长率的抑制作用
就越大’当种群增长率为零时’种群达到了—个稳定的平衡状态(图6)
。
当生态系统中某_成分发生变化的时候’它必然会引起其他成分出现_系列的相应
346
●
~
●
●
●
●
●
●
』
●
◆
●
●
●
●
●
●
●
◆
●
●
●
●
■
●
●
■
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
`.0
·′ ,\
—
!
′`l|
厂
刃M|`…′
n〃′川``赵』〗
‖
厂
ku1琅
矾
瓜
′′″|||
′_`卜、
山匈7
γ~/
獭罗
‖付录
|
」
尸
`
\
一
一
刃
厂
∏
『
『
「
■
吵
\
‖
∩
厂
∏
厂
「
■
『
「
歹
皿
`、
变化’这些变化最终又反过来影响最初发生变化的那种成分。如图7所示’如果草原上
的食草动物因为迁人而增加’植物就会因为受到过度啃食而减少’植物数量减少以后’
就会抑制动物的数量。这是_个负反馈调节过程’它的作用是能够使生态系统达到和保
持平衡状态或稳态’反馈的结果是抑制和减弱最初发生变化的那种成分所发生的变化。
如果_个湖泊受到了污染’鱼类的数量就会因为死亡而减少’鱼体死亡腐烂后又会进—
步加重污染并引起更多鱼类死亡。这是—个正反馈调节过程’它的作用刚好与负反馈相
反’即生态系统中某—成分的变化
所引起的其他_系列的变化’其作
用不是抑制而是加速最初发生变化
缅
↑
↓
的成分的变化。因此’正反馈的作
用常常使牛态系统远离「衡状态或
|
出生率下降
死亡率升高
种群数量超
过′《值时
迁入率下降
迁出率升高|
稳态。结果由于正反馈的作用’污
染会越来越重’鱼类的死亡速度也
会越来越快。通过反馈调节’尤其
是负反馈调节’无论是在细胞水平
还是群体水平,能够使生命系统达
到和保持平衡或稳定’只有生命系
统处于相对稳定的状态’生命才能
图6种群数量稳态的负反馈调节
顾
植物
兔食
延续。而正反馈的存在对系统的发
展演化有着不可替代的作用。
物增加
丁
′
图
彰
主要参考文献l…………°……°…°…
[1]李守宇.机体内稳态调节中被忽视的“反馈’[J]中
学生物教学’2015(13):36—38
[2]钟碘’洪秀娟.从一道高考试题分析核心概念“反馈
调节’’[J].生物学教学’2013(12):3l—32.
■
●
●
●
●
●
GG
毋
●
●●■●●●●●●●●●●●●●■●■■■●=●●●■●■●●●●●●■●命●●●■●●●●●●●
●G●●●●■
347
●
●
■
■
●
●
●
●
●
●
■
◆
●
●
●
●
◆
●
■
●
●
盼
●
●
●
■
●
●
份
●
怕
匀
O
′′)
′′M7′Ⅷ「Ⅵ
√渺″`幽′"灿′吻`则′γ
`″吻\d′v`
Ⅷ7′`′败u例\′~
≈…
|‖口高中生物疑点逾
↑.光能自养需氧型
这类微生物以光能为能源’以CO2为主要碳源’适合生存于有氧环
境’如蓝藻`衣藻(原生生物)
。
2。化能自养需氧型
这类微生物以无机化学能为能源’以CO2为主要碳源’适合生存于有
氧环境’如铁细菌、无色硫细菌`硝化细菌。
3。光能自养厌氧型
这类微生物如绿硫菌’以光为能源’以CO2为主要碳源;有光合色
素’通过光合作用获取生长所需要的能量;以无机物如H2、H2S、S等作为
供氢体或电子供体’使CO2还原为细胞所需物质。适合生存于无氧环境°
4化能异养需氧型
这类微生物的能源和碳源均来自于有机物’适合生存于有氧环境’真
菌和绝大多数的细菌都属于这_类型’常见的有霉菌(真核生物)、草履
虫及变形虫(原生生物)`放线菌、根瘤菌`圆褐固氮菌`肺炎双球菌、
结核杆菌`霍乱弧菌`炭疽杆菌`麻风杆菌、黄色短杆菌`土壤农杆菌、
枯草芽抱杆菌`苏云金芽抱杆菌`谷氨酸棒状杆菌等。
5.化能异养厌氧型
这类微生物的能源和碳源也均来自于有机物’但是只有在缺氧的条件
下才能很好地生长,如乳酸菌、甲烷杆菌`反硝化细菌、破伤风杆菌、幽
门螺旋杆菌°
34『
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
~
渤
●
矽
侣
●
仔
白
■
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
■
腑
肌
」\
…′/7‖
ˉ
恤『|`铡′哦
0
卜`
{
『′′T
川
咏』
。
′
‖′怔铡′`
`、哗1旷』
≡』
刘
川汕』〃`州沪
√
_
6.化能异养兼性厌氧型
这类微生物的能源和碳源也均来自于有机物’在有氧和无氧的条件下
均能生长’如大肠杆菌`酵母菌(真核生物)、金黄色葡萄球菌、支原
体`酿脓链球菌。
7.兼性营养需氧型
这类微生物比较少见’如眼虫(原生生物’_种裸藻)’适合生存于
有氧环境’它在含有有机物的水中’能够靠细胞膜吸取水里的有机‘食
物’,
’过着动物式的化能异养生活。但是同时’眼虫的细胞中有含叶绿素
的叶绿体’在没有有机物的情况下’能够进行光合作用自己制造营养物
质。因此兼有光能自养和化能异养的代谢方式。
8.兼性营养兼性厌氧型
这类微生物也比较少见’如红螺菌’它的同化方式是兼性营养型’以
光为能源’以二氧化碳为主要碳源’以水或其他无机物作为供氢体进行光
合作用’还原CO2合成有机物属于光能自养;或者以光为能源’以有机物
为主要碳源’并且以有机物作为供氢体进行光合作用’同化有机物形成自
身物质,属于光能异养°它的异化方式也是兼性的’在湖泊、池塘的淤泥
中进行厌氧呼吸’在废水处理体系中却是需氧的。
彰∏=文·
……
[1]马丽常见微生物的代谢万式[J]
生物学教学’2010,2:64ˉ
●
■
●
●
■
●
●
●
●
●
●
●
●
●
●
■
●
■
●
●
●
●
●
●
●
●
●
■
●
●
●
●
●
●
■
●
●
●
●
●
●
●
●
●
IG
349
●
●
■
●
●
●
●
●
●
~
●
●
●
予
●
●
$
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
●
■
●
●
◆
●
●
■
$
$
●
硷
●
●
●
●
●
●
●
提供各种书籍的PDF 电子版代找服务,如果你找不到自己想要的书的
PDF 电子版,我们可以帮您找到,如有需要,请联系微信。
PDF 代找说明:
本人可以帮助你找到你要的PDF 电子书,初高中语文、英语、数学、物理、
化学、生物,等等。质量都很清晰,只要您提供给我书的相关信息,一般我都能
找到,如果您有需求,请联系我。
本人已经帮助了很多人找到了他们需要的PDF,其实网上有很多PDF,大家
如果在网上不到的话,可以联系我,大部分我都可以找到。因PDF 电子书都有
版权,请不要随意传播,如果您有经济购买能力,请尽量购买正版。
声明:本人只提供代找服务,因寻找PDF 电子书有一定难度,仅收取代找费用。如因PDF
产生的版权纠纷,与本人无关,我们仅仅只是帮助您寻找到您要的PDF 而已。