ARTICLE · 1126135
APSB:AI+高内涵筛选白桦脂醛调控线粒体-溶酶体信号级联改善了帕金森病病理
一、研究背景
帕金森病(Parkinson's disease, PD)已成为神经退行性疾病中增长最快的致残致死原因之一,预计到 2040 年全球患者人数将突破 1200 万,形成日益严峻的 "帕金森大流行"(图引言部分)。尽管研究深入,目前尚无任何疗法能够持久阻断 α- 突触核蛋白(α-synuclein, α-syn)聚集或多巴胺能神经元丢失这两大核心病理事件。
自噬-溶酶体通路(autophagy–lysosomal pathway, ALP)功能障碍被公认为 PD 进展的关键驱动因素。遗传学研究已鉴定出 GBA、LRRK2、PRKN、PINK1 等 PD 相关基因突变均可损害 ALP 功能,导致受损细胞器和错误折叠 α-syn 清除障碍并蓄积,进而驱动神经退行性变。更为棘手的是,突变型 α-syn 可通过结合溶酶体受体进一步抑制 ALP,形成恶性循环。因此,增强 ALP 功能已成为恢复细胞稳态、减少毒性蛋白蓄积的重要治疗策略方向。
转录因子 EB(transcription factor EB, TFEB)是 ALP 的主调控因子,统筹溶酶体生物发生与自噬激活。TFEB 及其家族成员(MITF、TFE3)在连接线粒体与溶酶体功能的信号通路中亦发挥核心作用。在 PD 中,TFEB 功能障碍导致毒性 α-syn 聚集体清除受损,从而加速神经退行性变;反之,药理学或遗传学激活 TFEB 已在多种 PD 模型中显示出神经保护效应,包括增强 α-syn 清除、减少神经元丢失、改善运动功能以及恢复细胞器间通讯。因此,TFEB 作为神经元存活的核心介导因子,是极具吸引力的 PD 治疗靶点。
然而,已报道的 TFEB 诱导剂大多通过抑制 mTOR 发挥作用,而 mTOR 调控多种细胞通路而非仅自噬,此类策略伴随难以预估的副作用风险。因此,开发 mTOR 非依赖性 TFEB 激活剂具有重要的转化价值。生理状态下,线粒体通透性转换孔(mitochondrial permeability transition pore, mPTP)允许 1.5 kDa 以下小分子扩散;严重细胞应激时,持久不可逆的孔开放破坏线粒体完整性并触发细胞死亡;而短期、短暂的孔开放则释放离子和代谢物,调控钙信号与活性氧(ROS),影响细胞命运决定等多条通路。钙和 ROS 虽已被证实参与 TFEB 调控,但 mPTP 开放在这一过程中的具体贡献仍未阐明。
与此同时,高内涵成像通常产生数千至数百万张图像,而手动分析缓慢、易出错且依赖专业计算能力。AI 辅助编程(vibe coding)作为新兴范式,以大语言模型(LLM)为桥梁,使无编程背景的研究者也能设计并执行复杂分析流程。本研究正是将这一前沿方法学与高内涵筛选结合,从天然化合物库中鉴定新型 TFEB 激活剂,并系统解析其线粒体 - 溶酶体信号机制,为 PD 治疗提供新靶点与新候选药物。
二、VCAI 驱动的高内涵筛选策略与Betulinaldehyde (Betu,白桦脂醛)的鉴定
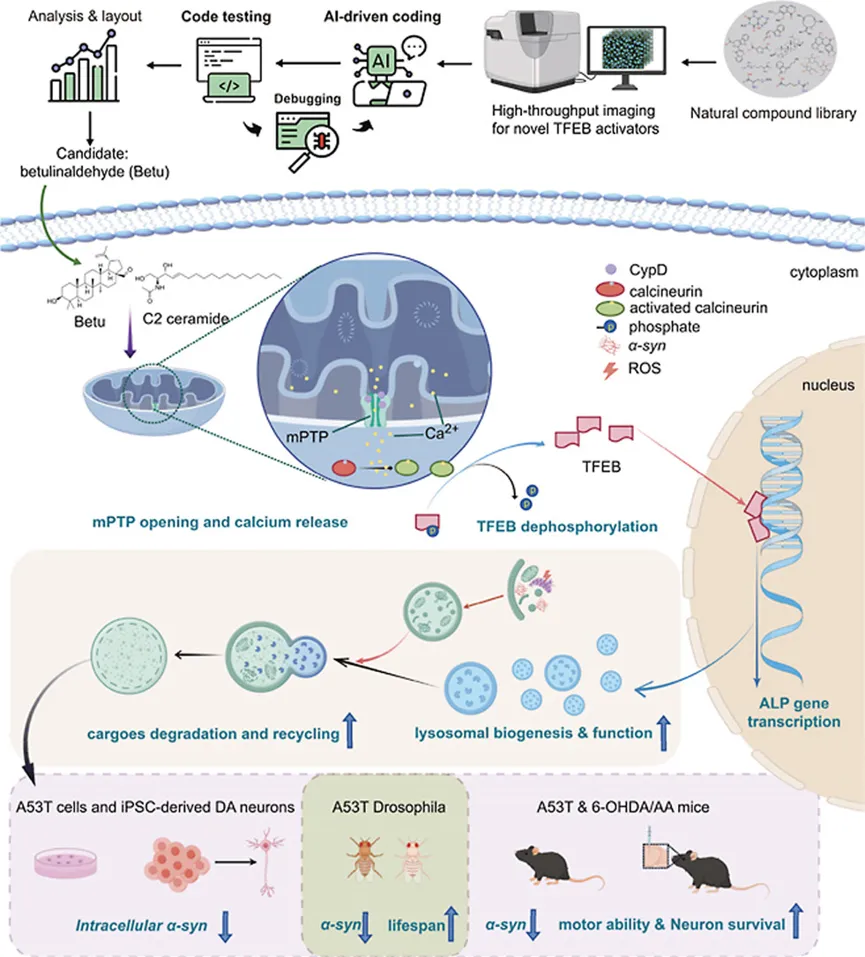
为从 2930 个天然化合物库中筛选新型 TFEB 诱导剂,研究者构建了整合高内涵成像与 VCAI(vibe coding assisted by artificial intelligence)驱动图像分析的筛选平台(图1A)。筛选采用稳定表达 Flag-TFEB 的 HeLa 细胞,以经典 mTOR 抑制剂Torin 1 作为阳性对照。化合物库涵盖生物碱、黄酮类、萜类、酚类、糖苷类等多种结构类型,具有丰富的药理学多样性。
VCAI框架(图1B)将实验设计、工具选择、AI 驱动代码生成、调试、代码测试、文档整理与布局优化整合为闭环流程。研究者以自然语言指令(如 "Add a filter for cell debris in segmentation")向 GPT-4 下达需求,由 LLM 自动生成可执行 R 脚本,并在RStudio 中迭代调试直至代码正确运行、实验目标达成。
在图1C 中,GPT-4 自主组装了基于 R 的完整工作流,可自动完成胞质与核区室分割、TFEB 定位定量以及发表级统计图表生成。该 VCAI 驱动的定量图像分析流程包括:原始图像的高斯去噪与对比度增强预处理,DAPI 与TFEB 双通道的核质分割及形态学操作生成核掩膜与胞质掩膜,随后分别定量核内(Fn)与胞质(Fc)TFEB 荧光强度,并通过信噪比与切片完整性检查进行质量控制。有效数据导出为 CSV 格式逐细胞定量指标,无效数据予以剔除。核心输出指标包括 Fn、Fc、核质比(Fn/Fc)及核分布百分比。
将此 R 脚本应用于图1A 所示高内涵筛选图像后,得到的 TFEB 核转位筛选热图(图1D)清晰显示,白桦脂醛(白桦脂醛linaldehyde, 白桦脂醛)具有与阳性对照 Torin 1 相当的高 Fn/Fc 比值,被鉴定为候选 TFEB 激活剂。手动定量验证白桦脂醛处理后 TFEB 核转位细胞百分比与 VCAI 驱动的分析结果高度一致(图2A 和 B),证实了自动化工作流的可靠性。免疫印迹与荧光显微镜成像进一步表明,白桦脂醛以时间和剂量依赖性方式促进 TFEB 核定位(图2C 和 D)。
值得注意的是,白桦脂醛在有效激活 TFEB 的浓度下并不损害 GFP-TFEB-HeLa 细胞增殖。与之形成鲜明对比的是,经典 TFEB - 自噬诱导剂 HBSS(营养剥夺)和 Torin 1 均显著抑制细胞生长。CCK-8 实验亦证实,白桦脂醛的有效浓度对 N2a 和 PC12 细胞活力均无显著影响。基于高效促进TFEB核转位、低细胞毒性以及作用机制尚未阐明等特点,研究者选择白桦脂醛进行深入机制研究。
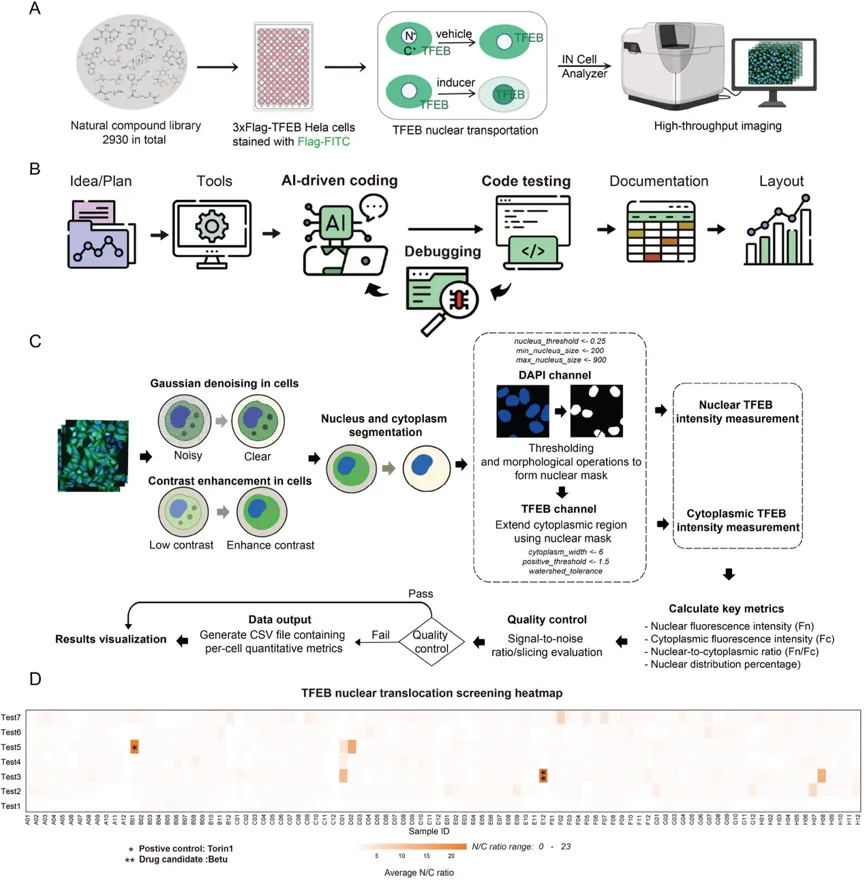
图 1 AI 辅助高通量筛选(HTS)与图像分析鉴定白桦脂醛(Betu)为新型 TFEB 激活剂
三、钙调神经磷酸酶(CaN)介导白桦脂醛诱导的TFEB去磷酸化与核转位
TFEB 的亚细胞定位受翻译后修饰(尤其是磷酸化与乙酰化)的紧密调控。免疫印迹显示,白桦脂醛处理后细胞核组分中的 TFEB 条带出现下移(图2C),提示发生了去磷酸化。质谱分析进一步证实,TFEB S142 位点磷酸化水平显著降低。由于白桦脂醛并不抑制 mTOR 激酶活性(图2G),而 mTOR 是已知的 TFEB 上游主要磷酸化激酶,研究者推测白桦脂醛可能通过激活某种磷酸酶来促进 TFEB 去磷酸化。
为鉴定负责的磷酸酶,研究者将白桦脂醛与磷酸酶抑制剂库中的化合物联合使用。结果显示,两种 CaN 特异性抑制剂 —— 环孢素 A(cyclosporin A, CsA)和 voclosporin(Voc)—— 均可稳健阻断白桦脂醛诱导的 TFEB 核质穿梭(图2E、F 和 M)。既往研究报道 CaN 可使 TFEB 的 S211 和 S213 位点去磷酸化,本研究中激酶实验一致表明白桦脂醛增强了 CaN 活性(图2K),而白桦脂醛诱导的 p-TFEB-S142/211 水平下降可被 CsA 逆转(图2H–J)。以上结果共同表明,CaN 激活是白桦脂醛介导的 TFEB 去磷酸化与核转位所必需的。
鉴于蛋白磷酸酶 2A(PP2A)亦被报道参与 TFEB S211 位点的去磷酸化,研究者进一步应用 PP2A 抑制剂冈田酸(okadaic acid, OA)进行联合处理。有趣的是,OA 并未阻断反而进一步增强了白桦脂醛诱导的 TFEB 核转位,提示白桦脂醛选择性激活 CaN 而非 PP2A 来驱动 TFEB 去磷酸化。此外,研究者还发现白桦脂醛可显著增加 TFE3 的核转位,后者是 MiT/TFE 转录因子家族的另一重要成员,表明激活的 CaN 可直接使 TFEB 和 TFE3 共同去磷酸化,从而促进二者入核。
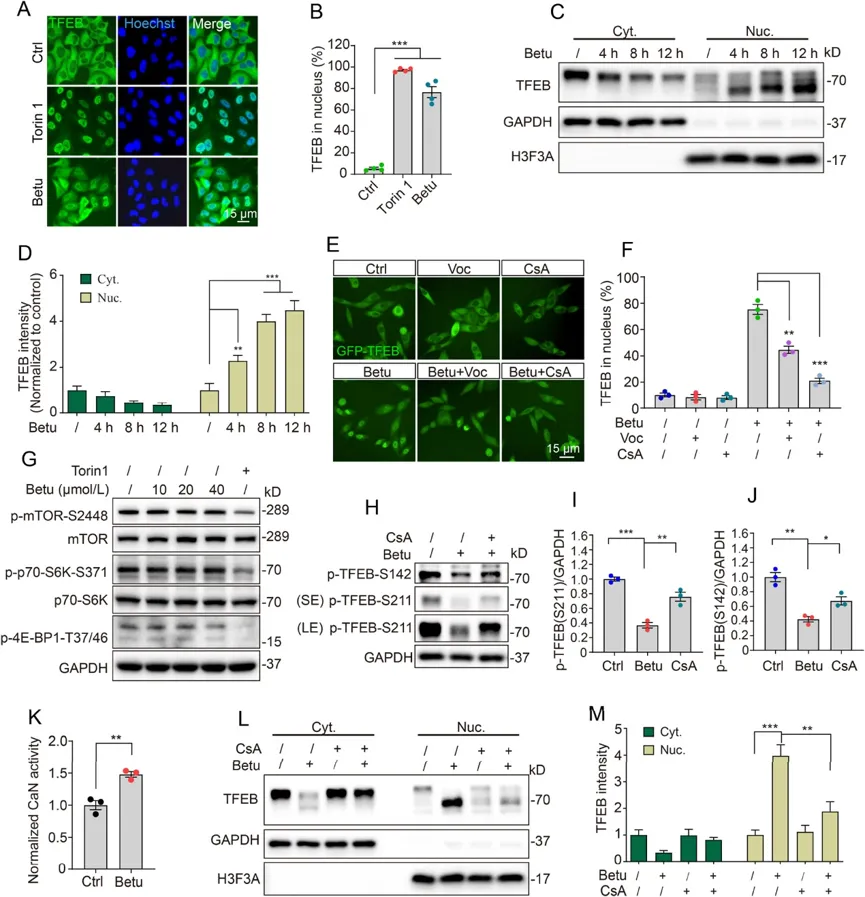
图 2 Betu 以钙调神经磷酸酶依赖的方式促进 TFEB 核转位
四、白桦脂醛通过 CypD 介导的 mPTP 轻度开放诱导线粒体 Ca²⁺外流
CaN的活性依赖于胞质 Ca²⁺([Ca²⁺] c)的升高。胞内钙螯合剂 EGTA-AM 或 BAPTA-AM 共处理可减弱白桦脂醛诱导的 TFEB 核输入(图3A),证实 [Ca²⁺] c 升高是白桦脂醛激活 CaN 的必要条件。随后研究者系统排查了升高的 Ca²⁺的细胞器来源。
首先排查溶酶体:既往报道溶酶体通过黏蛋白-1(MCOLN1)通道释放 Ca²⁺是 CaN 的重要激活因子,但 MCOLN1 抑制剂 ML-SI3 并不能阻断白桦脂醛诱导的 TFEB 核定位,排除了溶酶体作为钙源的可能。接着排查内质网(ER):使用 ER 兰尼碱受体拮抗剂dantrolene 阻断ER Ca²⁺释放,同样不影响白桦脂醛诱导的TFEB核转位。与之一致,白桦脂醛处理细胞中 Fluo-4 AM 与 ER-Tracker 之间未见明显共定位,进一步排除了 ER 作为 Ca²⁺释放来源。
线粒体在细胞钙信号中发挥中枢作用,作为动态缓冲池塑造钙瞬变、调控信号通路并维持钙稳态。既往研究表明线粒体 Ca²⁺([Ca²⁺] mt)长期释放可促进活化 T 细胞核因子(NFAT,CaN 的另一底物)的核转运,提示 [Ca²⁺] mt 外流也可能激活 CaN。为验证这一假设,研究者用 Fluo-4(绿色)标记胞内钙信号、Mito-Tracker(红色)标记线粒体。白桦脂醛处理 3 小时后,Fluo-4 与 Mito-Tracker 共定位显著增加(黄色信号),同时 [Ca²⁺] c 升高(图3B 和 C)。
为动态监测 [Ca²⁺] mt 变化,研究者采用比值型指示剂 mt-riG6m。白桦脂醛处理后,[Ca²⁺]mt在至少 5 小时内进行性下降,表现为 mt-riG6m 比值(Fmt-GCaMP6m/FmKate)的持续降低(图3D),表明白桦脂醛触发了 [Ca²⁺] mt 的大量且持续的外流。
[Ca²⁺] mt 内流主要由线粒体钙单向转运体(MCU)复合物与 Ca²⁺/H⁺反向转运体 LETM1 介导,而 [Ca²⁺] mt 外流主要受 Na⁺/Ca²⁺交换体(NCLX)和 mPTP 控制。NCLX 特异性抑制剂 CGP37157 未能阻止白桦脂醛诱导的 TFEB 核转位,提示 NCLX 不参与白桦脂醛条件下的 [Ca²⁺] mt 外流。随后研究者采用 calcein 释放实验评估 mPTP 开放程度。
生理条件下 mPTP 允许 1.5 kDa 以下溶质扩散;calcein 释放实验中,mPTP 开放程度与线粒体 calcein 荧光强度(绿色)呈负相关。作为阳性对照,Ca²⁺离子载体及强效 mPTP 激活剂 ionomycin 几乎完全消除线粒体 calcein 信号(图3E 和 F)。有趣的是,白桦脂醛仅引起 calcein 荧光约 30% 的适度下降(图3E 和 F),且不显著升高 ROS、不降低线粒体膜电位、亦不损害 ATP 产生,表明白桦脂醛触发的是一种温和、可控的 mPTP 开放,而非病理性孔道持续开放。
mPTP 主要由三种成分构成:位于线粒体内膜的腺苷酸转位酶(ANT)、位于外膜的电压依赖性阴离子通道(VDAC),以及位于线粒体基质内的调控蛋白亲环蛋白 D(cyclophilin D, CypD)。CypD 特异性抑制剂 NIM811 可废除白桦脂醛诱导的 mPTP 开放(图3E 和 F)。与之一致,NIM811 以剂量依赖性方式阻断 Ca²⁺/CaN 介导的 TFEB 激活(图3G–I)。siRNA 沉默 CypD 同样消除了白桦脂醛诱导的 TFEB 核定位(图3J 和图S3J),而 CypD 过表达则部分增强了该效应。上述结果共同表明,CypD 介导的 mPTP 开放是白桦脂醛触发 [Ca²⁺] mt 外流及后续 TFEB 激活所必需的。
为检验 "轻度 mPTP 开放导致 [Ca²⁺] mt 释放是否为 CaN 介导 TFEB 核转位的普遍机制",研究者测试了 C2 - 神经酰胺(C2-ceramide)—— 一种具有神经保护活性的生物活性鞘脂。既往研究显示 C2 - 神经酰胺可诱导可控、保护性的 mPTP 开放,防止缺血诱导的线粒体钙超载,并增加早发型先兆子痫中 TFEB 表达与核转位。在 calcein 释放实验中,Torin 1(mTOR 抑制剂)和化合物 C1(mTOR 非依赖性 TFEB 激活剂)均不明显引起 mPTP 开放(图S3M 和 S3N);而 C2 - 神经酰胺诱导了与白桦脂醛处理相当的适度 mPTP 开放(图3K 和 L)。作为对比,CCCP 和 H₂O₂引起 70%–85% 的 calcein 丢失,表明 C2 - 神经酰胺和白桦脂醛诱导的 mPTP 开放是调控性的 "闪烁" 式开放,而非膜损伤。此外,NIM811 或 BAPTA-AM 可废除 C2 - 神经酰胺刺激的 TFEB 核转位(图3M 和 N)。C2 - 神经酰胺还可升高 LC3-II/LC3-I 比值、降低 p62 水平、促进 A53T-α-syn 聚集清除。以上结果共同表明,mPTP 依赖的 [Ca²⁺] mt 外流在 CaN 促进 TFEB 激活中发挥关键作用,为线粒体应激与溶酶体功能 / 生物发生之间提供了一条全新的机制桥梁。
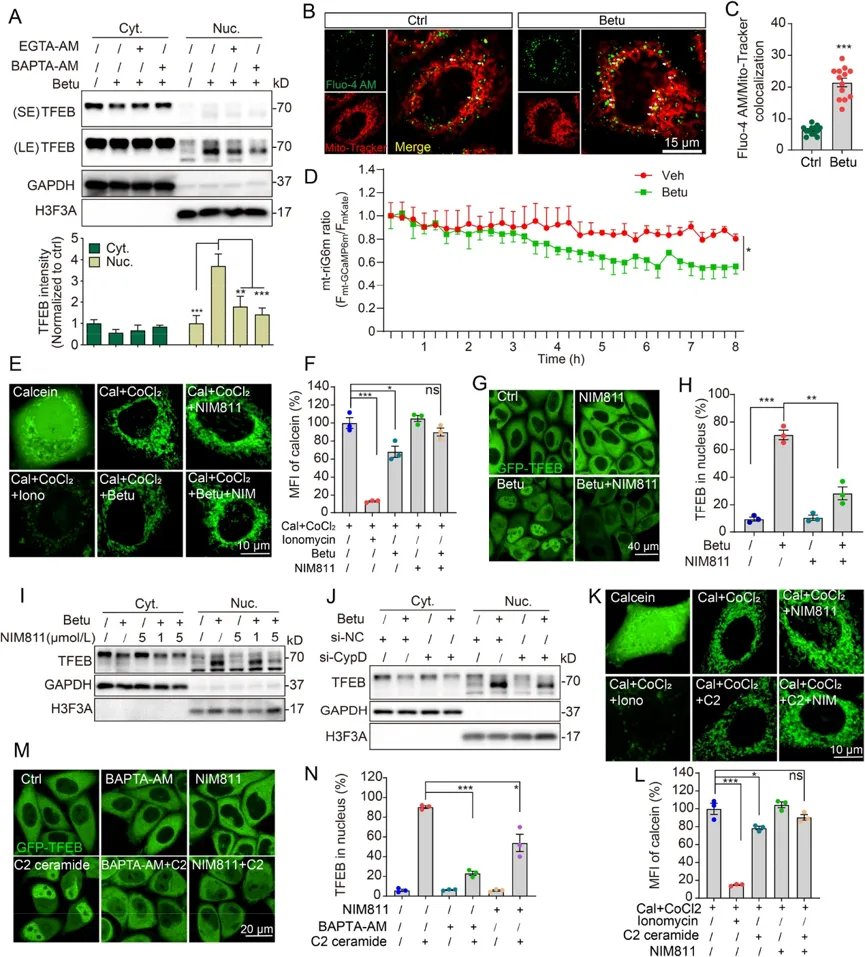
图 3 Betu 通过亲环蛋白 D(CypD)介导的 mPTP 开放诱导线粒体钙离子释放
五、白桦脂醛增强自噬流与溶酶体功能
作为 ALP 的主调控因子,TFEB 控制 CLEAR 网络内众多基因的表达以及自噬各关键步骤。在 GFP-LC3 稳定表达的 HeLa 细胞中,白桦脂醛处理后 GFP-LC3 绿色斑点形成显著增强,与 Torin 1 组相当(图4A 和 B)。一致地,白桦脂醛处理升高了 LC3-II/LC3-I 比值,支持其促进自噬流的作用。
为排除白桦脂醛诱导的自噬体增加是由于自噬体成熟或降解受阻的可能性,研究者采用稳定表达 mRFP-GFP 串联荧光标记 LC3(mRFP-GFP-LC3)的 A549 细胞。在 pH 中性条件下 GFP 和 RFP 信号均可见,而 GFP 在自噬溶酶体酸性环境中被淬灭,仅残留红色斑点。氯喹(CQ)组因溶酶体中和而出现大量黄色斑点(mRFP⁺/GFP⁺自噬体大量蓄积);与之相反,Torin 1 和白桦脂醛组的 GFP 信号被淬灭,仅积累红色斑点(mRFP⁺/GFP⁻),表明自噬流增强而非自噬阻断。
研究者进一步评估白桦脂醛促进溶酶体生物发生与功能的能力。白桦脂醛处理以剂量依赖性方式升高溶酶体相关膜蛋白 1(LAMP1)的荧光强度(图4C 和 D),指示溶酶体丰度扩张。LysoTracker 染色一致显示白桦脂醛显著增强溶酶体生物发生与活性,与 Torin 1 处理效果相当。为评估溶酶体蛋白水解功能,研究者使用 Magic Red CTSB 实验监测组织蛋白酶 B(CTSB)—— 一种对蛋白降解至关重要的半胱氨酸水解酶 —— 的活性。作为溶酶体 V-ATP 酶选择性抑制剂,Bafilomycin A1(Baf-A1)通过中和溶酶体 pH 损害 CTSB 活性;而白桦脂醛和 Torin 1 均显著增加 CTSB 红色荧光强度(图4E 和 F),证明白桦脂醛不仅促进溶酶体生物发生,还激活溶酶体水解酶活性。
为进一步揭示白桦脂醛诱导 TFEB 核转位的下游靶点与通路,研究者在表达 3×Flag-TFEB 的 HeLa 细胞中进行了 RNA-seq 和 ChIP-seq。RNA-seq 分析显示,与溶剂对照组相比,白桦脂醛组有 1578 个基因显著上调、983 个基因显著下调(FC > 1.5, P < 0.05),其中自噬 - 溶酶体基因显著富集(图S4I)。为验证直接 TFEB 靶点并最小化间接偏差,研究者对白桦脂醛处理细胞进行了 ChIP-seq,鉴定出 1033 个 TFEB 结合启动子(对照组为 787 个)。RNA-seq 与 ChIP-seq 数据整合分析得到 135 个白桦脂醛调控的 TFEB 靶点(超几何检验,P = 7.46×10⁻⁷⁷),富集于自噬与溶酶体通路(图4G)。进一步使用 diffReps(用于检测生物学重复 ChIP-seq 数据中差异染色质修饰位点的工具)分析,鉴定出 89 个白桦脂醛 vs 对照差异 TFEB 启动子结合基因,其中 15 个自噬 - 溶酶体基因在转录水平上调(图4H)。一致地,在白桦脂醛处理的 SH-SY5Y 细胞中,多个涉及 ALP 的 TFEB 靶向基因表达显著增强。以上结果突出表明白桦脂醛在体外增强 TFEB 活性并促进 ALP 功能。
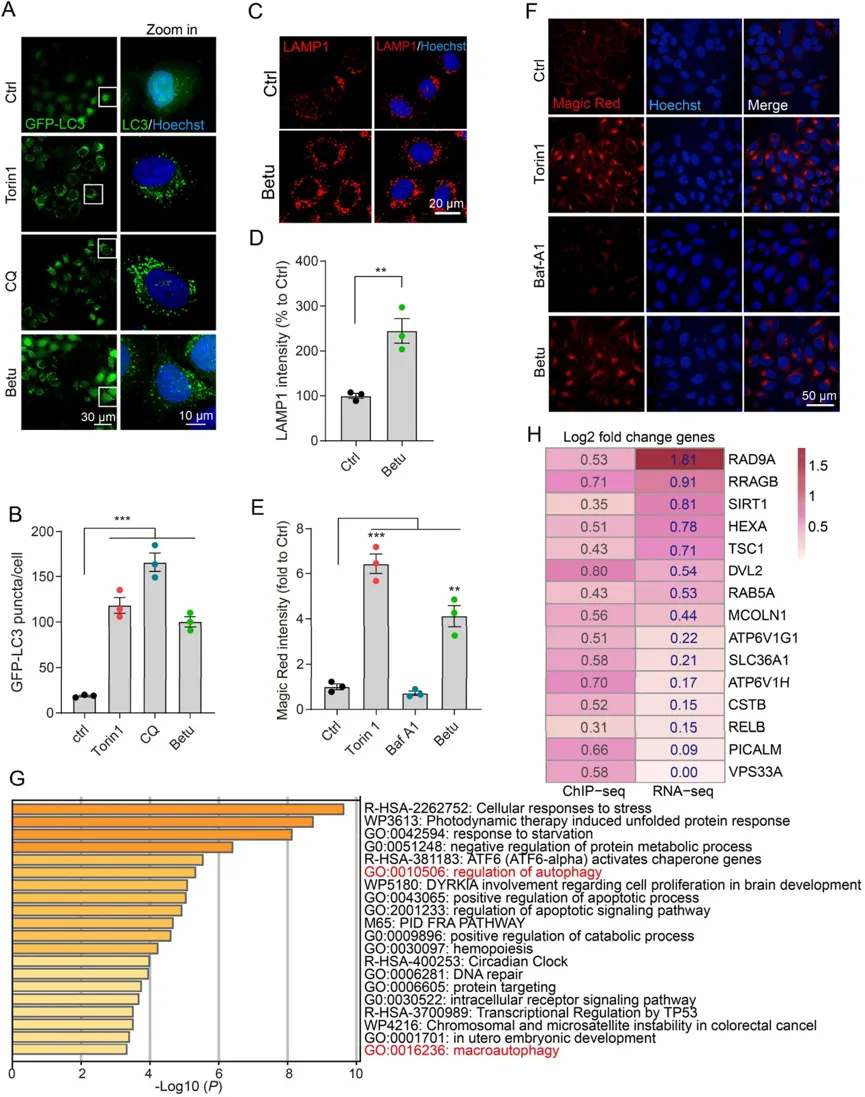
图 4 Betu增强自噬流与溶酶体功能
六、白桦脂醛在神经元细胞与 PD 患者 iPSC 模型中改善 α-syn 病理
PD 以脑内 α-syn 聚集形成路易小体为特征。SNCA 基因编码 α-syn,是首个被鉴定为散发性和家族性 PD 致病基因的基因。A53T 突变(对应 SNCA 的 G209A 突变)增强 α-syn 聚集倾向,与早发型 PD 及更严重病理相关。为评估白桦脂醛诱导 TFEB 激活的神经保护效应,研究者采用了一系列过表达 A53T 突变型 α-syn 的 PD 模型 —— 包括培养细胞、转基因果蝇和小鼠。
在前期工作中,研究者建立了基于 Tet-On 3G 多西环素(DOX)诱导系统、过表达 A53T-α-syn 的 PC12 细胞系。DOX 补充条件下 α-syn 在 TRE3G 启动子控制下稳定表达。白桦脂醛处理以剂量依赖性方式促进 DOX 诱导的 α-syn 降解(图5A;Supporting Information 图S5A)。值得注意的是,自噬抑制剂 CQ 共处理(图5B)、CaN 抑制剂 CsA(图5C)或 siRNA 沉默 TFEB(siTFEB;图5D)均可阻断白桦脂醛诱导的 α-syn 清除,表明白桦脂醛介导的神经元 α-syn 清除同时需要 TFEB 依赖的自噬和 CaN 活性。
人诱导多能干细胞(iPSC)技术的进步为在人源背景下进行药理学评估提供了强有力平台。研究者采用来自 3 名 PD 患者(1 名女性、2 名男性)、携带 G209A(p.A53T)SNCA 突变的 iPSC 系。按照成熟方案分化产生腹侧中脑模式化多巴胺能神经元(PDn),并通过 III 类 β- 微管蛋白(TUJ1)、微管相关蛋白 2(MAP2)和酪氨酸羟化酶(TH)的表达进行验证(图5D 为实验流程示意图)。白桦脂醛处理增强多巴胺能网络形成,表现为与溶剂对照组相比 TH 和 TUJ1 染色增加(图5E–H)。健康对照 iPSC 来源多巴胺能神经元在白桦脂醛处理后 TH、MAP2 或 TUJ1 网络未见统计学显著改善,提示白桦脂醛的神经保护效应具有疾病模型特异性。
为评估 α-syn 沉积,研究者使用 Proteostat 聚集体检测试剂。白桦脂醛处理的 PDn 中,与磷酸化 α-syn(pSer129-α-syn)共定位的胞质聚集体减少(图5I–K)。一致地,MJFR-14-6-4-2 抗体检测显示白桦脂醛处理减少了神经元周围的 α-syn 聚集体数量(图5L 和 M)。以上结果证明白桦脂醛可缓解 PD iPSC 来源多巴胺能神经元中的 α-syn 病理。
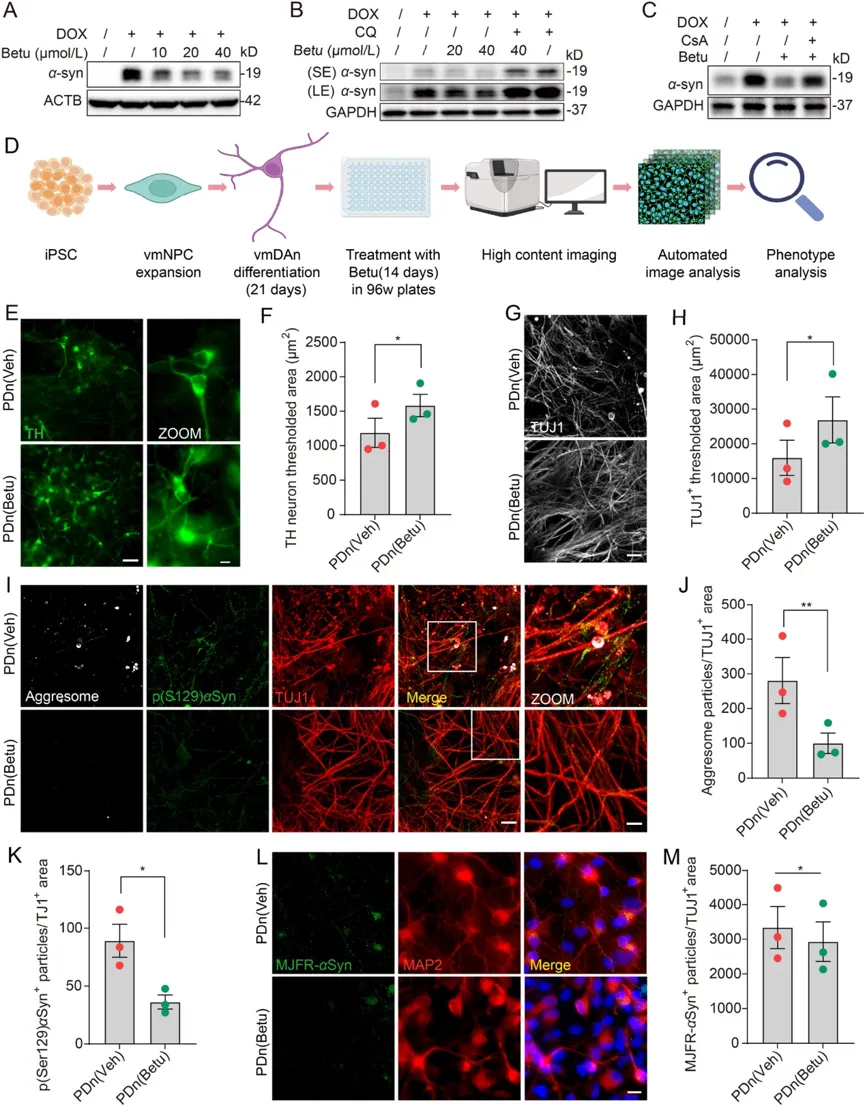
图 5 Betu 体外改善多巴胺能网络形成并缓解 α‑突触核蛋白病理
七、白桦脂醛在转基因果蝇与小鼠模型中改善 α-syn 病理并发挥神经保护作用
果蝇具有与哺乳动物类似的多巴胺能系统,是 PD 研究的重要模型。果蝇实验流程见图6A。为评估自噬诱导,研究者利用脂肪体特异性 CG-Gal4 驱动子表达广泛使用的自噬标记物 mCherry-Atg8a 转基因。白桦脂醛处理剂量依赖性地增加了 L3 幼虫脂肪体中 Atg8a 的平均荧光强度(MFI)(图6B 和 C),表明自噬被有效促进。随后研究者检测了过表达 A53T 突变 α-syn 的果蝇品系,白桦脂醛给药 15 天后 α-syn 积累呈剂量依赖性减少(图6D;图S5G)。更为重要的是,白桦脂醛显著延长了 α-syn 过表达导致的寿命缩短(约 35%)(图6E),表明增强的 α-syn 聚集体自噬清除有助于改善果蝇的神经元健康与寿命。
基于果蝇实验的积极结果,研究者进一步在表达人源 A53T-α-syn 的中枢神经系统转基因小鼠(line M83)中进行药理学验证。该突变模型中 α-syn 聚集体的形态、分布和发生与人类神经元 α-syn 病变高度相似,是 PD 研究的 robust 工具。采用 CatWalk XT 步态分析系统评估老年半合子 A53T 小鼠(约 18 月龄)的运动参数。与年龄匹配的野生型对照相比,老年半合子 A53T 小鼠表现出步长缩短、摆速减慢、步序规律性下降和步频降低等运动损害(图6F–I)。值得注意的是,口服白桦脂醛两个月后,A53T 小鼠的运动表现得以恢复(图6F–I)。行为学评估后,研究者检测了中脑组织的自噬流。白桦脂醛处理升高 LAMP1 水平、减少 p62 蓄积、升高 LC3-II/LC3-I 比值(图6J)。与之对应,中脑显著的 α-syn 积累减少(图6J),纹状体 α-syn 聚集体清除增强(图6K 和 L)。以上结果证明白桦脂醛通过促进 ALP 功能加速病理性 α-syn 清除,从而改善 A53T 小鼠的运动功能障碍。
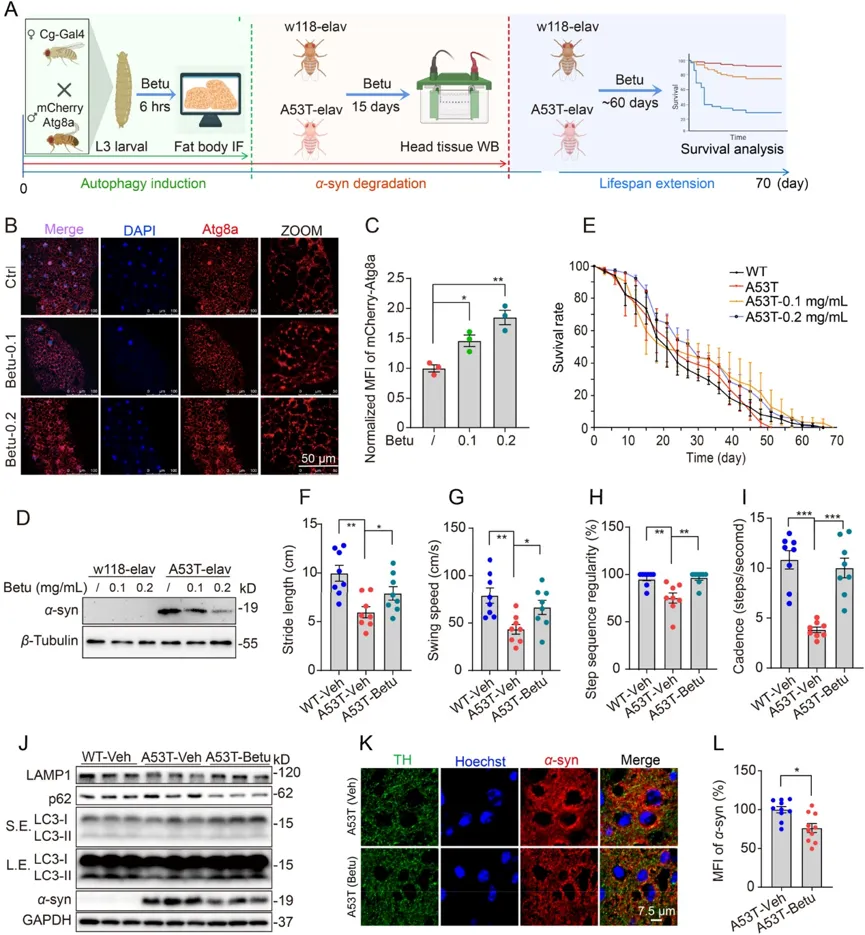
图 6 Betu 改善 A53T 突变果蝇与小鼠的 α‑突触核蛋白病理
除 α-syn 蓄积外,氧化应激是多巴胺能神经元退变的另一主要驱动因素。6 - 羟基多巴胺(6-OHDA)是一种神经毒素,可诱导线粒体损伤和 ROS 生成,在 AA 存在下表现出增强的细胞毒性,广泛用于体内外 PD 模型。既往研究已证实增强 TFEB 介导的自噬可改善 6-OHDA/AA 诱导的 SH-SY5Y 细胞、iPSC 来源多巴胺能神经元及小鼠黑质多巴胺能神经元死亡。本研究中研究者进一步检验白桦脂醛是否同样通过 TFEB 激活和自噬清除对抗氧化应激诱导的神经毒性。
首先在 SH-SY5Y 细胞中进行 TUNEL 染色,白桦脂醛剂量依赖性地挽救了 6-OHDA/AA 诱导的凋亡和增殖抑制(图7A 和 B)。一致地,白桦脂醛显著降低了 6-OHDA/AA 诱导的 cleaved caspase-3 升高,且该保护作用可被 ALP 抑制剂 Baf-A1 完全阻断(图7C 和 D)。TFEB 敲低一致地废除了白桦脂醛介导的 TUNEL 阳性细胞减少(图7E 和 F)。以上结果表明白桦脂醛通过 TFEB 依赖的 ALP 激活,对 6-OHDA/AA 诱导的神经元损伤发挥细胞保护作用。
随后研究者在单侧纹状体 6-OHDA/AA 损毁的 C57BL/6 小鼠中实施了 28 天白桦脂醛治疗方案。给药后进行阿扑吗啡诱导旋转实验以评估损毁侧与非损毁侧半球多巴胺失衡。腹腔注射阿扑吗啡后,6-OHDA/AA 损毁小鼠表现出强烈的旋转行为,而白桦脂醛处理可显著抑制该行为,表现为头部旋转次数减少(图7G)。该旋转表型指示双侧半球间多巴胺能神经元功能失衡。为进一步评估神经元完整性,研究者定量了黑质致密部(SNc)和纹状体的多巴胺能神经元。6-OHDA/AA暴露导致SNc 区 TH 阳性神经元相对于非损毁侧显著丢失,而白桦脂醛补充部分挽救了这一减少(图7H 和 I)。一致地,白桦脂醛恢复了纹状体中 TH 阳性纤维密度 ——后者因 6-OHDA/AA 神经毒性而降低(图7J 和 K)。以上结果证明白桦脂醛在氧化应激诱导的 PD 模型中通过保护多巴胺能神经元存活与功能,发挥稳健的神经保护效应。
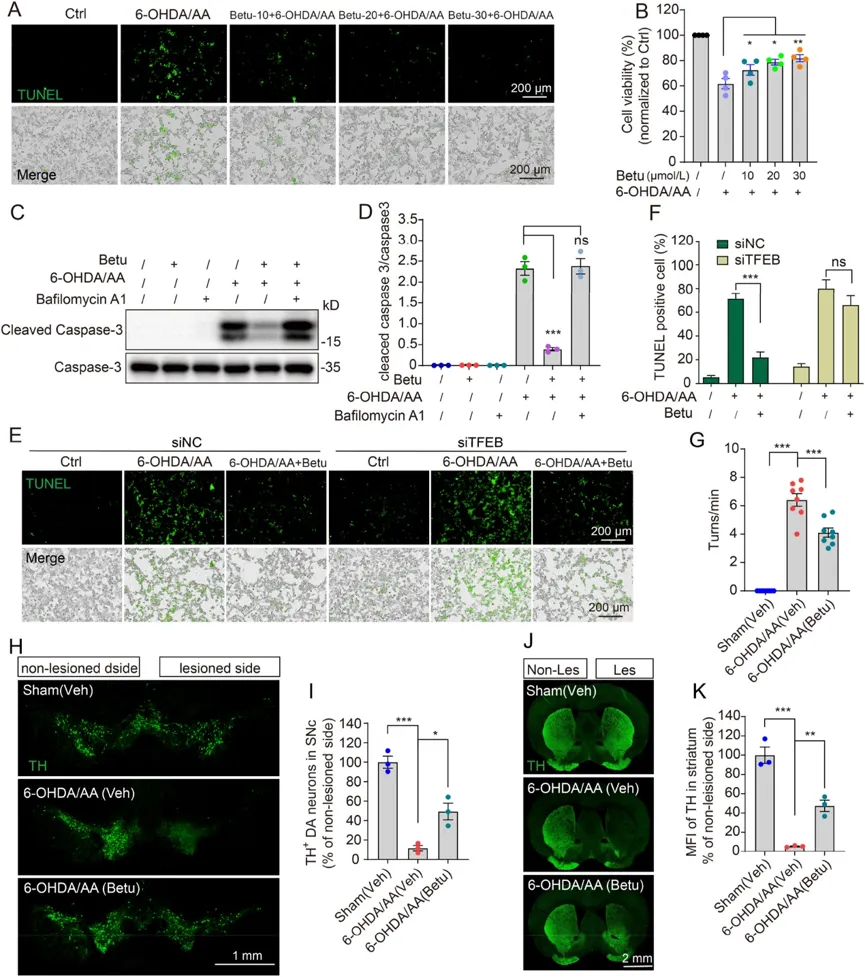
图 7 Betu 缓解 6‑OHDA/AA损伤帕金森病模型中的神经元死亡
八、机制模型与科学意义
本研究通过整合高内涵成像与 VCAI 驱动图像分析的筛选工作流,鉴定出天然化合物白桦脂醛作为强效 TFEB 激活剂。与经典通过 mTOR 抑制激活 TFEB 不同,白桦脂醛通过 mPTP 的轻度开放导致线粒体 Ca²⁺外流,该 Ca²⁺信号随后激活 CaN,促进 TFEB 核转位,从而增强溶酶体生物发生与自噬性降解。研究者进一步证实,抗衰老脂质C2 - 神经酰胺 —— 一种已知的可控 mPTP 开放诱导剂 —— 同样激活这一线粒体 - 溶酶体轴,提示该机制代表了细胞应激下一种保守的细胞保护性反应。在包括细胞系、iPSC 来源多巴胺能神经元、果蝇和小鼠在内的多种 PD 模型中,白桦脂醛均促进 α-syn 清除、减少 ROS 毒性,从而缓解神经退行性变。这些发现共同确立了线粒体–Ca²⁺/CaN/TFEB–溶酶体通路作为 PD 等神经退行性疾病的有前景治疗靶点。
在方法学层面,本研究首次将 VCAI 应用于生物医学图像分析,克服了高内涵筛选中长期存在的可及性、适应性和效率瓶颈。与需要专业技能、无法适应实验变异的刚性静态代码不同,本研究的 VCAI 驱动工作流向 GPT-4 下达目标导向提示词,生成针对实验需求量身定制的生产级 R 脚本。这种 vibe coding 方法使非专业研究者能够通过自然语言提示迭代优化流程,在不到 2 小时内实现快速定制和逐细胞稳健指标的实时优化。应用于 2930 个化合物的筛选,该平台鉴定出白桦脂醛为强效 TFEB 激活剂,其核质比与 Torin 1 相当(图1D),同时将分析时间缩短至48小时,且不再依赖专职生物信息学支持。VCAI 辅助大规模高内涵筛选后图像分析为生物医学研究引入了全新范式 —— 不同于传统刚性流水线,VCAI 实现了自然语言驱动、可定制的工作流,可扩展至数百万张图像,使非编程背景和资源有限的实验室也能开展高水平研究。
在线粒体 - 溶酶体通讯的生物学层面,真核细胞通过区室化实现高效生化过程,但同时需要强大的细胞器间通讯以维持细胞整合。线粒体是这一网络的核心,尤其通过其对钙动力学的调控。正常的线粒体钙处理协调能量代谢与蛋白降解,而钙稳态失调则扰乱这些过程并促进衰老和年龄相关疾病。其中最重要的连接之一即线粒体 - 溶酶体轴,该轴通过 MiT 家族转录因子(TFEB、MITF、TFE3)连接细胞代谢、营养感知与大块降解。近年来,二者通过特化膜接触位点的直接通讯被揭示,可快速双向交换离子、代谢物和调控信号。然而,线粒体与溶酶体是否还通过释放 [Ca²⁺] mt 等信号分子间接通讯,此前未被探索。
传统上,mPTP 激活被视为细胞死亡的标志,是严重应激下的病理反应,导致线粒体膜电位丧失、肿胀和凋亡。近期研究则表明,短期 mPTP 开放参与 Ca²⁺和线粒体 ROS 的生理调控,通过线粒体 - 核通路影响细胞命运。本研究发现,白桦脂醛和内源性脂质神经酰胺均通过轻度 mPTP 开放诱导 [Ca²⁺] mt 释放,启动 CaN 介导的溶酶体生物发生与功能增强,在 α-syn 和 ROS 相关 PD 模型中发挥神经保护作用。这些结果提示 mPTP 具有更为精细的生理学角色 —— 孔开放的时程和电导决定细胞结局。短时程、低电导的孔开放可作为适应性机制,释放过量钙或应激信号以编排溶酶体生物发生等促存活反应。这将 mPTP 从单纯的 "细胞死亡执行者" 重新定位为细胞稳态的关键调节器,整合应激信号以决定细胞命运。未来研究应聚焦于界定区分保护性 "闪烁" 开放与病理性开放的分子触发因素,从而通过选择性调控这一动态门控,开发神经退行性疾病的新型治疗策略。
综上,本研究确立了VCAI作为使计算生物学民主化的变革性范式,使资源有限和无编程背景的科学家也能开展高通量、可重复的分析。利用这一工作流,研究者鉴定出白桦脂醛作为强效mTOR非依赖性TFEB激活剂,在跨物种PD模型中挽救神经退行性变。机制上,白桦脂醛激活线粒体–Ca²⁺/CaN/TFEB–溶酶体轴,揭示了一条响应细胞应激与衰老的通用细胞保护通路。这些发现同时凸显了VCAI作为科学创新驱动力和药物发现新策略入口的双重价值。
参考文献:
Xuxu Zhuang, Jingfang Luo, Ziying Wang, Olympia Apokotou, Xinjie Guan, Xiaoxia Peng, Yu Dong, Jiayue Chen, Liming Xie, Chen Ming, Hanming Shen, Evandro F. Fang, Min Li, Huanxing Su, Keqiang Ye, Chaoyang Liu, Rebecca Matsas, Florentia Papastefanaki, Jieqiong Tan, Jiahong Lu.A high-content screening combined with AI-assisted vibe coding approach identifies a mitochondria-tolysosome signaling cascade ameliorating Parkinson’s pathology, Acta Pharmaceutica Sinica B, 2026. https:// doi.org/10.1016/j.apsb.2026.09.026.