ARTICLE · 1320341
肝素强烈结合并抑制125 I标记的APP与肝素结合的环化肽 289634-54-4
肝素强烈结合并抑制125 I标记的APP与肝素结合的环化肽 289634-54-4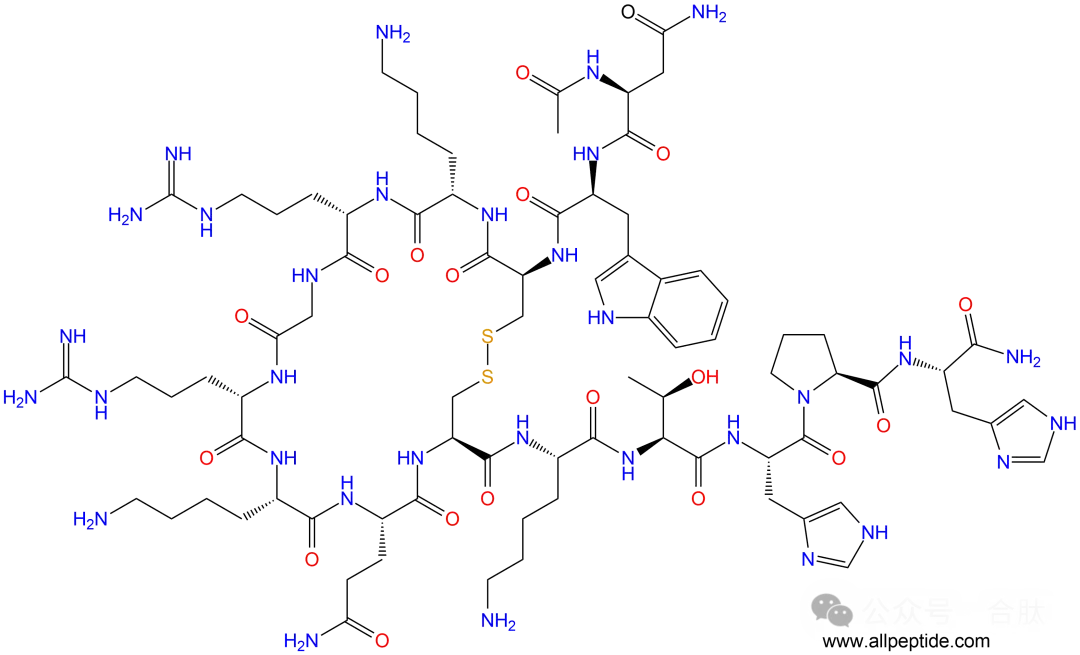
这种环化肽与APP的肝素结合结构域同源,与肝素强烈结合并抑制¹²的结合⁵I标记的APP对肝素(IC₅₀= 10⁻⁷M).该肽阻断APP对神经突生长的硫酸乙酰肝素蛋白多糖依赖性刺激作用。
与肝素强烈结合并抑制125 I标记的APP与肝素结合的环化肽(IC50=10-7M)。它还阻断了APP对神经突生长的硫酸肝素蛋白多糖依赖性刺激作用。
Acetyl‑APP770(96‑110) cyclized,CAS:289634‑54‑4
序列:Ac‑NWCKRGRKQCKTHPH‑NH₂,Cys3–Cys10 形成分子内二硫键环化;分子量:1918.24 Da 说明:人源 APP770 蛋白 96–110 位环化片段,属于 APP 胞外结构域工具肽,不是 Aβ 肽段,用于 APP 剪切、分泌酶调控、APP‑配体互作研究
一、核心作用原理
该肽通过 Cys3 与 Cys10 二硫键锁定环状构象,稳定 APP 该区域天然空间折叠;该区段位于 APP 胞外区、β‑分泌酶剪切位点上游,带大量正电荷(Lys、Arg 富集),富含 His 残基,可与膜磷脂、金属离子、分泌酶、胞外伴侣蛋白发生特异性相互作用。 核心逻辑:环化修饰固定局部构象,避免线性肽无序卷曲,用来模拟 APP 天然构象,研究该区域对 BACE1、α‑分泌酶识别、剪切效率的调控,同时可参与金属离子稳态、细胞黏附、信号通路调控;不具备 Aβ 典型疏水成核序列,不会自发形成淀粉样纤维。
二、主要作用
- APP 构象模拟工具肽
:环化固定 APP (96‑110) 天然构象,用于研究 APP 胞外区局部结构对分泌酶识别的影响,区分线性无序肽与天然构象的功能差异。 - 分泌酶剪切底物 / 调控子
:体外评价 BACE1、α‑分泌酶对 APP 该区域的结合、剪切,筛选分泌酶调节剂、变构抑制剂。 - 金属离子互作研究
:含 His 位点,用于研究 APP 胞外区 Cu²⁺/Zn²⁺结合,解析 APP 金属稳态在 AD 病理中的作用,区别于 Aβ 金属结合体系。 - 蛋白‑膜相互作用模型
:高正电荷序列,研究 APP 与细胞膜磷脂、脂筏的吸附、膜扰动。 - 抗体表位筛选抗原
:制备靶向 APP 胞外 96–110 区段的特异性抗体,用于 APP 示踪、免疫干预。 - 细胞信号对照
:评估该 APP 片段对神经元、小胶质细胞增殖、炎症、凋亡的调控效应。
三、局限性
- 仅为局部短片段
:脱离 APP 全长骨架,缺失 APP 跨膜区、胞内尾段,无法复刻全长 APP 完整剪切、转运、内吞过程,结论存在片段偏倚。 - 二硫键构象不稳定
:氧化环境、还原剂(DTT、TCEP)会破坏二硫键,环结构打开,构象丢失,实验体系严禁强还原剂;pH、氧化还原电位对活性影响极强。 - 无 Aβ 聚集毒性
:不含有 Aβ 疏水成核核心,不能用于 Aβ 寡聚、纤维毒性研究,不能替代 Aβ 系列肽。 - 正电荷带来非特异性吸附
:高 Lys/Arg 富集,容易非特异性吸附到细胞膜、ELISA 板、纳米材料,易产生假阳性信号。 - 体内稳定性有限
:环化提升蛋白酶抗性,但脑内多种肽酶仍可在非环区剪切;体外缓冲体系结果难以直接还原细胞膜微环境。
四、合成方法
采用Fmoc 固相多肽合成(SPPS)+ 后氧化环化
树脂:Rink Amide AM 树脂,C 端 His 锚定; 逐步缩合:Fmoc‑AA‑OH,HBTU/HOBt/DIPEA 体系;Cys 采用 Trt 保护,Asp/Glu tBu、His Trt、Lys Boc、Arg Pbf;N 端乙酰化封端; 裂解:TFA 裂解液,脱除侧链保护,得到线性粗肽; 稀释氧化环化:极稀水溶液(避免分子间二硫键多聚),空气氧化或 DMSO 缓慢氧化,促进 Cys3‑Cys10 分子内成环; 纯化:制备型 C18 反相 HPLC,分离环化单体与线性肽、二聚杂质; 质控:分析 HPLC、MALDI‑TOF 质谱,确认分子量;Ellman 试剂检测游离巯基(验证环化效率);常规纯度≥95%,高等级批次≥98%;冻干,-20℃避光、隔绝还原剂保存。
五、最新研究主要生物活性及研究方法
主要生物活性
环状构象下可特异性结合 BACE1,适度调控 BACE1 对 APP 底物的剪切效率,线性同序列肽结合能力显著下降。 His 位点介导 pH 依赖性 Cu²⁺、Zn²⁺结合,配位模式、亲和力与 Aβ N 端片段存在明显差异。 高正电荷介导与磷脂膜、脂筏的静电结合,低浓度下不造成明显膜穿孔。 可被 APP 胞外区特异性抗体识别,环构象依赖型表位占主导。 低浓度对神经元无明显毒性;高浓度可微弱激活小胶质炎症通路。
研究方法
构象表征:CD 圆二色谱、NMR(溶液环构象解析)、荧光光谱; 酶学实验:BACE1/α‑分泌酶体外酶活实验、FRET 底物共孵育、酶动力学 Km/Kcat 测定; 金属配位:EPR、UV‑Vis 滴定、电位滴定、ITC; 膜相互作用:脂质体泄漏、SPR(磷脂膜芯片)、Langmuir 膜; 免疫评价:ELISA、SPR、肽点阵,对比环肽 / 线性肽抗体结合差异; 细胞模型:原代神经元、BV2 小胶质细胞,CCK‑8、LDH、炎症因子 ELISA; 计算模拟:MD 分子动力学,对比环化 / 线性构象柔性、酶结合口袋匹配度、金属配位环境。
六、数据集的构建及数据的多维分析
数据集构建
基础元数据:序列、环化方式、纯度、游离巯基含量、批次、缓冲 pH、氧化还原条件、肽浓度、金属 / 酶浓度; 构象数据集:CD 二级结构占比、NMR 化学位移、RMSD(MD); 酶学数据集:酶促反应时序曲线、Km、kcat、抑制常数 Ki; 金属结合数据集:滴定曲线、Ka、EPR 谱参数; 膜互作数据集:膜结合 KD、脂质渗漏率; 免疫与细胞数据集:抗体 KD、EC50、细胞存活率、炎症因子浓度。
多维分析
对照分组:环化 APP (96‑110) vs 同序列线性肽,量化构象依赖效应; 条件相关性:氧化还原电位‑二硫键完整度‑酶结合活性的关联建模; 聚类分析:不同 pH、金属离子条件下,配位谱、构象谱聚类; 多模态时序耦合:酶切动力学 + 构象变化时序,区分构象识别与催化剪切两步; 构效关联:对比单点突变(His→Ala、Cys→Ala),定位酶结合、金属结合关键残基。
七、研究的发展历程
早期(1995–2005):APP 全长序列解析,研究者发现 APP 胞外区 96–110 区段靠近 BACE1 剪切位点,合成线性片段,初步考察其对分泌酶的影响;发现该区域富含正电荷与组氨酸,推测金属结合功能。 2005–2014:意识到线性肽高度无序,难以模拟天然 APP 构象;设计二硫键环化版本(CAS 289634‑54‑4),用于稳定局部构象,建立构象‑酶活关联;开始用于 APP 金属稳态研究。 2014–2021:NMR、MD 模拟普及,解析环肽三维溶液构象;广泛用于 BACE1 变构调节剂体外筛选,区分 “底物结合口袋抑制剂” 和 “APP 构象调控型调节剂”。 近年:用于 APP 脂筏定位、膜微环境调控研究;和 Aβ 系列肽搭配,区分 APP 上游剪切调控通路与下游 Aβ 聚集毒性通路;同时用于 APP 靶向抗体的表位疫苗前期筛选。